


 Spanish (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
 Cited by SciELO
 Similars in
SciELO
 uBio

 Permalink

La remoción de semillas, que incluye tanto dispersión como depredación, es un proceso clave en la transición de semillas a plántulas (Janzen, 1970; Jordano, García, Godoy, & García-Castaño, 2007; Schmitz, 2008). En los bosques tropicales, la mayoría de las especies arbóreas dependen de la fauna para dispersar sus semillas (Jordano, 2000; Jordano, Galetti, Pizo, & Silva, 2006). Entre un 50 % y 90 % de todas las especies leñosas de estas comunidades, son dispersadas por animales vertebrados (Fleming, Breitwisch, & Whitesides, 1987; Jordano, 2000; Jordano et al., 2006). La dispersión efectiva depende de la distancia a la que son depositadas las semillas, en relación con la planta progenitora, ya que son menos afectadas por efectos denso-dependientes negativos (Howe & Miriti, 2004; Schupp, Jordano, & Gómez, 2010), así como por la habilidad de los animales de depositar las semillas en sitios favorables para su germinación y posterior establecimiento (Harper, 1977; Muller-Landau, Wright, Calderon, Hubbell, & Foster 2002; Schupp et al., 2010). Asimismo, muchos animales son potenciales depredadores de las semillas que transportan (Restrepo, 2002; Grenha, Macedo, Pires, & Monteiro, 2010), por lo que frecuentemente es difícil diferenciar la gradiente de alta calidad (eficiencia en la dispersión) a baja calidad (depredación) de dispersión (Zona & Henderson, 1989; Andreazzi, Pires, & Fernandez, 2009). En cualquier caso, tanto la dispersión como la depredación de semillas afecta la sobrevivencia y el reclutamiento de las plantas, jugando un papel determinante en la estructuración y el mantenimiento de la diversidad de los bosques (Howe, 1990; Brewer & Rejmánek, 1999; DeMattia, Rathcke, Curran, Aguilar, & Vargas, 2006).
En el neotrópico, las palmeras (Arecaceae) son consideradas uno de los recursos alimenticios más importantes porque presentan una alta producción de frutos, que son clave para la alimentación de numerosas especies animales (Zona & Henderson, 1989; Zona, 2006; Andreazzi et al., 2009). Los bosques de Mauritia constituyen un tipo de formación vegetal dominada por la palma Mauritia flexuosa L.f., la cual generalmente se desarrolla en zonas inundables pobremente drenadas (Muller, 1970; Sioli, 1975; Urrego, Galeano, Sanchez, & Peñuela, 2013). Estos bosques, casi monotípicos, tienen una abundante producción de frutos y son importantes recursos alimenticios para muchas especies de mamíferos (Bodmer, 1991; Bodmer, Eisenberg, & Redford, 1997; Aquino, 2005), como los ungulados Tayassu pecari y Pecari tajacu (Kiltie, 1981; Bodmer, 1991), los primates Ateles, Cebus y Lagothrix (Cintra & Horna, 1997; Aquino & Bodmer, 2004), y especies de roedores como Cuniculus paca y Dasyprocta spp. (Smythe, 1989; Forget, 1991; Galetti, Paschoal, & Pedroni, 1992; Forget, Munoz, & Leigh, 1994; Brewer, 2001; Silva & Tabarelli, 2001).
La palma Mauritia flexuosa es una especie sensible al proceso de remoción de semillas (Urrego, 1987; Holm, Millar, & Cropper, 2008), ya que por encima del crecimiento y la fecundidad, la supervivencia y el reclutamiento de las plántulas ha sido el proceso demográfico más significativo para el crecimiento de la población a largo plazo (Holm et al., 2008). Los mamíferos frugívoros de este tipo de comunidad, diseminan y favorecen el reclutamiento de las nuevas plántulas, alejando las semillas de los parentales (Ponce, 2002), desempeñando un importante papel en la supervivencia de las mismas (Reid, 1989; Bustamante, 2009). En este mismo sentido, el principal objetivo de este trabajo fue identificar los mamíferos que participan como dispersores o consumidores de las semillas de M. flexuosa, en un bosque de Mauritia ubicado en el Trapecio Amazónico colombiano. Específicamente nos concentramos en responder las siguientes preguntas: i) ¿cuántas y cuáles son las especies de mamíferos que están involucradas en el proceso de remoción de semillas de esta palma?; ii) ¿en qué proporción estas especies de mamíferos están dispersando o consumiendo in situ dichas semillas?
Materiales y Métodos
Área de estudio:
Diseño experimental-fototrampeo:
Tratamientos de exclusión:
El estudio se desarrolló de febrero a noviembre 2012 en un bosque de Mauritia localizado a 3.5 km de la estación biológica "El Zafire" de la Universidad Nacional de Colombia, sede Amazonía, ubicada sobre la cuenca media del Río Calderón en el Trapecio Amazónico colombiano (3°56'48' N - 69°53'11' W). La precipitación promedio anual es de 3 000 mm, con una época lluviosa entre diciembre y mayo, con un pico máximo en abril, y una época seca entre julio y noviembre, siendo agosto el mes más seco. La humedad relativa promedio es de 86.0 %, con una temperatura promedio anual de 26.0ºC, con valores mínimos de 15.0ºC y máximos de 36.0ºC (Jiménez, Moreno, Peñuela, Patino, & Lloyd, 2009; Toro-Vanegas, 2014).
Con el fin de identificar las especies de mamíferos involucradas en el proceso de remoción de semillas, se utilizaron 10 cámaras-trampa (2011 Bushnell(r) Trophy Cam), ubicadas a nivel del suelo (50 cm de altura) y en el dosel (15 m de altura aprox.), entre febrero y noviembre 2012. Las cámaras fueron rotadas teniendo en cuenta la disponibilidad de frutos caídos y en el caso de las estaciones de dosel, con base en la presencia de racimos con frutos bien desarrollados. En total fueron colocadas 12 estaciones en el sotobosque y tres estaciones en el dosel.
Todas las cámaras-trampa se programaron para registrar videos de 40 s, con intervalos entre cada activación de 20 s. De cada video se tomaron los siguientes datos: fecha, hora, ubicación, especie y comportamiento de forrajeo. Con base en la hora de registro, se clasificó el hábito de las especies entre diurnos (5:00 h a 18:00 h) y nocturnos (18:00 h a 5:00 h). Para el cálculo de las tasas de visita se empleó una modificación de los criterios propuestos por Monroy-Vilchis, Zarco-González, Rodríguez-Soto, Soria-Díaz, y Urios (2011), en que los videos de una sola especie en la misma cámara-trampa fueron tratados como visitas independientes de la siguiente manera:
i) videos consecutivos de diferentes individuos; ii) videos consecutivos de individuos de la misma especie separados por más de 1 h. Este criterio se usó cuando no era claro si una serie de videos correspondían al mismo individuo, de modo que los videos tomados dentro del mismo periodo de 1 h se consideraron como una sola visita; y iii) videos no consecutivos de individuos de la misma especie. En el caso de las especies gregarias, en los videos en los que se observó más de un individuo, el número de visitas independientes considerado fue igual al número de individuos observados. El esfuerzo total de muestreo se calculó como la suma de los días-trampa que cada cámara-trampa permaneció activa.
Se cuantificó la participación de los mamíferos terrestres en los procesos de dispersión y consumo in situ de frutos, mediante la utilización de dos tratamientos de exclusión (abierto y semi-abierto) con tres repeticiones. Las unidades experimentales estuvieron constituidas por parcelas de 0.5 × 0.5 m con frutos caídos de Mauritia flexuosa. El tratamiento abiertopermitió el libre acceso de mamíferos pequeños, medianos y grandes. El tratamiento semi-abierto consistió en cercar con una malla metálica cada unidad experimental (1.0 cm de luz y 50.0 cm de altura), dejando en la base de la malla cuatro aberturas de 10.0 × 10.0 cm. Este tratamiento permitió evaluar el efecto de los mamíferos pequeños y medianos (< 5.0 kg) excluyendo a las especies grandes (> 5.0 kg). Con el fin de determinar el número total de frutos dispersados o consumidos in situ, las unidades experimentales estuvieron activas durante 24 días y se utilizaron 100 frutos en cada repetición (600 frutos en total), los cuales fueron contados y revisados diariamente en la mañana (7:00-8:00 am). Además se evaluó visualmente el daño mecánico ocasionado por los animales y se determinó la viabilidad de la semilla teniendo en cuenta si el endospermo fue fracturado.
Para el análisis de los datos de fototrampeo, se clasificó los comportamientos de forrajeo obtenidos en cuatro diferentes categorías: a) consumo, cuando se evidenció manipulación y consumo de frutos, que fueron abandonados en el mismo lugar; b) dispersión, cuando se registró manipulación y traslado directo de frutos de un lugar a otro, o cuando el animal salió del campo de grabación transportando el fruto en su boca. En este punto, asumimos que el traslado del fruto implica de igual forma el traslado de la semilla; c) búsqueda, cuando el comportamiento del animal se restringió a permanecer frente a la cámara, removiendo hojarasca u olfateando los frutos; y d) sin actividad, cuando el animal pasó frente a la cámara sin detenerse o permaneció frente a la misma sin realizar ningún tipo de actividad. Asimismo, el análisis detallado de los videos permitió determinar el número de frutos consumidos y dispersados por cada especie.
Con los datos obtenidos se construyó un catálogo de las especies que visitan las zonas de caída de frutos o de racimos de M. flexuosa. También se determinó el papel (dispersión, consumo, o neutro) que los mamíferos exhibieron frente a los frutos. Para cada especie se calculó la tasa de visita como el porcentaje de registros con respecto al total de registros de todas las demás especies. De igual forma, se calculó la frecuencia de cada una de las categorías de comportamiento de forrajeo. Con esta información se pudo determinar la proporción de la participación de cada una de las especies en los procesos de remoción de semillas.
En los tratamientos de exclusión,con el fin de evaluar el efecto del tipo de tratamiento en el número de semillas dispersadas y el número de semillas consumidas in situ, se empleó un modelo lineal generalizado con distribución binomial negativa y función de enlace logarítmica. Este modelo es apropiado para datos de conteo donde la varianza es considerablemente mayor que la media (sobre dispersión) (Zuur, Ieno, & Smith, 2007; Logan, 2010). La variable respuesta fue el número de semillas y los factores fueron el tipo de tratamiento (abierto y semi-abierto) y el destino de las semillas (dispersadas o consumidas). Los análisis fueron realizados con el software R versión 3.1.1 (R Core Team, 2014), utilizando el paquete MASS (Venables & Ripley, 2002).
Resultados
Con un esfuerzo total de muestreo de 530 días/trampa, de las estaciones en el sotobosque y en el dosel (226 y 304 días/trampa, respectivamente), se obtuvieron 322 registros de 19 especies de mamíferos. Nueve especies se alimentaron de los frutos de M. flexuosa, mientras que cinco de ellas removieron los frutos de un lugar a otro. Las especies restantes solo exhibieron algún tipo de comportamiento de búsqueda, o no se registró ningún tipo de comportamiento de forrajeo para ellas (Cuadro 1). En los 322 videos analizados fueron registrados 438 eventos de conducta, donde los comportamientos relacionados con el consumo in situ de los frutos fueron los más frecuentes (34.2 %), seguido por las posturas sin actividad frente a los frutos (30.3 %), y finalmente los comportamientos de búsqueda (23.5 %) y dispersión (11.8 %).
Cuadro 1 Especies que vistan las zonas de caída de frutos y racimos de Mauritia flexuosa Table 1. Species visiting areas with fallen seeds and clusters of Mauritia flexuosa
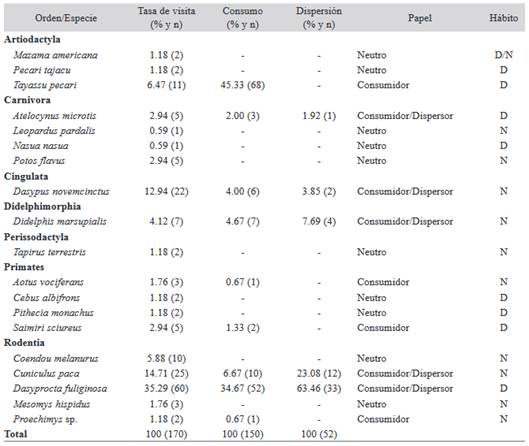
Con respecto al proceso de dispersión de semillas, el agutí negro (Dasyprocta fuliginosa) dispersa el 63.5 %, seguido por la paca (Cuniculus paca) con el 23.0 %. El mayor consumidor de frutos fue el pecarí de labio blanco (Tayassu pecari), que comió el 45.3 % de los frutos in situ, seguido por el agutí negro y la paca, que consumieron el 34.6 % y 6.6 %, respectivamente. Las demás especies mostraron valores inferiores al 10.0 % en ambas categorías (Cuadro 1). La proporción entre el consumo y la dispersión por parte de todas las especies registradas fue de 3:1.
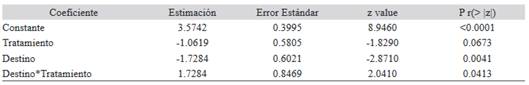
En los tratamientos de exclusión se obtuvo que para el tratamiento abierto, el 35.6 % de las semillas fueron consumidas, mientras que el 6.22 % fueron dispersadas. En el tratamiento semi-abierto, tanto el consumo como la dispersión de las semillas alcanzó el 12.3 %. Se encontraron diferencias entre el destino de las semillas, siendo significativamente mayor el número de semillas consumidas in situ (p=0.0041). La interacción entre los factores de tratamiento y el destino fue significativa, indicando que las diferencias entre el número de semillas consumidas in situ y el número de semillas dispersadas depende del tipo de tratamiento (Cuadro 2).
Cuadro 2 Resultados del modelo lineal generalizado binomial negativo para el número de semillas dispersadas y consumidas entre los tratamientos de exclusión abierto y semiabierto Table 2. Results of negative binomial generalized linear model for the number of seeds dispersed and consumed between open and semi-open exclusion treatments
Discusión
Los resultados de este trabajo muestran que casi el 50.0 % de las especies registradas están directamente involucradas con el consumo de los frutos de la palma M. flexuosa. De estas especies, los roedores de talla media fueron los que alcanzaron la mayor diversidad (tres especies), seguido por los primates (dos especies) y por último los pecaríes (una especie). Estos resultados concuerdan con otros estudios del neotrópico, donde se muestra que las palmas son consideradas especies clave para la alimentación de varias especies de fauna, en particular los mamíferos que dispersan y depredan sus semillas (Terborgh, 1986; Peres, 2000; Andreazzi et al., 2009). De las 550 especies de palmas reportadas para esta región (Govaerts & Dransfield, 2005), al menos 126 son la fuente principal de alimento de al menos 93 especies de mamíferos (Zona & Henderson, 1989; Zona, 2006; Andreazzi et al., 2009). De éstas, los roedores (Smythe, 1989; Forget, 1990; Galetti et al., 1992; Forget et al., 1994; Brewer, 2001; Silva & Tabarelli, 2001), los ungulados (Kiltie, 1981; Bodmer, 1991) y los primates (Cintra & Horna, 1997; Aquino & Bodmer, 2004), son los grupos con mayor número de especies involucradas directamente con el consumo de la pulpa, y/o las semillas.
Los números entre paréntesis indican el número de visitas de cada especie en la columna tasa de visita, y el número de semillas consumidas o removidas en las columnas consumo y dispersión. D: diurno; N: nocturno.
Numbers in parentheses indicate the number of visits of each species (visit ratecolumn) or the number of seeds consumed or removed (in the consumption and removal columns). D: daytime; N: nocturnal.Por otro lado, especies como la zarigüeya común (Didelphis marsupialis), el mono fraile (Saimiri sciureus) y el mico nocturno (Aotus vociferans) fueron igualmente registradas consumiendo los frutos de la Mauritia flexuosa, pero en bajas proporciones. Las dietas de D. marsupialis y S. sciureus, aunque incluyen frutos, están compuestas en mayor proporción por invertebrados (Fleagle, Mittermeier, & Skopec, 1981; Cordero & Nicolas, 1987), por lo tanto es de esperar que su participación en la dispersión de semillas sea baja. Mientras que el esfuerzo de muestreo en el dosel pudo ser insuficiente para registrar mayor actividad de especies difíciles de registrar como A. vociferans, teniendo en cuenta que el fototrampeo en el dosel fue menos efectivo. Por su parte el armadillo de nueve bandas (Dasypus novemcinctus) podría estar cumpliendo un importante papel en el control de invertebrados depredadores de semillas, dado que al manipular los frutos, aparentemente consume las larvas que se encuentran en el mesocarpio. Aunque no se tiene certeza sobre esta función, esta especie ha sido identificada en otros estudios como un importante consumidor de larvas de coleópteros, actuando como controladores biológicos (Redford, 1985; Bruno & Cuellar, 2000). Finalmente, poco se conoce sobre la ecología del zorro de orejas cortas (Atelocynus microtis), una de la especies de carnívoros menos conocidas en el mundo (Leite-Pitman, Beck, & Velazco, 2003; Koester, Azevedo, Vogliotti, & Duarte, 2008; Ayure & Gonzáles-Maya, 2014), y aunque su participación en el proceso de remoción de semillas de esta palma es limitada, los datos registrados sobre el consumo de los frutos son un importante aporte al conocimiento de la historia natural de ambas especies.
El agutí negro (Dasyprocta fuliginosa) y la paca (Cuniculus paca), consumen y remueven los frutos de M. flexuosa convirtiéndose en potenciales dispersores de sus semillas. Ambas especies han sido reportadas como consumidores frecuentes de los frutos de muchas especies de palmas en el neotrópico (Smythe, 1978; Smythe, 1989, Mendieta-Aguilar, Pacheco, & Roldán, 2015). En el caso del agutí negro, su efectividad como especie dispersora se ve acentuada por el comportamiento de enterrar las semillas en épocas de abundancia de alimento, muchas de las cuales son olvidadas aumentando así la probabilidad de germinación de las mismas (Smythe, 1978; Dubost, 1988; Howe, 1989). Además, en este estudio se pudo corroborar que el número total de semillas dispersadas por esta especie es proporcionalmente mayor a las consumidas in situ. Por su parte, Silvius y Fragoso (2003) encontraron que el agutí brasileño (Dasyprocta leporina) es un eficiente dispersor de cortas distancias, el cual contribuye a la distribución agregada de varias especies de árboles de semillas grandes en la Amazonía. Este patrón también fue reportado para otras especies de agutíes como Myoprocta exilis y D. leporina en la Guyana Francesa (Forget, 1990), D. leporina (Peres & Baider 1997) y Dasyprocta prymnolopha (Silva & Tabarelli, 2001) en Brasil, y D. punctata (Mendieta-Aguilar et al., 2015) en Bolivia donde la dispersión puede estar restringida a 5 m alrededor la planta madre. Aunque en este estudio no se determinó la distancia de dispersión por parte del agutí negro, se puede presentar una situación similar que podría tener grandes implicaciones para M. flexuosa. Por su parte, el éxito de germinación de las semillas de esta palma parece depender en gran medida del micrositio en el cual son depositadas, ya que está restringida a zonas inundables pobremente drenadas (Sioli, 1975; Urrego et al., 2013). Por tanto, si los dispersores alejan los frutos lo suficiente de la palma madre, pero a su vez depositan las semillas intactas en un lugar cercano dentro de la zona de bajos inundables, es probable que se garantice con mejor éxito la germinación y establecimiento de las nuevas plántulas.
Por su parte el pecarí de labio blanco (Tayassu pecari) aparece con una importante participación en el consumo in situ de los frutos, llegando a ser proporcionalmente mayor al de cualquier otra especie consumidora. Según los datos obtenidos mediante fototrampeo en todos los casos los frutos consumidos fueron parcialmente destruidos y depositados bajo la copa de los parentales. Este comportamiento puede llevar a un aumento significativo de la mortalidad de las semillas causada por patógenos, depredadores y herbívoros que concentran su actividad en la cercanía de los árboles semilleros (Janzen, 1970; Fragoso, 1997). Por ejemplo, la depredación por invertebrados generalmente depende de la densidad, ya que la concentración de pulpas o mesocarpios en estado de descomposición tiende a atraer una mayor cantidad de coleópteros especialistas (Coleoptera: Pachymerini). Las larvas de estos insectos parasitan los frutos de aproximandamente 20 especies de palmas en el neotrópico (Nilsson & Johnson, 1993; Delobel, Couturie, Khan, & Nilsson, 1995; Johnson, Zona, & Nilsson, 1995) aumentando las tasas de depredación de las semillas por efectos directos sobre los embriones (Janzen, 1971; Silvius & Fragoso, 2002; Galetti, Donatti, Pires, Guimarães, & Jordano, 2006). Los tratamientos de exclusión corroboran cuantitativamente el papel que cumplen los mamíferos terrestres en los procesos de consumo y dispersión de semillas. En el tratamiento abierto, al cual tuvieron acceso todas las especies, se presentó tanto dispersión como consumo in situ de semillas.
Sin embargo, existen diferencias significativas en éste último proceso. En el tratamiento semiabierto, en el cual se excluye a las especies de mayor tamaño (> 5.0 kg.), ambos procesos se presentaron en igual proporción. Este patrón indica que el consumo in situ que se dio en el tratamiento abierto y que puede favorecer la depredación de las semillas por efectos denso dependientes, está dado principalmente por las especies grandes como el pecarí de labio blanco.
En general, la proporción del consumo in situ de los frutos que favorece la mortalidad de las semillas por efectos denso-dependientes, es mayor que la dispersión. Este patrón puede tener implicaciones en la autoecología de la M. flexuosa, ya que la presión ejercida por los frugívoros a las especies productoras de frutos carnosos puede determinar sus estrategias reproductivas (Hampe, 2008). En el caso de esta palma se han observado diferencias en la producción de frutos en periodos consecutivos (Isaza, Galeano, & Bernal, 2013; Khorsand Rosa, 2013; Toro-Vanegas, 2014), que han sido en parte atribuidas a una estrategia de la especie para evitar la depredación de sus frutos en años consecutivos (Vélez, 1992; ToroVanegas, 2014). Es decir, la presión ejercida por los frugívoros aunado a la depredación de semillas por parte de invertebrados, pudo haber estimulado una gran producción de frutos en un periodo de tiempo determinado. Por ejemplo, el agutí negro hace un uso más intensivo del recurso según su disponibilidad como estrategia de forrajeo (Emsens et al., 2013), mientras que el pecarí de labio blanco lo aprovecha de manera masiva forrajeando en grandes manadas (Beck, 2006). Esta observación es apoyada por la hipótesis de saciación del depredador y del período óptimo de cosecha de frutos (Hampe, 2008). Probar dicha hipótesis en el contexto de M. flexuosa, implica cuantificar con exactitud la proporción de la dispersión por otros agentes diferentes a los mamíferos, como los peces (Goulding, 1989) e incluso por el agua (Ponce, 2002), ya que en las especies vegetales que habitan los bosques de Mauritia posiblemente existe una dualidad de medios de dispersión. En estos ecosistemas, un alto porcentaje de semillas de diferentes especies, incluida M. flexuosa, tienen la capacidad de flotar, garantizando la colonización de otros hábitats mediante dos o más agentes dispersantes (Ramírez & Brito, 1988).
En conclusión, los resultados obtenidos ubican a M. flexuosa como un importante recurso alimenticio para muchas especies de mamíferos. Además, aportan evidencia empírica sobre la importancia de las interacciones entre esta palma y la fauna consumidora de sus frutos, abriendo la perspectiva a nuevas investigaciones sobre dispersión efectiva, distancias de dispersión y efectos demográficos, que lleven a determinar con mayor exactitud la función específica de los mamíferos medianos y grandes sobre la ecología de esta palma.
Adicionalmente, la dispersión de semillas de especies con frutos grandes depende principalmente de frugívoros de tallas relativamente grandes(McConkey & Drake, 2002; Peres & van Roosmalen, 2002). Las especies involucradas en el consumo y dispersión de las semillas de M. flexuosa como la paca (C. paca), el agutí negro (D. fuliginosa), y el pecarí de labio blanco (T. pecari), se caracterizan igualmente por poseer un tamaño corporal entre mediano y grande (3.0 a 40.0 kg). Estas especies son sujetas a la caza en toda la cuenca amazónica (Peres, 2000; Peres & Palacios, 2007). Por tanto, son más susceptibles a la disminución de sus poblaciones, lo que eventualmente afectaría de manera directa los procesos de remoción de semillas de esta palma. Estos efectos podrían afectar la estructuración y dinámica de estos bosques casi monotípicos (mono específicos), que constituyen grandes valores ecológicos, económicos y culturales en toda la región amazónica.

