




 Spanish (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
 Cited by SciELO
 Similars in
SciELO
 uBio

 Permalink


Introducción
Procambarus clarkii (Girard, 1852) es una especie que se distribuye naturalmente en el sur de Estados Unidos y el noreste de México (Campos & Rodríguez-Almaraz, 1992; Hernández et al., 2008; Rodríguez-Almaraz et al., 1993; Rodríguez-Almaraz & Campos, 1994) en los estados de Chihuahua, Coahuila, Nuevo León y Tamaulipas (Torres & Álvarez, 2012). Presenta una elevada plasticidad fenotípica, rápido crecimiento somático, altas tasas reproductivas (Scalici et al., 2010; van Kuijk et al., 2021), una elevada tolerancia a la variación ambiental (Piersanti et al., 2018) y resistencia a diversas enfermedades (Ren et al., 2022). Además, tiene alta calidad nutricional como alimento (Li et al., 2021), por lo que se han desarrollado varios suplementos alimenticios que lo incluyen como ingrediente (Franco, 2014). Algunos de sus componentes se han utilizado en aplicaciones biomédicas para la reducción de tumores, como antiinflamatorio (Pu et al., 2011) y como promotores del proceso de cicatrización, por lo que se ha considerado un organismo con alto interés para la acuacultura (Jin et al., 2019; Loureiro et al., 2015). Debido a su alto valor comercial y facilidad de cultivo, esta especie se ha introducido en casi todos los continentes, excepto Australia y la Antártida (Oficialdegui, 2020). Ha sido catalogada dentro de las 100 especies exóticas con mayores efectos negativos sobre los ecosistemas en Europa (Mistri et al., 2019), por ser considerada una especie bastante agresiva que reduce la abundancia de moluscos, macrófitas, anfibios, insectos acuáticos y crustáceos nativos (Alcorlo et al., 2004; Gherardi, 2006; He et al., 2021), desplaza competitivamente a otras especies de acociles limitando su alimento y refugio (Álvarez et al., 2014; Hernández et al., 2008; O’Shaughnessey & Keller, 2019; Rodríguez-Almaraz & Campos, 1994). También es portador de parásitos de vertebrados (Sánchez & Angeler, 2006) y vector del oomiceto Aphanomyces astaci que provoca una alta mortandad en acociles nativos (Aquiloni et al., 2011). Además, por su forma de alimentación y hábitos de excavación, remueve constantemente los sedimentos, acelerando el proceso de eutrofización y promoviendo el cambio de un estado de agua clara a un estado turbio en los cuerpos de agua someros (Angeler et al., 2001; Rodríguez et al., 2003); por todo lo anterior, representa un gran riesgo para la biodiversidad y la conservación de los servicios ecosistémicos en los sitios donde se ha introducido (Álvarez et al., 2014; Lodge et al., 2012; Souty-Grosset et al., 2016).
El acocil rojo de pantano P. clarkii juega un papel importante en los ecosistemas como especie clave, ya que regula el flujo energético entre niveles tróficos y genera cambios en la organización y funcionamiento de los ecosistemas acuáticos (Franco, 2014; Rangel, 2009). Posee una alta capacidad de dispersión en el ambiente debido a que tiene una dieta generalista-oportunista (Gherardi & Barbaresi, 2008), aunque su abundancia también puede estar regulada por variables ambientales como la disponibilidad de recursos, temperatura, altitud y tasa de residencia del agua (Gil-Sánchez & Alba-Tercedor, 2002; Mistri et al., 2019; Scalici et al., 2010). Sin embargo, hay poca información acerca de la dinámica de su población en embalses tropicales de elevada altitud, por lo que el entendimiento de sus atributos poblacionales puede tener fuertes implicaciones para determinar los factores que pueden afectar su abundancia y distribución (Scalici et al., 2010). Por su parte, los análisis morfométricos se pueden utilizar para determinar el efecto de diversas variables ambientales sobre el desarrollo de los organismos o el posible efecto que los organismos pueden tener sobre el ambiente; por ejemplo, la longitud de las quelas de los acociles sirve para determinar el éxito competitivo, ya que es una estructura que utilizan para defenderse y atacar (Hossain et al., 2019).
Muchas de las introducciones de especies en ambientes acuáticos han sido planeadas como programas de producción como en el caso de P. clarkii; sin embargo, estas actividades han provocado una expansión en su distribución (Azofeifa-Solano et al. 2023; Hernández et al., 2008). En México, se ha reportado su presencia en los estados de Chihuahua, Nuevo León, Sonora, Coahuila, Durango, Tamaulipas, Baja California, Baja California Sur y al sur del país en Chiapas (Campos & Rodríguez-Almaraz, 1992; Hernández et al., 2008; Rodríguez et al., 2003; Rodríguez-Almaraz et al., 1993; Rodríguez-Almaraz & Campos, 1994). Recientemente, reconocimos que está especie se encuentra distribuida en el centro de México en los estados de México e Hidalgo, lo que representa una amenaza para las especies nativas y endémicas, en particular para el acocil nativo Cambarellus montezumae, por lo que el objetivo de este estudio fue determinar si las condiciones ambientales del embalse Taxhimay son propicias para el establecimiento de P. clakii, así como caracterizar los cambios en su abundancia, proporción de sexos, fecundidad y variación morfológica a lo largo de un ciclo anual.
Materiales y métodos
Área de estudio: El embalse Taxhimay (Fig. 1) se encuentra a 2 200 m.s.n.m. sobre el Eje Neovolcánico Transmexicano en la cuenca del rio Pánuco entre las coordenadas geográficas 19°48’32’’-19°50'28” N & 99°23’01’’-99°25’09’’ W en el área natural protegida de jurisdicción estatal “Santuario del agua y forestal Presa Taxhimay”. Es un embalse de 365 ha, con una longitud máxima de 4.1 Km y profundidades menores a 25 m que se recarga principalmente de escurrimientos provenientes de afloramientos de manantiales de las zonas más elevadas que llevan el agua por los ríos San Luis, Palomas y Las Moras. Su uso es principalmente para la irrigación y recreación, mientras que las zonas aledañas son de uso forestal, agrícola y pecuario con bosques de coníferas y de encino con pastizales y matorrales inducidos (Instituto de Información e Investigación Geográfica y Catastral del Estado de México, 2015).
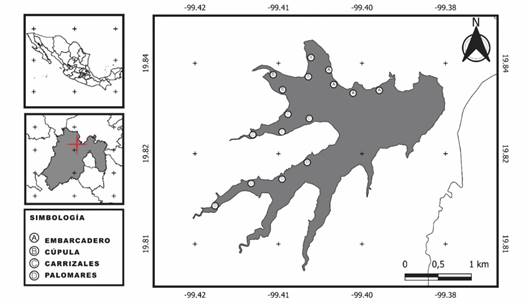
Fig. 1 Áreas de muestreo. Embarcadero (A), Cúpula (B), Carrizales (C) y Palomares (D) de Procambarus clarkii en el embalse Taxhimay, Estado de México. De cada área se consideraron cuatro sitios de muestreo. / Fig. 1. Location of the sampling areas. Embarcadero (A), Cúpula (B), Carrizales (C), and Palomares (D) of Procambarus clarkii in the Taxhimay reservoir, State of Mexico. From each area four sampling point were considered.
Metodología de campo: El registro de las variables ambientales se realizó en 4 áreas donde se recolectó P. clarkii y corresponden a: Embarcadero (A), Cúpula (B), Carrizales (C) y Palomares (D) (Fig. 1). Estas áreas fueron muestreadas mensualmente durante el periodo de agosto 2018 a julio 2019 donde se registró la temperatura, oxígeno disuelto y conductividad específica (YSI 85); transparencia con el disco de Secchi, pH (Conductronic PH10), alcalinidad, dureza total (Clesceri et al., 1998), clorofila a, ficocianinas in vivo en campo (fluorómetro Turner Designs, Aquafluor), turbidez en unidades nefelométricas con un turbidímetro Cole-Parmer y profundidad con una ecosonda Hondex Digital. En laboratorio, la clorofila a fue cuantificada con un fluorómetro Turner Designs modelo 10AU, de acuerdo con el método de Arar y Collins (1997). Para la determinación de nutrientes (fósforo reactivo disuelto y nitratos) se utilizó un espectrofotómetro marca HACH modelo DREL/2000 siguiendo los métodos estandarizados (Hach Company, 1993).
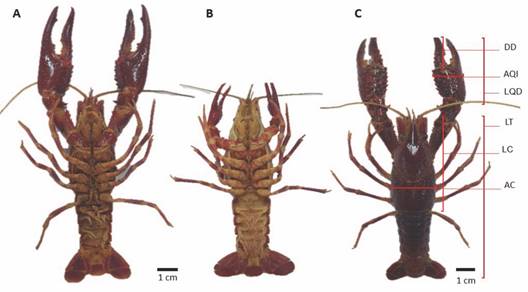
Fig. 2 Procambarus clarkii. A. Vista ventral del macho, B. Vista ventral de la hembra, C. Variables morfométricas; longitud total (LT), longitud del cefalotórax (LC), ancho del cefalotórax (AC), longitud de la quela derecha (LQD), ancho de la quela derecha (AQI) y dactilopodio derecho (DD). / Fig. 2. Procambarus clarkii. A. Ventral view of male, B. Ventral view of female, C. Morphometrical variables; total lenght (LT), cephalotorax lenght (LC), cephalotorax width (AC), right chela lenght (LQD), right chela width (AQI), and right dactilopodia length (LDI).
Monitoreo y caracterización de Procambarus clarkii: Se utilizaron trampas cilíndricas de doble cono de 50 cm de longitud y diámetro de abertura en los extremos de 5 cm que fueron elaboradas con malla camaronera de 1 cm de abertura de malla. Se distribuyeron cuatro trampas por área de muestreo dando un total de 16 trampas por mes. Se colocó cebo en cada trampa y se sujetó a un flotador a una distancia de 2-3 m de la orilla a una profundidad de entre 0.5 y 2.5 m. Se ubicaron por la tarde entre las 17:00 y 19:00 h y se recogieron al día siguiente entre las 10:00 y 13:00 h. Los organismos recolectados fueron cuantificados por sexo (Fig. 2A y Fig. 2B), para determinar el tipo de macho, se identificó el desarrollo de los procesos apicales del primer par de pleópodos y de los ganchos bien formados en los isquios del 3er y 4to par de pereíopodos; posteriormente, se tomaron nueve medidas morfométricas con la ayuda de un vernier digital con calibrador electrónico de 12 / 300 mm, las cuales fueron: longitud total (LT), longitud y ancho del cefalotórax (LC y AC) y longitud y ancho de las quelas derecha e izquierda (LQD, AQD, LQI y AQI), dactilopodio derecho e izquierdo (DD y DI) (Fig. 2C) (Sedik et al., 2018). Al terminar, los organismos fueron fijados en alcohol al 70 %, etiquetados y transportados al laboratorio; algunos ejemplares fueron depositados en la Colección Nacional de Crustáceos (Instituto de Biología, UNAM) con número de registro CNCR 36860. Para determinar los índices de fecundidad y nutrición, las hembras fueron pesadas en una balanza analítica marca Sartorius modelo CP124S; posteriormente, se les realizó una disección para extraer y pesar las gónadas y la hepatopáncreas para el cálculo de los índices gonadosomático (GSI) y hepatopancreático (HSI), los cuales se calcularon con la técnica de Jin et al. (2019).
GSI = 100 x Pg/Pc
HSI = 100 x Ph/Pc
Donde Pg corresponde al peso de la gónada, Pc al peso del cuerpo y Ph al peso de la hepatopáncreas.
Análisis de datos: Los datos de las variables ambientales se transformaron (excepto el pH) Log10(x + 1) y se realizó un análisis de componentes principales (PCA) con el programa CANOCO 4.5 (ter Braak & Šmilauer, 1998) para determinar los patrones y relación entre las variables ambientales y los sitios de muestreo (Legendre & Legendre, 2012). También se determinaron los valores promedios con desviación estándar para cada variable ambiental en cada mes de recolecta. Posteriormente, se realizó un análisis de correlación de Pearson utilizando las variables que explicaban el mayor porcentaje de variación ambiental en el PCA (ficocianinas, clorofila a, pH, transparencia de Secchi, pH y profundidad) y la abundancia de machos y hembras. Para los índices de fecundidad y nutrición se realizó un ANOVA de una vía para determinar la diferencia entre los meses de muestreo (Sokal & Rohlf, 2000) con el programa Sigma Plot 12.0 (Systat Software, Erkrath, Alemania). Para las variables morfométricas, se calcularon los valores promedios con desviación estándar para cada mes, fueron categorizados por sexos (hembras y machos) y se compararon entre machos y hembras con una prueba de U de Mann-Whitney para datos no paramétricos. Además, se analizó la relación entre la longitud total de machos y hembras y la longitud de sus quelas para determinar la relación entre las tallas y sexos de acuerdo con Hamasaki et al. (2020).
Resultados
Parámetros ambientales: En la Tabla 1 se muestra que la temperatura promedio varió entre 16.43 ± 0.55 °C en diciembre y 23.28 ± 0.68 °C en junio. La conductividad osciló entre 109.17 ± 17.83 µS/cm en agosto y 145.33 ± 2.38 µS/cm en junio. El porcentaje de saturación de oxígeno disuelto promedio fluctuó entre 56.57 y 97.33 % en diciembre y febrero, respectivamente, mientras que la concentración de oxígeno disuelto cambió de 5.27 mg/l a 9.06 mg/l en mayo y febrero, respectivamente. Los valores promedio de pH fueron menores en junio (6.92 ± 0.07) y mayores en agosto (8.9 ± 0.12). La alcalinidad total registró un valor promedio mínimo de 30.5 ± 0.71 mg/l de CaCO3 en junio y un valor máximo de 110.75 ± 9.0 mg/l de CaCO3 en agosto.
Tabla 1 Variables ambientales registradas en el embalse Taxhimay durante el periodo de agosto 2018 a julio 2019. / Table 1. Environmental variables registered in the Taxhimay reservoir during the period from August 2018 to July 2019.
| Meses | Temperatura (°C) | Conductividad (µS/cm) | % O2 | OD (mg/l) | pH | Alc. total (mg/l) |
| Agosto 2018 | 21.83 ± 0.37 | 109.17 ± 17.83 | 70.07 ± 1.05 | 6.30 ± 0.16 | 8.9 ± 0.12 | 110.75 ± 9 |
| Septiembre 2018 | 21.78 ± 0.40 | 118.75 ± 2.49 | 72.63 ± 2.92 | 6.38 ± 0.20 | 8.28 ± 0.22 | 95.5 ± 10.38 |
| Octubre 2018 | 19.97 ± 1.16 | 119.25 ± 1.37 | 59.62 ± 9.72 | 5.42 ± 0.77 | 7.63 ± 0.38 | 49.00 ± 26.0 |
| Noviembre 2018 | 18.12 ± 0.16 | 128.00 ± 4.08 | 58.27 ± 3.02 | 5.54 ± 0.28 | 7.58 ± 0.03 | 42.00 ± 4.00 |
| Diciembre 2018 | 16.43 ± 0.55 | 125.67 ± 2.11 | 56.57 ± 3.39 | 5.53 ± 0.28 | 7.38 ± 0.15 | 40.00 ± 0.00 |
| Enero 2019 | 17.11 ± 0.53 | 127.25 ± 3.98 | 65.69 ± 2.14 | 5.82 ± 0.22 | 7.39 ± 0.19 | 37.58 ± 1.02 |
| Febrero 2019 | 18.31 ± 0.89 | 125.58 ± 1.57 | 97.33 ± 2.25 | 9.06 ± 0.22 | 8.00 ± 0.20 | 37.80 ± 3.90 |
| Marzo 2019 | 20.03 ± 0.16 | 131.33 ± 1.83 | 79.29 ± 6.03 | 7.33 ± 0.37 | 7.79 ± 0.14 | 45.25 ± 1.50 |
| Abril 2019 | 22.22 ± 0.77 | 138.75 ± 5.74 | 91.33 ± 1.65 | 7.95 ± 0.26 | 8.84 ± 0.05 | 46.75 ± 0.50 |
| Mayo 2019 | 22.81 ± 0.10 | 143.78 ± 12.33 | 60.18 ± 9.62 | 5.27 ± 0.93 | 7.19 ± 0.36 | 53.60 ± 4.80 |
| Junio 2019 | 23.28 ± 0.68 | 145.33 ± 2.83 | 64.22 ± 0.78 | 5.47 ± 0.00 | 6.92 ± 0.07 | 36.50 ± 2.12 |
| Julio 2019 | 22.83 ± 0.38 | 142.00 ± 1.89 | 67.63 ± 1.13 | 5.88 ± 0.02 | 7.02 ± 0.14 | 30.50 ± 0.71 |
Valores promedio ± desviación estándar de la temperatura, conductividad, porcentaje de oxígeno disuelto (% O2), concentración de oxígeno disuelto (OD), pH y alcalinidad (Alc. total). Los datos promedio son resultado de cuatro mediciones. / Average values ± standard deviation of the temperature, conductivity, percentage of dissolved oxygen (% O2), concentration of dissolved oxygen (OD), pH, and total alkalinity (Alc. total). The average data is based on four measurements.
En la Tabla 2 se muestra que la dureza total promedio varió entre 29.66 ± 6.95 mg/l de CaCO3 en febrero y 115.50 ± 21.0 mg/l de CaCO3 en diciembre. La transparencia del disco de Secchi mostró el valor promedio más bajo de 43.75 ± 22.98 cm durante en julio, mientras que el más alto de 141.88 ± 14.33 cm en diciembre. Para los pigmentos fotosintéticos, la ficocianina varió entre 0.83 ± 0.10 en agosto y 119.8 ± 9.35 en marzo; la clorofila a fluctuó entre 30.23 ± 4.10 µg/l en diciembre y 250.98 ± 33.30 µg/l en abril. Los nutrientes en forma de N-NO3 variaron entre 0.65 ± 0.07 mg/l en julio y 3.16 ± 1.78 mg/l en agosto; el valor promedio más bajo de P-PO4 fue de 0.01 ± 0.0 mg/l que se registró en seis meses, mientras que el más alto fue de 1.0 ± 0.08 mg/l en enero.
Tabla 2 Variables ambientales registradas en el embalse Taxhimay durante el periodo de agosto 2018 a julio 2019. / Table 2. Environmental variables registered in the Taxhimay reservoir during the period from August 2018 to July 2019.
| Mes | Dureza (mg/l) | Transparencia (cm) | Ficocianina | Clorofila a (µg/l) | N-NO3 - (mg/l) | P-PO4 (mg/l) |
| Agosto 2018 | 67.99 ± 2.09 | 118.17 ± 14.02 | 0.83 ± 0.10 | 42.16 ± 11.6 | 3.16 ± 1.78 | 0.34 ± 0.02 |
| Septiembre 2018 | 50.47 ± 11.85 | 82.38 ± 6.70 | 1.75 ± 0.31 | 49.70 ± 6.00 | 1.00 ± 0.00 | 0.50 ± 0.60 |
| Octubre 2018 | 42.69 ± 13.38 | 94.96 ± 8.68 | 1.33 ± 0.35 | 45.75 ± 9.78 | 0.98 ± 0.05 | 0.05 ± 0.10 |
| Noviembre 2018 | 72.22 ± 13.78 | 127.92 ± 5.29 | 1.44 ± 0.68 | 39.27 ± 9.11 | 1.57 ± 0.39 | 0.08 ± 0.04 |
| Diciembre 2018 | 115.50 ± 21.0 | 141.88 ± 14.33 | 0.85 ± 0.35 | 30.23 ± 4.10 | 0.83 ± 0.10 | 0.01 ± 0.00 |
| Enero 2019 | 52.08 ± 0.51 | 125.52 ± 15.36 | 1.58 ± 0.48 | 33.90 ± 3.69 | 0.85 ± 0.13 | 1.00 ± 0.08 |
| Febrero 2019 | 29.66 ± 6.95 | 98.96 ± 12.10 | 2.28 ± 0.66 | 39.59 ± 0.74 | 1.33 ± 0.10 | 0.01 ± 0.00 |
| Marzo 2019 | 42.00 ± 1.48 | 90.21 ± 6.57 | 119.80 ± 9.35 | 48.38 ± 3.28 | 0.73 ± 0.13 | 0.01 ± 0.00 |
| Abril 2019 | 37.62 ± 0.51 | 83.96 ± 5.46 | 66.91 ± 9.45 | 250.98 ± 33 | 1.20 ± 0.08 | 0.02 ± 0.01 |
| Mayo 2019 | 46.20 ± 2.78 | 74.17 ± 14.14 | 41.97 ± 15.04 | 95.34 ± 18.6 | 0.90 ± 0.10 | 0.01 ± 0.01 |
| Junio 2019 | 38.85 ± 8.91 | 50.42 ± 0.59 | 66.78 ± 5.14 | 122.52 ± 23 | 1.15 ± 0.07 | 0.01 ± 0.00 |
| Julio 2019 | 49.35 ± 7.42 | 43.75 ± 22.98 | 101.7 ± 46.91 | 145.80 ± 12 | 0.65 ± 0.07 | 0.01 ± 0.00 |
Valores promedio ± desviación estándar de la dureza, transparencia del disco de Secchi, turbidez, ficocianina, clorofila a, nitrógeno como N-NO3 y fosforo como P-PO4. Los datos promedio son resultado de cuatro mediciones. / Average values ± standard deviation of Secchi disk transparency, turbidity, phycocyanin, chlorophyll a, nitrogen as N-NO3 and phosphorus as P-PO4. Average data is based on four measurements.
El primer eje del análisis de componentes principales explicó el 49.7 %, mientras que el segundo eje explicó el 31 % de la variación ambiental registrada durante el año de muestreo. La ficocianina, la clorofila a y el pH fueron las principales variables que explicaron el mayor porcentaje de variación y se relacionaron positivamente con marzo (3) y abril (4), mientras que octubre (10), noviembre (11), diciembre (12) y enero (1) se relacionaron inversamente con estas variables. También se observa que en mayo (5), junio (6) y julio (7) se agruparon en otro cuadrante, mientras que agosto (8) y septiembre (9) formaron otro grupo (Fig. 3).
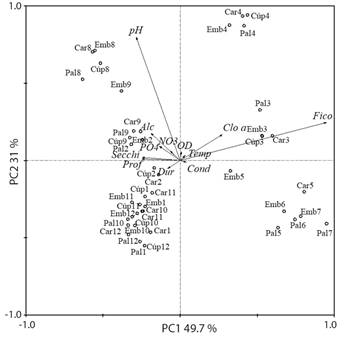
Fig. 3 Análisis de componentes principales (PCA) de las variables ambientales registradas en las cuatro áreas de muestreo en el Embarcadero (Emb), Cúpula (Cúp), Carrizales (Car) y Palomares (Pal) del embalse Taxhimay (Estado de México). Los meses se refieren consecutivamente comenzado en enero (1) y terminando en diciembre (12). / Fig. 3. Principal component analysis (PCA) of the environmental variables recorded at the four sampling areas at the Embarcadero (Emb), Cúpula (Cúp), Carrizales (Car) and Palomares (Pal) of the (Car) and Palomares (Pal) of the Taxhimay Reservoir (State of Mexico). The months referred to consecutively starting in January (1) and ending in December (12).
Abundancia y distribución de P. clarkii: La abundancia de P. clarkii incrementó conforme avanzó el ciclo de muestreo de agosto 2018 a julio 2019 y se observa una relación inversa entre la profundidad promedio y la abundancia de P. clarkii. También se observa que los machos presentaron mayor abundancia en la mayoría de los meses con valores mínimos de cinco individuos en agosto y diciembre y valores máximos de 46 individuos en junio. Para las hembras se presentaron valores mínimos de cinco individuos en agosto y valores máximos de 45 individuos en mayo (Fig. 4A). La abundancia de P. clarkii fue mayor en la zona del Embarcadero con 92 machos y 60 hembras, seguido de Palomar con 85 machos y 53 hembras. La zona que presentó menor abundancia fue Cúpula con 34 machos y 36 hembras (Fig. 4B). Durante el muestreo se cuantificaron 240 machos reproductores forma I, 26 no reproductores forma II y 198 hembras.
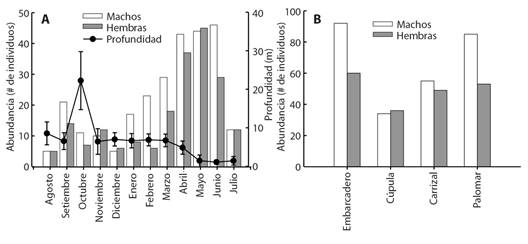
Fig. 4 A. Cambios en profundidad y abundancia de machos y hembras de P. clarkii, B. Distribución de machos y hembras P. clarkii en las cuatro áreas de muestreo registrados de agosto 2018 a julio 2019 en el embalse Taxhimay. / Fig. 4. A. Changes in depth and abundance of P. clarkii males and females recorded from August 2018 to July 2019 in the Taxhimay reservoir, B. Distribution de males and females of P. clarkii at the four sampling areas in the Taxhimay Reservoir.
El análisis de correlación de Pearson mostró una relación positiva entre ficocianina y la clorofila a vs la abundancia de machos (r = 0.63, p < 0.001 y r = 0.57, p < 0.001, respectivamente) y hembras (r = 0.62, p < 0.001 y r = 0.52, p < 0.001, respectivamente). La transparencia de Secchi, y la profundidad mostraron una correlación negativa para machos (r = -0.50, p < 0.001 y r = -0.49 p < 0.001, respectivamente) y hembras (r = -0.46, p < 0.01 y r = -0.37 p < 0.05, respectivamente), mientras que el pH no mostró correlación en ningún caso (p > 0.05).
Morfometría de P. clarkii: La Tabla 3 muestra los valores de las variables morfométricas de 266 machos y 198 hembras recolectados a lo largo del año. La longitud total y la longitud del cefalotórax fueron similares (U, p > 0.05) entre machos y hembras. La longitud y ancho de las quelas (p < 0.001), el ancho del cefalotórax (p < 0.05) y los dactilopodios fueron mayores en los machos (U, p < 0.001).
Tabla 3 Medidas morfométricas de machos y hembras de Procambarus clarkii registradas entre agosto 2018 y julio 2019 en el embalse Taxhimay. / Table 3. Morphometric measurements of males and females of Procambarus clarkii registered from August 2018 to July 2019 in the Taxhimay Reservoir.
| Variable | Sexo | Mín. | Máx. | Prom. | n | Valor U | p |
| Peso (g) | Machos | - | - | - | - | ||
| Hembras | 4.3 | 46.5 | 23.3 ± 8.0 | - | |||
| LT (mm) | Machos | 47.7 | 131 | 92.3 ± 10.9 | 258 | 22 847 | 0.22 |
| Hembras | 34.4 | 114.2 | 92.9 ± 1.3 | 190 | |||
| LC (mm) | Machos | 22.9 | 59.1 | 45.3 ± 7.1 | 258 | 22 052 | 0.07 |
| Hembras | 27.7 | 56.6 | 45.1 ± 4.8 | 190 | |||
| AC (mm) | Machos | 9.8 | 28.8 | 21.3 ± 3.7 | 258 | 21 297 | 0.018 |
| Hembras | 12.6 | 27.2 | 21.1 ± 2.4 | 190 | |||
| LQD (mm) | Machos | 9.9 | 61 | 40.7 ± 10.2 | 258 | 13 977 | < 0.001 |
| Hembras | 13.9 | 51.2 | 31.5 ± 6.2 | 190 | |||
| AQD (mm) | Machos | 2.6 | 21.4 | 13.5 ± 3.8 | 258 | 16 710 | < 0.001 |
| Hembras | 4 | 17.5 | 11.4 ± 2.5 | 190 | |||
| DD (mm) | Machos | 5.5 | 44.8 | 23.9 ± 6.1 | 258 | 11 568 | < 0.001 |
| Hembras | 7.5 | 28.3 | 18.6 ± 3.9 | 190 | |||
| LQI (mm) | Machos | 10.9 | 62.7 | 41.2 ± 9.7 | 258 | 12 344 | < 0.001 |
| Hembras | 14.4 | 52.5 | 30.7 ± 6.4 | 190 | |||
| AQI (mm) | Machos | 2.9 | 21.6 | 13.7 ± 3.7 | 258 | 15 046 | < 0.001 |
| Hembras | 4.2 | 19.9 | 11.0 ± 2.7 | 190 | |||
| DI (mm) | Machos | 5.8 | 44.3 | 24.0 ± 6.2 | 258 | 10 503 | < 0.001 |
| Hembras | 6.7 | 31.3 | 18.4 ± 4.0 | 190 |
Valor mínimo (mín.), máximo (máx.) y promedio (prom.) ± desviación estándar del peso, longitud total (LT), longitud del cefalotórax (LC), ancho del cefalotórax (AC), longitud de la quela derecha (LQD), ancho de la quela derecha (AQD), dactilopodio derecho (DD), longitud de la quela izquierda (LQI), ancho de la quela izquierda (AQI) y dactilopodio izquierdo (DI). Las diferencias estadísticas entre machos y hembras fueron calculadas con una prueba de U de Mann-Whitney. / Minimum (mín.), maximum (máx.) and average (prom.) ± standard deviation values of weight, total lenght (LT), cephalotorax lenght (LC), cephalotorax width (AC), right chela lenght (LQD), right chela width (AQD), right dactylus (DD), left chela lenght (LQI), left chela width (AQI), and letf dactylus (DI). Statistical differences between males and females were calculated with a Mann-Whitney U test.
La regresión lineal para la longitud total de machos y de longitud de la quela derecha fue y = 0.682x-25.646, R2 = 0.487, p < 0.001 la longitud total de hembras y de longitud de la quela derecha fue de y = 0.473x-13.037, R2 = 0.439, p < 0.001 (Fig. 5A). La longitud total de machos y de longitud de la quela izquierda fue y = 0.705x-27.750, R2 = 0.481, p < 0.001 y la longitud total de hembras y de longitud de la quela izquierda fue y = 0.488x-15.739, R2 = 0.337, p < 0.001 (Fig. 5B).
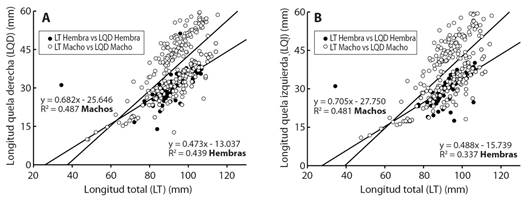
Fig. 5 A. Relación longitud total-longitud de quela derecha en machos y hembras de P. clarkii, B. Relación longitud total-longitud de quela izquierda en machos y hembras de P. clarkii. / Fig. 5. A. Total length-right chela length relationship in males and females of P. clarkii, B. Total length-left chela length relationship in males and females of P. clarkii.
Fecundidad y nutrición: Los meses que presentaron mayor índice gonadosomático (GSI) fueron septiembre, junio y julio; el menor valor se presentó en abril, mayo y noviembre (Fig. 6A). De acuerdo con la prueba de ANOVA y post hoc Tukey, los meses que presentaron un valor promedio superior fueron septiembre, febrero, junio y julio (p < 0.001). Los meses que presentaron mayor índice hepatopancreático (HSI) fueron junio, julio y mayo, mientras que diciembre, octubre y noviembre presentaron los menores valores (Fig. 6B). De acuerdo con la prueba de ANOVA y post hoc Tukey, los meses que presentaron un valor promedio superior fueron mayo, junio y julio (p < 0.001).
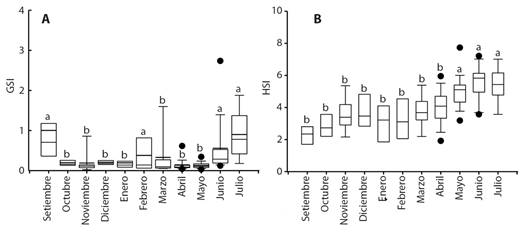
Fig. 6 A. Índice gonadosomático (GSI), B. Índice hepatopancreático (HSI) de las hembras de P. clarkii registradas de septiembre 2018 a julio 2019. Meses con diferencias significativas (p < 0.001) marcados con las letras a y b. La línea horizontal representa la mediana, las barras indican la variabilidad fuera de los cuartiles excluyendo los valores atípicos (puntos). / Fig. 6. A. Gonadosomatic index (GSI), B. Hepatopancreatic index (HSI) of P. clarkii females recorded from September 2018 to July 2019. Months with significant differences (p < 0.001) marked with letters a and b. The horizontal line inside the box represents the median, whiskers indicate variability outside the quartiles excluding outliers (dots).
Discusión
Se ha reportado que Procambarus clarkii es una especie que tiene un amplio intervalo de tolerancia ambiental, lo que ha contribuido a su exitosa colonización de nuevos ambientes (Gherardi, 2006; Gherardi, 2007; Oficialdegui, 2020; Scalici et al., 2010) donde los estadios juveniles son los más susceptibles a los cambios ambientales (Angeler et al., 2001; Jin et al., 2019; Rodríguez, 2001; Torres & Álvarez, 2012). Entre las variables físicas y químicas con mayor efecto en el desarrollo de esta especie encontramos la temperatura; Sánchez-Saavedra et al. (1993) estimaron que la temperatura óptima para un buen crecimiento va de 14 a 18 ºC, mientras Gutiérrez-Yurrita et al. (1998) refieren un intervalo óptimo entre los 18-19 ºC; Jin et al. (2019) entre los 19 y 20 ºC, mientras que Ahmadi (2018) reporta un amplio rango que va de 16 a 28 ºC. En este estudio, se registraron valores que van desde 16.43 ± 0.55 °C en diciembre y 23.28 ± 0.68 °C en junio, por lo que la temperatura es adecuada para el desarrollo de P. clarkii. Para el oxígeno disuelto, se ha reportado que la concentración de oxígeno debe ser mayor a 3 mg/l (Issa et al., 1999); el valor mínimo promedio registrado en este trabajo fue de 5.27 ± 0.93 ºC, lo cual concuerda con los valores referidos por Ahmadi (2018) y Jin et al. (2019). Gutiérrez-Yurrita et al. (1998) reportan que la temperatura y el oxígeno disuelto pueden afectar la tasa metabólica de P. clarkii y, por lo tanto, en su actividad a lo largo de un día.
El valor promedio mensual del pH estuvo entre 6.92 ± 0.07 y 8.9 ± 0.12 unidades, lo que concuerda con Sánchez-Saavedra et al. (1993) y Gutiérrez-Yurrita et al. (1998). Los intervalos de tolerancia para la dureza y la alcalinidad del agua van desde los 50 a 400 mg/l de CaCO3 (Gutiérrez-Yurrita & Montes, 2004). A lo largo del muestreo, estas medidas se encontraron cercanas a estos intervalos; por su parte, la alcalinidad presentó valores mínimos de 30.5 ± 0.71 mg/l y valores máximos de 110.75 ± 9 mg/l. La dureza presentó valores entre 29.66 ± 6.95 mg/l y valores máximos de 115.5 ± 21 mg/l. Con técnicas de modelado de nicho, Azofeifa-Solano et al. (2023) encontraron que P. clarkii tiene una alta probabilidad de invasión en las zonas de montaña y mesetas de la región Mesoamericana y del Caribe.
La amplia tolerancia ambiental y elevada capacidad de supervivencia de P. clarkii pueden ser adjudicadas a su alta plasticidad fenotípica (Gherardi, 2006; Gherardi, 2007; Oficialdegui, 2020) resultado de un tipo de genotipo basal o generalista, que le permite expresar caracteres según los cambios ambientales (Torres & Álvarez, 2012). Además, posee otras características que le garantizan la supervivencia y la dispersión como, el ser un organismo politrófico, oportunista, tener una gran capacidad de dispersión, incluso terrestre cuando la humedad del ambiente se lo permite, una alta tasa de reproducción y de agresividad (Armendáriz-Ortega, 2011; Barbaresi & Gherardi, 2000; Brown et al., 1992; Jin et al., 2019). Con estas características y las variables ambientales que se encuentran dentro de su intervalo de tolerancia, podemos decir que el embalse Taxhimay, cuenta con las condiciones físicas y químicas necesarias para el establecimiento y desarrollo de la población de P. clarkii.
De acuerdo con el PCA, la ficocianina, clorofila a y pH tienen un importante efecto en la variación ambiental. Esto podría ser explicado por la alta fluctuación en el nivel del agua que sufre el embalse a lo largo del año. En marzo se registró un fuerte incremento en ficocianinas lo cual se podría atribuir al incremento en cianobacterias; sin embargo, en este mes se abre la compuerta para la irrigación, lo que provocó que el nivel del agua disminuyera entre 10 a 15 m lo cual favoreció una marcada reducción de ficocianinas en abril y un fuerte incremento en clorofila a. Valeriano-Riveros et al. (2014) refieren para el embalse de Valle de Bravo que la reducción en el nivel del agua provocó una disminución de cianobacterias y un incremento de diatomeas lo cual podría estar pasando también en Taxhimay. Posterior a estos meses, se cerró la compuerta e inició el llenado del embalse a través de los afluentes y el inicio de la época de lluvia, por lo cual se agruparon en el análisis los meses de junio y julio. Por otro lado, se agruparon los meses de agosto y septiembre cuando se presentó la mayor precipitación; el último grupo representó a los meses de estiaje y con menores temperaturas que corresponde al período entre octubre y enero de acuerdo con la Comisión Nacional del Agua (CONAGUA, 2018).
Los cambios en la abundancia de P. clarkii se explican parcialmente con los cambios de nivel de agua. El embalse Taxhimay, así como otros embalses en el país, se encuentran azolvados, lo que ha reducido drásticamente su capacidad para almacenar agua a lo largo de los años, esto es debido a la carencia de un plan de manejo para los sedimentos y los elevados costos que conlleva un dragado (Sandoval, 2016). De este modo, los meses donde la profundidad fue menor debido al drástico descenso en el nivel del agua, se presentaron las mayores abundancias de este acocil. Torres y Álvarez (2012) reportan que P. clarkii es un organismo enmadrigador terciario; esto quiere decir que excava madrigueras en el sedimento que utiliza temporalmente para hábitos reproductivos o para esconderse en condiciones adversas como sequias o bajas de temperatura, por lo que se presume que conforme el nivel de agua disminuía, la población de P. clarkii comenzó a desplazarse en busca de refugio, aumentando la captura lo cual se ve reflejado en el incremento de abundancia en los últimos meses del muestreo. Barbaresi y Gherardi (2000) mencionan que P. clarkii es una especie que se reproduce durante todo el año, pero posee un periodo marcado de incubación entre agosto y octubre. Esto concuerda con la tasa de captura de hembras en el presente trabajo, la cual entre agosto y octubre fue baja debido al proceso de resguardo para evitar la depredación y llevar a cabo la incubación de los huevos; posterior a estos meses, inició una mayor captura, debido a que termina este periodo. Una vez que pasa la incubación, las hembras reinician sus actividades para buscar alimento. En diciembre existe una baja captura en ambos sexos, lo cual podría deberse a las condiciones climáticas, ya que en este período predominan condiciones secas y frías (CONAGUA, 2018). Como reportan Gutiérrez-Yurrita et al. (1998) la temperatura afecta el metabolismo de P. clarkii, ocasionando una disminución de sus actividades y de su crecimiento. La captura de una mayor proporción de machos (proporción machos / hembras = 0.74) concuerda con lo expuesto por Ahmadi (2018) y Mistri et al. (2019) que tuvieron una mayor captura de machos. Gherardi (2006) atribuye una mayor actividad por parte de los machos debido a la búsqueda de una pareja para la reproducción, mientras que Jin et al. (2019) encontraron una mayor tasa de captura de machos, atribuido a las actividades reproductoras de las hembras que tienden a permanecer en madrigueras mayor tiempo para el cuidado parental, por lo que la probabilidad de ser atrapadas es menor. Sánchez-Saavedra et al. (1993) también reportan que cuando las hembras inician su reproducción, entran en estado de aletargamiento, donde reducen su consumo de alimento y buscan refugio para disminuir el riesgo de depredación. Así mismo, Hamasaki et al. (2023) refiere una menor reproducción y perdida de huevos cuando la temperatura no es óptima para su desarrollo.
Los sitios que presentaron mayor abundancia fueron el embarcadero con 152 organismos, seguido de Palomar con 138, el que presentó la menor abundancia fue Cúpula con 70 organismos, seguida de Carrizal con 104. Esto podría estar relacionado con los cambios ocurridos en el embalse a lo largo del muestreo, ya que los sitios Embarcadero y Palomar, son más heterogéneos que Cúpula y Carrizal, debido a que tienen presencia de vegetación acuática (Ludwigia peploides), ya que puede brindarle refugio durante estadios más susceptibles a la depredación y también les provee una fuente de alimento (Gherardi, 2006; Ilhéu & Bernardo, 1995). Además, Wang et al. (2021) encontraron que los disturbios provocados por el hombre pueden facilitar la expansión de P. clarkii y exacerba los efectos negativos de las invasiones biológicas sobre las especies nativas, lo cual ayuda a explicar las mayores abundancias de esta especie en la zona de embarcadero, donde existe un mayor impacto antropogénico debido a las actividades turísticas que se realizan en esta área.
La longitud total y longitud del cefalotórax de P. clarkii no mostraron diferencias entre machos y hembras con valores de 92.3 ± 10.9 y 92.9 ± 1.9 mm, respectivamente (U de Mann-Whitney; p > 0.05). En el 2014, Franco analizó los promedios de la medida morfométrica de longitud total (LT) de colecciones de P. clarkii pertenecientes a instituciones de la zona norte del país. Determinó que el promedio de LT de machos fue de 87 mm (n = 170) y el promedio de LT en hembras fue 79 mm (n = 287). Además, registró 270 puntos de muestreo en dos cuencas hidrológicas, la cuenca de Baja California (centro-este) y la de Rio Bravo, donde analizó los promedios de LT de los organismos colectados. Para la provincia de Baja California, el promedio de LT fue de 93.4 mm, mientras que para la cuenca de Rio Bravo (cuenca de distribución nativa) el promedio de LT fue de 63.8 mm. De acuerdo con esto, se observó que las tallas promedio de P. clarkii más grandes registradas en México, son las registradas para el embalse Taxhimay. En otros países como China (Sedik et al., 2018), Italia (Dörr et al., 2021) y Costa Rica (Cabrera, 1994) se han registrado machos y hembras más pequeñas desde 64.4 hasta 115 mm, mientras que en este trabajo fue de 131 mm. Esto podría estar relacionado con la temperatura, de acuerdo con Hamasaki et al. (2023), la talla está determinada principalmente por la temperatura y la presencia de vegetación acuática, cuando los organismos son cultivados en aguas con temperatura entre los 18-20 °C, alcanzaran tallas superiores a los 72 mm LT pero poseen tiempos más largos de incubación, mientras que los organismos cultivados a 23-27 °C tienen menor talla pero alcanzan más rápido la edad reproductora y el tiempo de incubación se reduce. Esto concuerda con lo reportado por Montemayor et al. (2010) en donde especies como P. regiomontanus y P. clarkii cultivados entre los 25-29 °C alcanzan una talla promedio de 65.4 ± 8.98 mm con periodos de desove cortos, mientras que la temperatura máxima del embalse Taxhimay no superó los 23 °C.
Por otro lado, el tamaño de las quelas difirió entre sexos, siendo los machos los que presentaron mayores tallas en quelas que en las hembras, tanto para la longitud, ancho y largo del dáctilo. Sánchez-Saavedra et al. (1993) especifican que la competencia intraespecífica en machos durante la temporada reproductiva va a estar determinada por el tamaño de las quelas, ya que serán utilizadas para pelear con otros machos y facilitar la cópula con la hembra, usándolas para postrarlas sobre el sustrato y reproducirse; también mencionan que en caso de no tenerlas o tenerlas dañadas, podría verse afectada su eficiencia biológica. Sedik et al. (2018) determinaron que las medidas corporales de tipo alométrico se presentan principalmente en las quelas de los acociles, en donde una amplia gama de variables como la calidad del agua puede determinar este tipo de crecimiento, lo cual concuerda con Jin et al. (2019), quienes mencionan que los factores ambientales como la temperatura, presión antropogénica y la disponibilidad de alimento podrían ser determinantes para un óptimo desarrollo de esta especie. Hamasaki et al. (2020) determinaron que P. clarkii tiene un tipo de crecimiento alométrico positivo en las quelas atribuido a que en machos es un carácter de dimorfismo sexual, y juega un papel importante en la reproducción. La diferencia en la talla de las quelas entre machos y hembras es claramente marcada, ya que las quelas fungen como sus principales herramientas para defenderse de potenciales depredadores y competir eficazmente por recursos (Cabrera, 1994; Wang et al., 2021).
La fecundidad y nutrición calculada mediante los índices gonadosomático y hepatopancreático muestra que cuando los valores de GSI son mayores, los de HSI son menores y viceversa. Esto está relacionado con la inversión energética hacia la reproducción, nutrición y proceso de muda, ya que cuando los organismos entran en un estadio reproductor, la energía almacenada se destina a las gónadas (GSI mayor), cuando están en un estadio de reposo posterior a la reproducción o no reproductiva, la energía adquirida se almacena (HSI aumenta) para realizar los procesos de muda y entrar de nuevo en un estadio reproductivo, por lo tanto, podemos decir que tienen una relación negativa. De acuerdo con Jin et al. (2019), esto es debido a que cuando las hembras inician su estadio reproductivo, parte de la reserva energética de la hepatopáncreas es invertida en la producción de gametos y en la muda. Daniels et al. (1994) estimaron que la temperatura y el fotoperiodo determinan el tiempo de maduración de las gónadas y la producción de huevos, de este modo se obtuvieron los valores más altos de GSI cuando las hembras de P. clarkii eran sometidas a temperaturas constantes frías (20 ºC) y a fotoperiodos cortos. Además, estimaron que la temporada reproductiva ocurre durante el verano entre agosto y septiembre (Alcorlo et al., 2009; Hamasaki et al., 2020; Hamasaki et al., 2023; Jin et al., 2019), lo cual concuerda con los resultados obtenidos en este estudio, donde septiembre presentó valores altos de GSI contra valores bajos de HSI. Rodríguez (2001) estimó que la temporada reproductiva de P. clarkii se da entre agosto y noviembre, en donde los valores de GSI son los más altos, ya que en octubre el GSI disminuye e incrementa el HSI dando por finalizada la temporada reproductiva lo cual coincide parcialmente con nuestros datos donde registramos un valor alto de GSI durante septiembre. También esto concuerda por lo descrito por Dendy (1978) donde la época de desove generalmente empieza en agosto y termina en octubre, sin embargo, también menciona que se han registrado desoves esporádicos en noviembre y diciembre.
De todo lo anterior, resulta evidente que el embalse Taxhimay tiene las condiciones ambientales adecuadas para un correcto desarrollo de la población de P. clarkii. Esto resulta positivo si se considera que los habitantes de los poblados aledaños de escasos recursos han empezado a utilizar a esta especie, principalmente como alimento. Sin embargo, debe tomarse en cuenta que los cuerpos de agua de la parte central de México son ricos en especies endémicas de acociles (Armendáriz-Ortega, 2011), para muchas de las cuales el establecimiento de P. clarkii puede representar un riesgo importante. Por lo tanto, se debe buscar incentivar su erradicación mediante técnicas de extracción directa y llevar una constante capacitación con los pobladores locales para evitar la dispersión de esta especie. Concretamente, en las zonas aledañas al embalse Taxhimay habita naturalmente el acocil endémico Cambarellus montezumae, cuya talla adulta es considerablemente menor a la de P. clarkii, por lo que sus poblaciones podrían ser fácilmente desplazadas por P. clarkii, por la capacidad de adaptarse al ambiente y aprovechar recursos como el alimento y los refugios. Esta misma situación podría repetirse en otros cuerpos de agua de la zona si P. clarkii se dispersa y establece en ellos, comprometiendo severamente la diversidad y distribución de este grupo de crustáceos.
La presencia de P. clarkii en el embalse Taxhimay presenta mayores tallas que en otros sitios y es alarmante por la cercanía que esta población tiene con otros cuerpos de agua, ya que está ampliamente documentado los efectos negativos que genera en los ecosistemas acuáticos que coloniza, por lo que se recomienda tomar medidas de mitigación para evitar su dispersión.
Declaración de ética: los autores declaran que todos están de acuerdo con esta publicación y que han hecho aportes que justifican su autoría; que no hay conflicto de interés de ningún tipo; y que han cumplido con todos los requisitos y procedimientos éticos y legales pertinentes. Todas las fuentes de financiamiento se detallan plena y claramente en la sección de agradecimientos. El respectivo documento legal firmado se encuentra en los archivos de la revista.

