


 Spanish (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
 Cited by SciELO
 Similars in
SciELO
 uBio

 Permalink

Los bosques secos cubren cerca del 50 % de áreas de los bosques tropicales y subtropicales y son esenciales para los medios de vida y bienestar de millones de los habitantes más pobres del planeta (Blackie et al., 2014). El bosque seco tropical (Bs-T) se considera actualmente como uno de los ecosistemas más amenazados del mundo, del cual un poco más de la mitad (54 %) se ubica en América del Sur y el resto en Norte y Centro América, África y Eurasia, y una pequeña proporción (3.8 %) en Australasia y Asia suroriental (Miles et al., 2006). A pesar de su gran importancia, y los servicios ambientales (tal como captura de carbono y aquellos derivados de la conservación de biodiversidad) que prestan, los bosques secos están dentro de los más amenazados y menos estudiados, lo cual los pondría en mayor riesgo que los húmedos (Miles et al., 2006; Portillo-Quintero & Sánchez-Azofeifa, 2010; Blackie et al., 2014).
No se conoce con exactitud el área ocupada por el Bs-T en Colombia, debido al alto nivel de transformación de estos bosques (Pizano & García, 2014), ni el impacto en la biodiversidad florística de estos ecosistemas. Los Bs-T cubrían 8.1 millones de hectáreas y se localizan geográficamente en las regiones de la llanura Caribe y valles interandinos de los ríos Magdalena y Cauca, desde el nivel del mar hasta aproximadamente 1 000 m de altitud, en los departamentos del Valle del Cauca, Tolima, Huila, Cundinamarca, Antioquía, Sucre, Bolívar, Cesar, Magdalena, Atlántico y sur de la Guajira. Este tipo de bosques también se presentan en menor extensión en las Islas de San Andrés, en la región norte de la península de la Guajira, en Santander, Norte de Santander y Valle del Cauca (IAvH, 1998).
El impacto en la flora de estos fragmentos de bosques afectan su funcionalidad y los servicios ecosistémicos que oferta, tal como la captura de carbono, la protección del suelo, el ciclaje de nutrientes, la regulación del agua, el control biológico y la provisión de alimentos y de madera (Portillo-Quintero & SánchezAzofeifa, 2010). A pesar de esto, el Bs-T cuenta con una gran diversidad de especies (Gentry, 1995; Pennington, Prado, & Pendry, 2000), las cuales presentan una alta variedad de patrones fenológicos (Reich, 1995) y de estrategias, que les permiten su adaptación durante la época seca (Santiago, Kitajima, Wright, & Mulkey,2004). Los Bs-T contienen aproximadamente la mitad de especies de plantas por área que los bosques húmedos y muy húmedos tropicales (Peña-Claros et al., 2012), y son las Leguminosae, Bignoniaceae, Sapindaceae y Capparaceae las familias con mayor diversidad en estos bosques en Colombia. En algunas regiones del país, como el Magdalena, las Euphorbiaceae y Rubiaceae también son diversas; mientras que en el Caribe y la región del norte del Tolima, el género Capparis (Capparaceae) posee el mayor número de especies, seguido de Trichilia (Meliaceae), Bauhinia, Machaerium, Coccoloba, Randia, Paullinia y Tabebuia (IAvH, 1998).
La biomasa forestal es uno de los más grandes y dinámicos sumideros de carbono en estos ecosistemas (Houghton, 2005); sin embargo, es necesario conocer la magnitud de este servicio ambiental en estos bosques. Se ha reportado un rango de carbono en biomasa en bosques secos tropicales maduros de 34 a 334 t C/ha, lo cual se incrementa linealmente con la precipitación (Becknell, Kissing Kucek, & Powers, 2012). El desconocimiento de esta dinámica se presenta debido parcialmente a que la biomasa forestal tropical varía en el paisaje, con los cambios en el tiempo, la composición de especies y factores abióticos, como la topografía, la fertilidad del suelo, la luz y la disponibilidad de agua (Baraloto et al., 2011). A pesar de esta importancia, el clima y suelos fértiles adecuados para la agricultura y demás actividades humanas, han provocado deforestación y explotación selectiva de especies, lo cual genera la pérdida de biodiversidad y fragmentación del ecosistema (Alvear, 2000).
La deforestación actualmente va en aumento, lo que causa la fragmentación de bosques y la limitación del cauce de ríos y quebradas (Sweeney et al., 2004),en donde la agricultura y las pasturas, son las principales actividades que han modificado el uso de la tierra (Bujan et al.,2003). Prácticamente, todos los bosques secos remanentes en el mundo están expuestos a diferentes amenazas (resultado de la actividad humana), y se estimó una pérdida del 12 % de estos bosques en Sur América para el período 1980-2000 (Mileset al., 2006). La intensificación agroindustrial está comúnmente acompañada de una reducción en la cobertura arbórea, diversidad de hábitats y conectividad forestal (Harvey et al., 2008), lo cual conduce a una extinción de especies y a la pérdida de servicios ecosistémicos (Goulart, Carvalho-Ribeiro, & Soares-Filho, 2016). Este incremento en el área destinada a pasturas, genera la necesidad de estudiar los flujos de carbono provenientes de estos cambios, y las estrategias de mitigación de esas emisiones de CO2, tales como la preservación y restauración de los bosques tropicales (Ibrahim et al., 2007). Del CO2 atmosférico una parte es capturada y acumulada en la biomasa forestal por medio de la fotosíntesis, y otra parte es transferida a la necromasa, materia orgánica en descomposición y al suelo; sin embargo, algunos factores físicos y edáficos, afectan la estructura comunitaria y las reservas de carbono en los bosques tropicales (Chave, Condit, Lao, Caspersen, & Foster, 2003). La biomasa forestal, que se estima adecuadamente con modelos alométricos de biomasa (Andrade, Segura, & Forero, 2014), se ha estimado que contiene el 50 % de carbono (IPCC, 2006).
1La agricultura orgánica, y específicamente la de arroz, es un sistema de producción que busca la sostenibilidad de la tierra, especialmente en términos de conservación de la biodiversidad, y mantenimiento de la productividad (Stolton, 2002; Dermiyati &Niswati, 2014). El objetivo de este estudio fue estimar el impacto de la matriz agropecuaria (pastura y arrozal orgánico) en la diversidad florística y el carbono almacenado en bosques riparios en la zona seca del norte del Tolima, Colombia. Los resultados permitirán mejorar el manejo agropecuario con miras a contribuir en la conservación de especies arbóreas en los bosques riparios y el carbono almacenado en la biomasa aérea.
Materiales y Métodos
Área de estudio
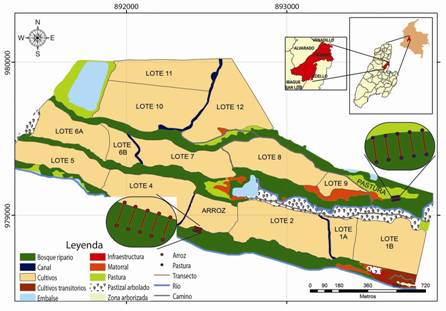
El estudio se realizó en julio 2013 en la Hacienda Gascoña (4°24′17.9″ N - 74°02′46″ W; 403 m de altitud), ubicada en el Corregimiento de Doima, municipio de Piedras, Tolima (Fig. 1). El sitio se encuentra en la zona de vida de bosque seco tropical (Holdridge, 1996), con una temperatura promedio de 26 °C (Alcaldía de Piedras -Tolima, 2014) y precipitación anual de 1 300-1 600 mm/año (Corporación Autónoma Regional del Tolima, 2009). La Hacienda Gascoña se encuentra en el abanico de Ibagué que consiste en una serie de depósitos fluviovolcánicos constituidos por flujos de lodo y escombros, depósitos de tamiz y llanura de inundación, y flujos piroclásticos derivados principalmente por la actividad del Nevado del Tolima. En el municipio de Piedras, los sistemas agrícolas más dominantesson el arroz, maíz, sorgo y yuca; mientras que la ganadería doble propósito y la producción porcina dominan el sector pecuario (Alcaldía Municipal de Piedras, 2008). El municipio cuenta con un área de 123.15 ha de bosque ripario, los cuales, de acuerdo a la legislación colombiana, deberán estar revestidos de masa arbórea por su topografía y colindancia con causes hídricos (FAO, 2002; Cortolima, 2009).
Diseño de muestreo
Se seleccionaron dos bosques riparios que colindaban con una matriz de arrozales y con otra de pasturas en sistemas de manejo orgánico. En cada uno de los fragmentos de bosque, se establecieron cinco parcelas temporales de muestreo (PTM) (10 x 10 m; 100 m2) en el borde y en el interior, para un total de 500 m2 en cada posición por matriz (Fig. 1). Las parcelas del borde fueron establecidas con inicio en el límite del bosque y hacia el interior perpendicularmente, mientras que las del interior se montaron en el punto medio entre los dos bordes. La distancia entre parcelas de borde y de interior (seudoréplicas) fue de mínimo 20 m.
En cada parcela, se midió la altura total con clinómero y el diámetro a la altura del pecho (dap) con cinta diamétrica de todos los árboles con un dap ≥ 5 cm. Se identificaron a nivel de género o especie todos los individuos encontrados, con la experiencia y ayuda de dos pobladores locales y la colecta de muestras para su identificación en el Herbario Toli de la Universidad del Tolima. Las familias a las cuales pertenecen las especies, junto con sus identificadores, fueron consultadas de la base de datos de The Plant List (2013).
Riqueza y composición florística
Se estimó la abundancia, los valores absolutos y relativos de la abundancia y frecuencia (Magurran, 1988), dominancia (Baev & Penev, 1995) y con ellos el índice de valor de importancia (IVI) (Moreno, 2001). La diversidad alfa se estimó con base en la riqueza de especies (Whittaker, 1972), y los índices de diversidad de Margalef (Margalef, 1958), de dominancia de Simpson y de equidad de Shannon-Wiener (Jost & González, 2012).
Biomasa y carbono arriba del suelo
La biomasa arriba del suelo de árboles individuales se estimó con el empleo del modelo alométrico propuesto por Chave et al. (2005) para bosques secos tropicales: B = 0.112 * (r * dap2 * H)0.916. Donde: r: gravedad específica de la madera (g/cm3), dap: diámetro del tronco a la altura del pecho (cm) y H: altura total (m).
La gravedad específica de la madera fue consultada en la literatura especializada y en sección la base de datos The Global Wood Density (http://hdl.handle.net/10255/dryad.235; Chave et al., 2009; Zanne et al., 2009). El carbono en la biomasa se estimó empleando por defecto 0.5, el cual es recomendado por el Intergovernmental Panel on Climate Change (IPCC, 2006).
Se realizó un análisis de varianza 2 x 2 donde el factor A fueron las dos matrices agropecuarias (arrozales y pasturas) y el factor B correspondió a las dos posiciones en los bosques riparios (interior y borde). Se establecieron cinco seudo-réplicas en cada fragmento, para un total de 20 unidades de muestreo (parcelas). En los casos en que se detectaron diferencias estadísticas entre tratamientos, se procedió a realizar una prueba de comparación de medias de tratamientos simples y combinados de Tukey, con una probabilidad del 5 %. Los análisis estadísticos se realizaron con el software Infostat.
El modelo matemático empleado para el análisis estadístico fue el siguiente:
Y = m + M + P + M * P + EE
Donde: Y: Variables de respuesta, m: Media general, M: Efecto de la matriz agropecuaria, P: Efecto de la posición, M*P: Interacción matriz por posición, EE: Error experimental.
Resultados
Riqueza y composición florística
Se identificaron 24 familias, 37 géneros y 45 especies de árboles en las dos matrices en un área de muestreo de 0.2 ha. La riqueza de especies arbóreas fue mayor en los bosques vecinos a arrozales que aquellos cercanos a pasturas (33 vs 29 especies, respectivamente). Se detectó una interacción estadística (P < 0.05) entre la matriz y la posición en los bosques riparios, así la mayor riqueza se presentó en el borde de los bosques aledaños a arrozales (28 especies) (Cuadro 1). Sin embargo, al considerar solo la posición, el interior de los bosques riparios tuvo más riqueza de árboles que sus bordes (38 vs 29 especies, respectivamente; Cuadro 1).
Se encontró que estos bosques riparios contienen, en promedio, 1 478 ± 65 individuos/ ha, lo que muestra que no hubo diferencias estadísticas (P > 0.05) entre las matrices. Los bosques aledaños a arrozales conservaron más árboles en el borde que al interior (P > 0.05); esta situación fue completamente opuesta en aquellos vecinos de pasturas, aunque sin encontrar diferencias estadísticas en este último caso (P > 0.05) (Cuadro 1). Se encontró 15 especies comunes para las matrices, donde las más abundantes fueron Oxandra espintana (Spruce ex Benth.) Baill. y Calliandra sp., con un promedio de 520 y 241 individuos/ha, respectivamente (Fig. 2). O. espintana fue la especie más abundante tanto en bosques aledaños a arrozales como a pasturas en ambas posiciones (567 y 473 individuos/ha, respectivamente; Fig. 2); mientras que Calliandra sp. mostró un comportamiento similar, y resultó la segunda especie más abundante: 187 y 297 individuos/ ha en arroz y pastura, respectivamente.
Se encontró una dominancia de 33.9 ± 3.8 m2/ha en estos bosques riparios, sin detectar diferencias estadísticas (P> 0.05) entre las matrices ni posiciones (Cuadro 1). Sin embargo, en el borde de los bosques riparios aledaños a pasturas, se detectó una leve mayor dominancia (42.0 ± 9.9 m2/ ha; (Cuadro 1). Calliandra sp. tuvo la mayor dominancia en el interior de bosques en pasturas y en el borde de aquellos en arrozales (10.1 ± 1.8 y 7.9 ± 4.1 m2/ha, respectivamente; Fig. 3). Mientras que O. espintana mostró mayor dominancia al interior de bosques en paisajes de arrozales, y Ficus pallida (Vahl) en bordes en matrices dominadas por pasturas (10.0 ± 2.4 vs 10.7 ± 10.6 m2/ha, respectivamente; Fig. 3).
Cuadro 1 Riqueza, abundancia y dominancia de especies arbóreas (dap ≥ 5 cm) en bosques riparios en paisajes agropecuariosen la Hacienda Gascoña, corregimiento de Doima, Piedras, Tolima, Colombia
| Matriz/posición | Riqueza | Abundancia (individuos/ha) | Dominancia (m 2 /ha) |
|---|---|---|---|
| Matriz* Arroz | 33 | 1 540 ± 109 a | 31.7 ± 5.3 a |
| Pastura | 29 | 1 417 ± 72 a | 36.1 ± 5.6 a |
| Posición* Interior | 38 | 1 390 ± 80 a | 27.2 ± 2.7 a |
| Borde | 29 | 1 567 ± 99 a | 40.6 ± 6.6 a |
| Matriz x posición** Arroz Interior | 21 | 1 280 ± 91 b | 24.2 ± 1.1 a |
| Borde | 28 | 1 800 ± 104 a | 39.3 ± 9.8 a |
| Pastura Interior | 21 | 1 500 ± 119 a | 30.3 ± 5.2 a |
| Borde | 24 | 1 333 ± 77 a | 42.0 ± 9.9 a |
Área de muestreo 1 000 m2 (*) y 500 m2 (**). Medias con letras diferentes presentan diferencias estadísticas (P< 0.05). Los valores corresponden a medias ± error estándar.
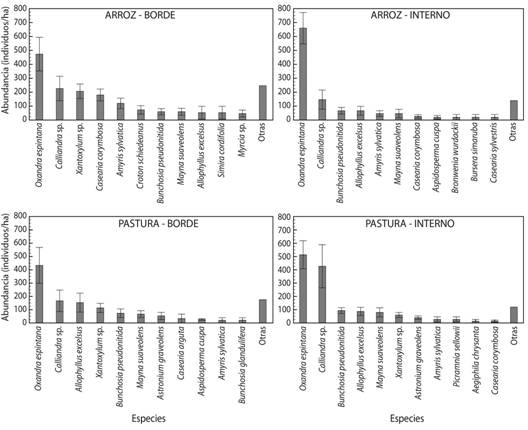
Fig. 2 Abundance of trees (dbh ≥ 5 cm) in two agricultural matrices (rice and pasture) and two positions (edge and internal) in the Hacienda Gascoña district of Doima, Piedras, Tolima, Colombia. Error bars correspond to standard error.
Se encontró una estructura poblacional típica al patrón de “J” invertida, con una mayor abundancia de individuos pequeños (10 ≤ dap ≤ 20 cm), la cual se disminuye conforme se incrementa el tamaño de los individuos (Fig. 4). Se observó que la densidad de los árboles se redujo drásticamente a partir de los 40 cm de dap (Fig. 4), hasta no encontrar individuos de 55.0-59.9 cm; sin embargo, se observaron algunos árboles con dap > 60 cm. Los bosques riparios aledaños a las dos matrices agropecuarias presentaron una estructura poblacional homogénea, al considerar su distribución diamétrica.
En estos bosques riparios se encontró que las especies de mayor importancia ecológica, expresada en términos del Índice de Valor de Importancia (IVI), fueron: O. espintana y Calliandra sp. (72 y 48 %, respectivamente (Cuadro 2). Los resultados del IVI son similares en las dos posiciones de los bosques aledaños a arrozales, en donde las especies de mayor importancia ecológica fueron estas mismas dos (56 vs 107 y 36 vs 43 % para O. espintana y Calliandra sp. en borde e interior, respectivamente). Una situación similar se encontró en aquellos bosques aledaños a matrices dominadas por pasturas, al ser las mismas especies las que presentaron mayor abundancia y frecuencia (Cuadro 2).
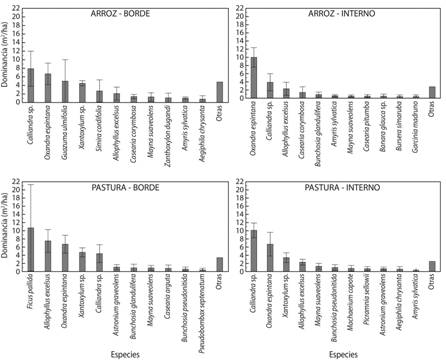
Fig. 3 Dominance of trees (dbh ≥ 5 cm) in two agricultural matrices (rice and pasture) and two positions (edge and internal) in the land Gascony district of Doima, Piedras, Tolima, Colombia. Municipality of Piedras, Tolima, Colombia. Error bars correspond to standard error.
La diversidad de especies, según el índice de Shannon-Wiener (H’), no presentó diferencias estadísticas (P> 0.05) entre los bosques aledaños a arrozales y aquellos a pasturas, en ambas posiciones. Sin embargo, en el borde de los bosques en matrices de cultivos de arroz, se encontró una mayor riqueza y heterogeneidad, dadas por un mayor valor de este índice (H’ = 2.1 ± 0.1), en comparación con el borde e interior en paisajes de pasturas, y al interior de bosques en arrozales (H’ = 2.0 ± 0.2 vs 1.7 ± 0.1 vs 1.5 ± 0.3, respectivamente; Cuadro 3).
No se presentaron diferencias significativas (P > 0.05) en los índices de diversidad de Shannon-Wiener y de Simpson entre matrices; sin embargo, sí se detectaron diferencias entre posiciones (P < 0.05; Cuadro 3). El índice de diversidad de Simpson, el cual disminuye al aumentar la dominancia, fue ligeramente menor en la comunidad encontrada en el borde del bosque en los arrozales en comparación con el interior, el borde en las pasturas y el interior de los mismos bosques en pasturas.
Estos bosques son ecosistemas dominados por especies pertenecientes a los géneros Oxandra, Calliandra y Zanthoxylum.
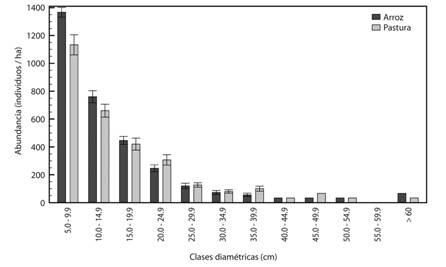
Fig. 4 Diametric distribution of trees in riparian forests (paddy fields and pastures) agricultural landscapes in the land Gascony district of Doima, Piedras, Tolima, Colombia.Error bars correspond to standard error.
Se detectó la misma tendencia en el índice de Margalef, al no encontrarse diferencias estadísticas (P> 0.05) entre matrices agropecuarias ni posiciones dentro de los bosques riparios, lo cual indica una riqueza similar en todos los ambientes. Se encontraron valores de este índice de 28.8 ± 7.9; 38.2 ± 9.0; 34.9 ± 1.3; y 39.5 ± 3.7 para arrozales en el interior y borde, y pasturas en el interior y borde, respectivamente (Cuadro 3).
Características dasométricas y carbono almacenado en la biomasa total arriba del suelo
Los mayores valores de dap y de altura total de los individuos muestreados se encontraron en los bordes del bosque cercano a pasturas; esto contrastó con los menores tamaños en el interior de los bosques aledaños a arrozales (15.8 cm y 11.2 m vs 13.5 cm y 9.0 m, respectivamente; Cuadro 4). Esto implica cambios en el almacenamiento de carbono en biomasa total arriba del suelo, aunque no fueron significativos entre matrices agropecuarias ni posiciones de muestreo (P > 0.05; Cuadro 4). Sin embargo, el mayor valor de almacenamiento de carbono se alcanzó en los bordes de las pasturas, y el menor en el interior de bosques riparios aledaños a arrozales (95.0 ± 30.2 vs 43.8 ± 4.1 t/ha, respectivamente; Cuadro 4).
Discusión
La riqueza encontrada en este estudio resultó muy inferior a lo reportado por Mendoza (1999) en bosques secos tropicales del Caribe y del Valle seco del Río Magdalena (60 especies con dap ≥ 2.5 cm en 0.1 ha), y por Torres et al. (2012), quienes registraron 52 especies de 25 familias en 1 ha de muestreo en bosque seco del Valle del Cauca (Colombia). Riquezas mayores también se han reportadoen Puerto Rico, por Murphy y Lugo (1986), 52 especies de árboles (dap > 8 cm), por Burgos y Maass (2004), más de 127 especies de árboles/ ha (dap > 10 cm) en áreas de conservación de Bs-T en Jalisco-México y Ruiz, Fandiño y Chazdon (2005), 72 especies de 36 familias (dap > 2.5 cm) en 0.59 ha de muestreo en bosques secos tropicales de la Isla de Providencia (Colombia). En contraste, Gillespie, Grijalva y Farris (2000), reportaron una menor riqueza de especies en bosques secos de Costa Rica y Nicaragua: 7.1 y 12.0 especies en 0.1 ha. En el Cerro Tasajero en Cúcuta, Norte de Santander, Carrillo, Rivera y Sánchez (2007) encontraron una riqueza muy similar a estos hallazgos: 34 familias, 57 géneros y 79 especies.
Cuadro 2 Índice de valor de importancia de las especies arbóreas (dap > 5 cm) en bosques riparios que crecen en paisajes agropecuarios de la Hacienda Gascoña corregimiento de Doima, municipio de Piedras, Tolima, Colombia
| Matriz/Posición | Especie | FR (%) | AR (%) | DR (%) | IVI (%) |
|---|---|---|---|---|---|
| Arroz Borde | Oxandra espintana | 7.7 | 26.7 | 21.6 | 56.0 |
| Calliandra sp. | 7.7 | 12.0 | 16.8 | 36.4 | |
| Zanthoxylum sp. | 7.7 | 11.4 | 15.1 | 34.1 | |
| Casearia corymbosa | 7.7 | 9.9 | 5.1 | 22.6 | |
| Amyris sylvatica | 6.2 | 7.0 | 3.3 | 16.4 | |
| Interno | Oxandra espintana | 11.4 | 52.7 | 42.7 | 106.8 |
| Calliandra sp. | 11.4 | 14.0 | 17.9 | 43.2 | |
| Allophylus excelsus | 6.8 | 4.8 | 9.1 | 20.6 | |
| Bunchosia pseudonitida | 9.1 | 4.9 | 1.6 | 15.5 | |
| Amyris sylvatica | 6.8 | 3.6 | 2.6 | 12.9 | |
| Pastura Borde | Oxandra espintana | 8.5 | 31.1 | 19.6 | 59.1 |
| Calliandra sp. | 8.5 | 14.9 | 15.1 | 38.6 | |
| Allophylus excelsus | 8.5 | 11.0 | 18.4 | 37.8 | |
| Zanthoxylum sp. | 8.5 | 9.1 | 11.6 | 29.2 | |
| Bunchosia pseudonitida | 8.5 | 7.0 | 4.9 | 20.4 | |
| Interno | Calliandra sp. | 9.8 | 27.1 | 36.9 | 73.8 |
| Oxandra espintana | 9.8 | 35.4 | 21.2 | 66.4 | |
| Allophylus excelsus | 9.8 | 5.4 | 7.1 | 22.3 | |
| Zanthoxylum sp. | 7.8 | 3.9 | 10.0 | 21.8 | |
| Bunchosia pseudonitida | 9.8 | 6.6 | 2.4 | 18.8 |
FR: frecuencia relativa, AR: abundancia relativa, DR: dominancia relativa, IVI: índice de valor de importancia.
Cuadro 3 Índices de diversidad alfa en especies arbóreas (dap ≥ 5 cm) aplicados en dos tipos de matrices agropecuarias en la Hacienda Gascoña corregimiento de Doima, municipio de Piedras, Tolima, Colombia
| Índice | Arroz | Pastura | |||
|---|---|---|---|---|---|
| Interior | Borde | Interior | Borde | ||
| Shannon-Wiener (H’) | 1.5 ± 0.3 b | 2.1 ± 0.1 a | 1.7 ± 0.1 a | 2.0 ± 0.2 a | |
| Simpson | 0.4 ± 0.1 a | 0.2 ± 0.0 b | 0.3 ± 0.0 a | 0.2 ± 0.0 a | |
| Margalef | 28.8 ± 7.9 a | 38.2 ± 9.0 a | 34.9 ± 1.3 a | 39.5 ± 3.7 a | |
Letras diferentes indican diferencias estadísticas (P < 0.05) entre posiciones en la misma matriz agropecuaria.
Cuadro 4 Resumen de las características dasométricas y almacenamiento de carbono en biomasa total arriba del suelo de dos tipos de matrices agropecuarias en la Hacienda Gascoña corregimiento de Doima, municipio de Piedras, Tolima, Colombia
| Matriz x posición | dap (cm) | Altura total (m) | Carbono arriba del suelo (t/ha) |
|---|---|---|---|
| Arroz Interior | 13.5 ± 0.6 a | 9.0 ± 2.3 a | 43.8 ± 4.1 a |
| Borde | 13.2 ± 0.6 a | 8.3 ± 0.2 a | 47.3 ± 8.3 a |
| Pastura Interior | 13.3 ± 0.6 b | 10.1 ± 0.4 a | 50.8 ± 5.1 b |
| Borde | 15.8 ± 0.9 a | 11.2 ± 0.8 a | 95.0 ± 30.2 a |
Valores corresponden a media y errores estándar. Letras diferentes indican diferencias significativas entre posiciones para cada tipo de bosque (P < 0.05).
Los resultados demuestran que se presenta un efecto de borde en la riqueza de especies; mientras que el impacto de la matriz en los paisajes agropecuarios parece despreciable. Estos bosques riparios sufren una fuerte presión de fragmentación y afectación de las matrices agropecuarias. La menor riqueza en bosques aledaños a pasturas podría deberse al efecto del pastoreo de los animales al buscar cursos de agua, principalmente en época seca. Stern, Quesada y Stoner (2002) afirman que el pastoreo intermitente en áreas forestadas causa una reducción significativa en el número de especies de árboles.
La abundancia de árboles encontrada en este estudio resultó muy superior a los hallazgos de Jaramillo, Kauffman, Rentería-Rodríguez, Cummings y Ellingson (2003) en bosques secos de México, con 474 individuos/ha (dap > 10 cm), pero levemente inferior a lo encontrado por Torres et al. (2012) en un bosque seco del Valle del Cauca, Colombia, 1 811 tallos/ha (dap > 5 cm). Entretanto, los valores de dominancia encontrados en la presente investigación fueron superiores a lo reportado por Jaramillo et al. (2003) en bosques secos de México (23.2 m2/ha). Es de resaltar la importancia de estos ecosistemas para la conservación de especies arbóreas, ya que según Bernal, Gradstein y Celis (2015), de las especies registradas en el estudio se encontró que O. espintana está en peligro crítico y M. suaveolens está en peligro de acuerdo a las categorías de IUCN para Colombia.
La tendencia de la distribución diamétrica de la población indica que la comunidad estudiada es autoregenerativa, una vez que existe una alta concentración de individuos en las clases menores con reducción acentuada para las clases mayores. Torres et al. (2012) encontraron patrones de estructura poblacional similares en el Valle del Cauca, Colombia. Stern et al. (2002) encontraron que el pastoreo hace que las áreas forestales tengan mayor abundancia de tallos pequeños (dap < 5 cm) y menor de árboles con tallos más grandes (dap > 5 cm). Se puede deducir que en estas áreas se presenta una abundante regeneración natural y árboles grandes (dap > 60 cm), que podrían actuar como fuente de material de propagación. Esta estructura poblacional, unida a la baja abundancia y alta dominancia, indicaría que el manejo de las matrices agropecuarias afecta el crecimiento de los árboles regenerados naturalmente, ya que los individuos con dap > 30 son pocos.
La familia Annonaceae, a la cual pertenece la especie O. espintana, tiene amplia distribución en Colombia, con la mayor diversidad de especies en las regiones Amazónica, Pacífica y Andina, en sitios con altitudes menores a 500 m (Murillo, 2001). Adicionalmente, la familia Fabaceae (Calliandra sp.), que es uno de los mayores grupos de plantas con flores (Angiospermas) en el mundo, se distribuye de manera cosmopolita y tiene una alta representación en la flora colombiana (Hernández, 1984). Esta familia tiene un gran valor como alimento, como forraje, madera, combustible y conservador de suelos, por su fijación de nitrógeno (Córdova-Sánchez et al.,2011) y es la de mayor diversidad de especies en bosques secos de Costa Rica y Nicaragua (Gillespie et al., 2000). En el norte del Tolima, Mendoza (1999) encontró que en el bosque seco el IVI estuvo dominado por especies de las familias Meliaceae, Zygophyllaceae y Fabaceae. Mendoza (2011) reportó en bosques secundarios de la provincia de Santa Elena y la Provincia del Guayas-Ecuador, que la especie más abundante y con mayor valor de importancia es Guazuma ulmifolia Lam. (67 % del total), especie importante por su uso en alimentación animal en zonas tropicales.En zonas rurales de bosque natural del municipio de Popayán, Alvis (2009) encontró que las especies con mayor peso ecológico en el estudio realizado fueron Eugenia jambos (ahora Syzygium jambos (L.) Alston) y Quercus humboldtii Bonpl. (81 y 65 %, respectivamente).
Torres et al. (2012) encontraron que las especies con mayor importancia ecológica, basado en mayores IVI, área basal y aporte de biomasa, fueron Eugenia procera, Amyris pinnata Kunth, Pithecellobium lanceolatum (Willd.) Benth, Guapira sp. y G. ulmifolia en el Valle del Cauca (Colombia), siendo las familias Fabaceae y Rutaceae las más dominantes. Ruiz y Fandiño (2009) reportaron a Acacia collinsii (Saff). perteneciente a la familia Leguminosae, seguida de Campomanesia sp. de la familia Myrtaceae (IVI de 34 y 23 %, respectivamente), como las especies de mayor importancia ecológica en Bs-T de las islas de la Vieja Providencia y Santa Catalina, Colombia. La primera especie es pionera e indicadora de bosques secundarios que han sido intervenidos, o que están en un proceso de regeneración.
Índices de Shannon mayores a dos indican una diversidad de media a alta (Barbour, Burk, & Pitts, 1987; Jost & González, 2012) con un mayor número de especies (Magurran, 1988). Carrillo et al. (2007) encontraron un índice de Shannon de 3.5 en el Bs-T del Cerro Tasajero en Cúcuta (Colombia); mientras que López, Pérez y Mariscal (2015) encontraron un valor de 3.1 en este indicador en fragmentos de Bs-T en Río Hato (Panamá). Ambos valores son considerados como indicadores de una alta diversidad. En contraste, Aguirre, Burí, Betancourt y Geada (2014), encontraron diversidad baja de árboles del mismo tamaño que en este estudio, según el índice de Shannon (H´= 0.3). Stern et al. (2002) afirmaron que el pastoreo redujo la diversidad de árboles, lo que causó que áreas sin pastoreo sean más similares a bosques maduros.
Las diferencias en el índice de diversidad de Shannon-Wiener entre posiciones en el bosque pueden deberse a la exposición por alteración antrópica enestos micrositios. Garcés (2004), en parcelas de 0.3 ha establecidas en el Valle de Yeguare en el Cerro de MasicaránHonduras, zona caracterizada por tener un parche de bosque seco, encontró un índice de Simpson de 0.4 y 0.3 en individuos del mismo tamaño, los cuales son bajos, pero superiores a datos alcanzados en Quebrada Grande, el Bosque Nebuloso de Monte Cristo y la Quebrada de Güisisire (0.1 en promedio). En bosques secos tropicales del sur del Departamento del Tolima en el Valle del Río Magdalena, Fernández, Bernate y Melo (2013) encontraron, en parcelas de 0.25 ha, que la riqueza de especies expresada por el índice de Margalef, tuvo en promedio altos valores con 6.0 y 2.9, lo que indicó la alta biodiversidad del lugar.
El almacenamiento de carbono estimado para estos estudios es totalmente congruente con los reportes de Phillips et al. (2011), quienes calcularon en 48.1 t C/ha lo almacenado en bosques de la región Magdalena-Cauca de Colombia, y de Jaramillo et al. (2003) en bosques secundarios de Nicaragua, bosques riparios de Colombia y bosques secundarios de Costa Rica (23.0, 79.4 y 90.8 t/ha, respectivamente) y en paisajes secos tropicales de México (47-83 t/ha). De la misma forma, el almacenamiento de carbono en biomasa fue muy inferior, tal como se espera, a los reportes en bosques húmedos en América Central (105125 t/ha; Segura, Kanninen, Alfaro, & Campos, 2000; Arreaga, 2002; Lagos & Venegas, 2003). Estos bosques representan un importante reservorio de carbono inmerso en un paisaje agropecuario dominado por sistemas de producción sin árboles, tal como pasturas y arrozales, y constituyen un sumidero importante de carbono en paisajes con bajo carbono.
Los resultados del estudio confirman que la biomasa forestal es un sumidero grande de carbono (Houghton, 2005; Saatchi, Houghton, Dos Santos, Soares, & Yu, 2007), principalmente en paisajes agropecuarios que almacenan poco este elemento, tal como arrozales y pasturas sin árboles. Sin embargo, estas reservas de carbono dependen fuertemente de la composición florística, abundancia de la comunidad vegetal y las características del suelo, tal como su fertilidad y disponibilidad de agua (Bazzaz & Picket 1980; Clark, Palmer, & Clark, 1999; Clark & Clark, 2000; Valencia et al., 2004; Hooper et al., 2005; Luyssaert et al., 2008; Laurance, 2009; Turner, 2010).
A pesar de albergar menos carbono que los bosques tropicales húmedos, los fragmentos de bosques en áreas secas son una estrategia importante para conservar carbono en paisajes agropecuarios. Es importante conocer estas reservas en los sistemas forestales tropicales ya sean naturales o alterados (Dixon et al., 1994; Jobbágy & Jackson, 2000; Piao, Fang, Zhu, & Tan, 2005; Yang, Mohammat, Feng, Zhou, & Fang, 2007), ya que a partir de su conocimiento, es posible inferir la contribución de estos ecosistemas en el ciclo del carbono y prestación de servicios ambientales, y este conocimiento permite apoyar estrategias de conservación. La composición de los paisajes agropecuarios debería considerar el incremento de bosques riparios para aumentar los servicios que estos ecosistemas ofertan, tal como la fijación de carbono, lo cual podría mitigar sus emisiones de gases de efecto invernadero.
Los bosques riparios en áreas tropicales secas son un importante uso del suelo para la conservación de biodiversidad y la captura de carbono atmosférico en paisajes agropecuarios. Estos ecosistemas forestales presentan una abundancia de 1 478 individuos/ha de 45 especies arbóreas, las cuales se reproducen constantemente y algunas podrían estar en algún grado de amenaza. O. espintana y Calliandra sp. son las especies con mayor importancia ecológica en estos fragmentos de bosques en paisajes agropecuarios.
A pesar que estos bosques riparios conservaron menos carbono en biomasa arriba del suelo (59 t/ha) que aquellos en zonas tropicales húmedas, como es de esperarse, se consideran como una importante estrategia de mitigación del cambio climático, al encontrarse en paisajes agropecuarios con bajo contenido de carbono, tal como pasturas sin árboles y arrozales. Los resultados demuestran la importancia ecológica de estos bosques, lo que debería incentivar la puesta en marcha de políticas que los protejan y permitan la mitigación de las emisiones de GEI de las matrices agropecuarias.

