


 Español (pdf)
 Articulo en XML
 Referencias del artículo

 Traducción automática
 Enviar articulo por email
 Citado por SciELO
 Similares en
SciELO
 uBio

 Permalink

Cada año se reportan más de 700 000 muertes en el mundo asociadas a enfermedades transmitidas por artrópodos, en las que el vector puede transmitir bacterias, virus o parásitos a un hospedador susceptible. Entre estas se encuentran las enfermedades causadas por los virus dengue (DENV), chikungunya (CHIKV) y Zika (ZIKV), los cuales son arbovirus transmitidos principalmente por los mosquitos Aedes aegypti y Aedes albopictus (WHO, 2024). Estos virus emergentes generan una importante carga sanitaria global, con estimaciones anuales de alrededor de 96 000 000 de casos de dengue, 693 000 de chikungunya y 500 000 de Zika (Franklinos et al., 2019).
La distribución de estas enfermedades depende de múltiples factores sociales, demográficos y ambientales que afectan el ciclo de vida y la dispersión de los vectores. Por ello, conocer la composición y abundancia de especies de mosquitos en un área determinada, así como los cambios relacionados con la estacionalidad o el clima (Confalonieri & Costa Neto, 2012), es clave para la toma de decisiones en programas de vigilancia y control. Estos patrones ecológicos pueden cuantificarse mediante la riqueza específica, índices de diversidad y de similitud entre localidades (Morris et al., 2014).
La transmisión de arbovirus ocurre principalmente de manera horizontal, cuando el vector infecta a un hospedador durante la picadura. Sin embargo, también puede darse transmisión vertical (transovárica), en la que las hembras infectadas transmiten el virus a su descendencia. Aunque este mecanismo ocurre en menor proporción en la naturaleza, puede contribuir al mantenimiento del virus durante periodos interepidémicos (Agarwal et al., 2017; Ferreira-de-Lima & Lima-Camara, 2018; Gutierrez-Bugallo et al., 2019; Lequime & Lambrechts, 2014).
En Costa Rica se han documentado al menos dos estudios que evidencian transmisión vertical del virus dengue en Ae. albopictus en plantaciones de piña: uno donde se detectó DENV en mosquitos macho (Calderón-Arguedas et al., 2015) y otro que reafirma su posible rol vectorial (Calderón-Arguedas et al., 2019). No obstante, no existen reportes sobre la detección de arbovirus en larvas de Aedes.
El presente estudio tuvo como objetivo estimar la diversidad de culícidos y detectar la infección por DENV, CHIKV y ZIKV en larvas de Ae. aegypti y Ae. albopictus en 26 localidades de 19 distritos de Costa Rica.
Materiales y métodos
Recolección de larvas: Las colectas las realizamos en coordinación con el Ministerio de Salud (MINSA) entre agosto y noviembre de 2021, durante la estación lluviosa, en 26 localidades distribuidas en 19 distritos ubicados por debajo de los 900m sobre el nivel del mar (Tabla 1). La selección de localidades la basamos en antecedentes de brotes o casos confirmados de DENV, CHIKV y ZIKV en el momento o en años previos. En cada sitio efectuamos una búsqueda activa de criaderos artificiales con agua estancada ubicados en espacios públicos (calles, aceras, playas), excluyendo viviendas. Las larvas recolectadas las transferimos en agua del mismo criadero para preservar su viabilidad y las trasladamos al laboratorio para su identificación inmediata.
Identificación taxonómica: Las larvas del género Aedes las identificamos utilizando la clave morfológica de Rueda (2004), y las del género Culex y Limatus empleando la clave para Costa Rica de Darsie (1993). La identificación del género Limatus la realizamos hasta nivel de género, ya que no fue posible diferenciar entre Limatus durhamii y L. asulleptus en estado larval. Las larvas de Ae. aegypti y Ae. albopictus las separamos y ubicamos en grupos de hasta 50 individuos, los cuales congelamos a -80°C hasta analizarlas molecularmente.
Índices ecológicos de diversidad: Estimamos la riqueza específica y el índice de Shannon- Weaver por distrito. Adicionalmente, calculamos el índice de similitud cuantitativa de Morisita-Horn para comparar la composición de comunidades larvarias entre distritos. Con base en esta matriz de similitud construimos un dendrograma jerárquico (método UPGMA) para visualizar agrupamientos de localidades con composiciones semejantes.
Análisis molecular: Las larvas agrupadas las sometimos a extracción de ARN con el kit comercial Total RNA Purification Kit (NORGEN), siguiendo las instrucciones del fabricante. La concentración y pureza de los ácidos nucleicos la evaluamos mediante espectrofotometría (NanoDrop One, Thermo Scientific). Posteriormente, analizamos los grupos larvales mediante retrotranscripción seguida de PCR en tiempo real (RT-qPCR), utilizando el protocolo de Waggoner et al. (2016) para la detección de DENV (serotipos 1-4), CHIKV y ZIKV. Las secuencias objetivo fueron: región 5’ UTR del gen de la cápside de DENV, proteína no estructural 2 (NSP2) para CHIKV y NS4B para ZIKV (Tabla 2). Las reacciones las realizamos en un volumen final de 25µL, utilizando 0,5μl del kit SuperScript III Platinum One-Step qRT-PCR (Life Technologies, Carlsbad, CA, EE. UU.), 12,5μl Maxima Probe/ROX qPCR Master Mix - 2X (Thermo Scientific, Waltham, USA), 0,25μl de la sonda (10μM), 0,75μl de cada iniciador (10μM), 5μl de ARN y 5μl de agua grado biología molecular (Thermo Scientific). Todas las reacciones las analizamos con el QuantStudio 3 Real-Time PCR System. Las condiciones de ciclado consistieron en una desnaturalización inicial a 52°C durante 15 min; 94°C durante 2min y 45 ciclos de 94°C durante 15s, 55°C durante 20s y 68°C durante 20s, con controles positivos (cultivos celulares donados por INCIENSA) y control negativo (agua libre de nucleasas). Las muestras que mostraron amplificación con una curva de crecimiento por encima del umbral dentro de los 45 ciclos las consideramos positivas.
Tabla 1 Localidades de muestreo con altitudes (metros sobre nivel del mar)
| Provincia | Distrito | Localidad | Altitud |
| Puntarenas | Buenos Aires | Buenos Aires | 361 |
| San José | Daniel Flores | Concepción | 650 |
| San José | San Isidro de El General | San Isidro de El General | 702 |
| Puntarenas | Chomes | Punta Morales* | 3 |
| Puntarenas | Tárcoles | Playa Azul | 6 |
| Puntarenas | Tárcoles | Tárcoles | 10 |
| Puntarenas | Jacó | Jacó | 7 |
| Cartago | Turrialba | Barrio La Margot* | 625 |
| Cartago | Turrialba | Carmen La Lira* | 650 |
| Cartago | La Isabel | La Mora* | 620 |
| Cartago | La Suiza | La Suiza | 637 |
| Cartago | Tucurrique | Tucurrique | 721 |
| Puntarenas | Pavones | Eslabón | 457 |
| Limón | Puerto Viejo | Barrio El Naranjal 1 | 10 |
| Limón | Puerto Viejo | Barrio El Naranjal 2 | 10 |
| Heredia | La Virgen | La Chilera | 100 |
| Heredia | La Virgen | Las Palmas | 95 |
| Limón | El Cairo | Cairo | 203 |
| Limón | Siquirres | San Rafael | 127 |
| Limón | Siquirres | San Martin | 135 |
| Limón | Guácimo | Afriquita | 110 |
| Limón | Guácimo | La Selva | 102 |
| Limón | Guácimo | La Angelina | 120 |
| Limón | Guápiles | Diamante | 97 |
| Limón | Rita | La Rita | 96 |
| Alajuela | Pital | Pital | 153 |
Tabla 2 Iniciadores y sondas utilizados en el RT-qPCR para DENV, CHIKV y ZIKV
| Agente | Tamaño amplicó n | Sonda | Iniciadores |
|---|---|---|---|
| DENV-1 | 114 pb | CTCGCGCGTTTCAGCATAT | Forward: CAGATCTCTGATGAACAACCAACG Reverse: TTTGAGAATCTCTTCGCCAAC |
| DENV-2 | 85 pb | CTCTCGCGTTTCAGCATAT | Forward-1: CAGATCTCTGATGAACAACCAACG Reverse-1: AGTTGACACGCGGTTTCTCT |
| Forward-2: CAGATCTCTGATGAATAACCAACG Reverse-2: AGTCGACACGCGGTTTCTCT | |||
| DENV-3 | 114 pb | CTCTCACGTTTCAGCATATTG | Forward-1: CAGATCTCTGATGAACAACCAACG Forward-2: CAGATTTCTGATGAACAACCAACG Reverse: TTTGAGAATCTCTTCGCCAAC |
| DENV-4 | 110 pb | CTCACGCGTTTCAGCATAT | Forward: GATCTCTGGAAAAATGAAC Reverse: AGAATCTCTTCACCAACC |
| CHIKV | 96 pb | GCGGTGTACACTGCCTGTGACYGC | Forward: CATCTGCACYCAAGTGTACCA Reverse: GCGCATTTTGCCTTCGTAATG |
| ZIKV | 100 pb | CYGTTGTGGATGGAATAGTGG | Forward: CAGCTGGCATCATGAAGAAYC Reverse-1: CACTTGTCCCATCTTCTTCTCC Reverse-2: CACCTGTCCCATCTTTTTCTCC |
Resultados
Recolectamos 5 036 larvas de mosquitos en 26 localidades pertenecientes a 19 distritos. Identificamos ocho especies: dos del género Aedes (Ae. aegypti y Ae. albopictus), cinco del género Culex (C. coronator, C. corniger, C. quinquefasciatus, C. nigripalpus y C. interrogator) y larvas del género Limatus. La especie más abundante fue Ae. aegypti (63,3%), seguida por Ae. albopictus (13,9%). Reportamos por primera vez la presencia de Ae. albopictus en la localidad de Punta Morales, distrito de Chomes. La especie menos representada fue Culex coronator (0,3%) (Tabla 3).
Ae. aegypti fue la única especie presente en casi todas las localidades (25 de 26, 96,1%). El distrito con mayor cantidad de larvas de Ae. aegypti fue Tárcoles (n = 520), mientras que Pavones presentó la menor cantidad (n = 4).
Respecto a la diversidad ecológica, los distritos de Guácimo y La Virgen mostraron la mayor riqueza específica (6 especies cada uno), seguidos de El Cairo y Chomes (5 especies cada uno). Los índices de diversidad ecológica más altos se registraron en Guácimo (H = 1,30) y La Virgen (H = 1,28), aunque al ser menores de 2 se consideran indicativos de baja diversidad. Varios distritos presentaron comunidades monoespecíficas, como Jacó y La Suiza (Ae. aegypti 100%) (Tabla 4).
El dendrograma basado en el índice de Morisita-Horn evidenció tres agrupamientos principales de distritos (Figura 1). El primero incluyó Chomes, Tárcoles, El Cairo y Guácimo; el segundo agrupó Buenos Aires, Daniel Flores y Pavones; y el tercero Jacó, La Suiza y Pital. Estos clústeres reflejan similitudes generales en la composición larvaria de culícidos. En particular, el tercer clúster se caracterizó por comunidades monoespecíficas de Ae. aegypti. El valor más alto de similitud se registró entre Guácimo y El Cairo (0,85), indicando comunidades larvarias altamente parecidas (Fig. 1).
En total, recolectamos 3 188 larvas de Ae. aegypti, distribuidas en 74 grupos para análisis molecular. Esta especie predominó en todas las localidades excepto en Las Palmas (La Virgen, Sarapiquí), donde no fue detectada. Cuatro localidades (Carmen La Lira, Barrio La Margot, La Mora y Punta Morales) presentaban brotes activos de dengue durante la recolecta.
Recolectamos 701 larvas de Ae. albopictus, distribuidas en 15 localidades de 11 distritos (73,3%), y agrupadas en 23 grupos. Punta Morales fue la única localidad en brote donde recolectamos larvas de esta especie.
Del total de 97 grupos que analizamos mediante RT-qPCR (74 de Ae. aegypti, 23 de Ae. albopictus), ninguno resultó positivo para DENV, CHIKV o ZIKV (Tabla 5).
Tabla 3 Número de larvas de Aedes, Culex y Limatus encontradas en 19 distritos de Costa Rica, 2021
| Distrito | Ae. aegypti | Ae.albopictus | Limatus spp. | C. coronator | C. corniger | C. quinque- fasciatus | C. nigripalpus | C. interrogator | Total |
| Buenos Aires | 30 | 34 | 2 | 0 | 0 | 0 | 0 | 0 | 66 (1,3) |
| Daniel Flores | 2 | 28 | 50 | 0 | 0 | 0 | 5 | 5 | 90 (1,8%) |
| San Isidro de El General | 134 | 15 | 0 | 0 | 0 | 0 | 0 | 0 | 149 (3,0%) |
| Chomes | 429 | 105 | 45 | 2 | 3 | 0 | 0 | 0 | 584 (11,6%) |
| Tárcoles | 520 | 203 | 0 | 0 | 115 | 0 | 0 | 0 | 838 (16,6%) |
| Puerto Viejo | 478 | 33 | 0 | 0 | 0 | 0 | 120 | 0 | 631 (12,5%) |
| La Virgen | 219 | 85 | 158 | 0 | 5 | 0 | 17 | 8 | 492 (9,8%) |
| El Cairo | 185 | 12 | 72 | 12 | 106 | 0 | 0 | 0 | 387 (7,7%) |
| Guácimo | 273 | 106 | 79 | 0 | 32 | 7 | 19 | 0 | 516 (10,2%) |
| Guápiles | 49 | 74 | 8 | 0 | 0 | 0 | 0 | 0 | 131 (2,6%) |
| Rita | 98 | 6 | 37 | 0 | 0 | 0 | 114 | 0 | 255 (5,1%) |
| Jacó | 233 | 0 | 0 | 0 | 0 | 0 | 0 | 0 | 233 (4,6%) |
| La Isabel | 34 | 0 | 13 | 0 | 3 | 3 | 0 | 0 | 53 (1,0%) |
| Turrialba | 106 | 0 | 50 | 0 | 13 | 15 | 0 | 1 | 185 (3,7%) |
| La Suiza | 180 | 0 | 0 | 0 | 0 | 0 | 0 | 0 | 180 (3,6%) |
| Pavones | 4 | 0 | 0 | 0 | 0 | 0 | 5 | 15 | 24 (0,5%) |
| Tucurrique | 50 | 0 | 4 | 0 | 1 | 0 | 0 | 0 | 55 (1,1%) |
| Siquirres | 51 | 0 | 0 | 0 | 0 | 0 | 3 | 0 | 54 (1,1%) |
| Pital | 113 | 0 | 0 | 0 | 0 | 0 | 0 | 0 | 113 (2,2%) |
| Total | 3188 (63,3%) | 701 (13,9%) | 518 (10,3%) | 14 (0,3%) | 278 (5,5%) | 25 (0,5%) | 283 (5,6%) | 29 (0,6%) | 5036 (100.0%) |
Tabla 4 Riqueza específica e índice de Shannon-Weaver en 19 distritos de Costa Rica, 2021
| Distrito | Riqueza específica | Índice Shannon- Weber |
|---|---|---|
| Buenos Aires | 3 | 0,81 |
| Daniel Flores | 5 | 1,10 |
| San Isidro de El General | 2 | 0,33 |
| Chomes | 5 | 0,78 |
| Tárcoles | 3 | 0,90 |
| Puerto Viejo | 3 | 0,68 |
| La Virgen | 6 | 1,26 |
| El Cairo | 5 | 1,24 |
| Guácimo | 6 | 1,30 |
| Guápiles | 3 | 0,86 |
| Rita | 4 | 1,10 |
| Jacó | 1 | 0 |
| La Isabel | 4 | 0,95 |
| Turrialba | 5 | 1,09 |
| La Suiza | 1 | 0 |
| Pavones | 3 | 0,92 |
| Tucurrique | 3 | 0,35 |
| Siquirres | 2 | 0,21 |
| Pital | 1 | 0 |
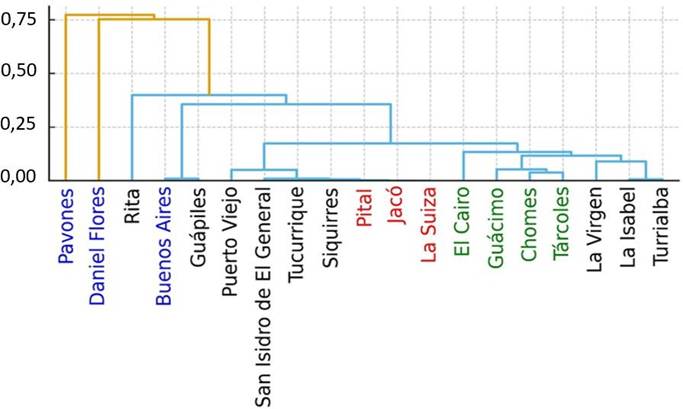
Fig.1 Dendrograma jerárquico de 19 distritos de Costa Rica según la composición de comunidades larvarias de culícidos, basado en el índice de Morisita-Horn. Se evidencian tres agrupamientos principales: (1) Chomes, Tárcoles, El Cairo y Guácimo; (2) Buenos Aires, Daniel Flores y Pavones; y (3) Jacó, La Suiza y Pital. Estos clústeres reflejan similitudes generales en la composición de especies, siendo el tercer grupo el único caracterizado por comunidades monoespecíficas de Ae. aegypti.
Tabla 5 Número de larvas Ae. aegypti y Ae. albopictus encontradas y número de grupos analizadas mediante RT-qPCR para DENV, ZIKV y CHIKV en 19 distritos de Costa Rica, 2021
| Distrito | Localidad | Ae. aegypti | Ae. albopictus | |||
| Número de larvas encontradas | Número de grupos analizados | Número de larvas encontradas | Número de grupos analizados | |||
| Buenos Aires | Buenos Aires | 30 | 1 | 34 | 1 | |
| Daniel Flores | Concepción | 2 | 1 | 28 | 1 | |
| San Isidro de El General | San Isidro de El General | 134 | 3 | 15 | 1 | |
| Chomes | Punta Morales* | 429 | 9 | 105 | 3 | |
| Tárcoles | Playa Azul | 370 | 8 | 73 | 2 | |
| Tárcoles | Tárcoles | 150 | 3 | 130 | 3 | |
| Jacó | Jacó | 233 | 5 | 0 | 0 | |
| Turrialba | Barrio La Margot* | 76 | 2 | 0 | 0 | |
| Turrialba | Carmen La Lira* | 30 | 1 | 0 | 0 | |
| La Isabel | La Mora* | 34 | 1 | 0 | 0 | |
| La Suiza | La Suiza | 180 | 4 | 0 | 0 | |
| Tucurrique | Tucurrique | 50 | 1 | 0 | 0 | |
| Pavones | Eslabón | 4 | 1 | 0 | 0 | |
| Puerto Viejo | Barrio El Naranjal 1 | 428 | 9 | 3 | 1 | |
| Puerto Viejo | Barrio El Naranjal 2 | 50 | 1 | 30 | 1 | |
| La Virgen | La Chilera | 219 | 5 | 42 | 1 | |
| La Virgen | Las Palmas | 0 | 0 | 43 | 1 | |
| El Cairo | Cairo | 185 | 4 | 12 | 1 | |
| Siquirres | San Rafael | 23 | 1 | 0 | 0 | |
| Siquirres | San Martin | 28 | 1 | 0 | 0 | |
| Guácimo | Afriquita | 74 | 2 | 42 | 1 | |
| Guácimo | La Selva | 7 | 1 | 0 | 0 | |
| Guácimo | La Angelina | 192 | 4 | 64 | 2 | |
| Guápiles | Diamante | 49 | 1 | 74 | 3 | |
| Rita | La Rita | 98 | 2 | 6 | 1 | |
| Pital | Pital | 113 | 3 | 0 | 0 | |
| Total | 3 188 | 74 | 701 | 23 | ||
* Localidad con brote activo de DENV
Discusión
El monitoreo entomológico es fundamental para actualizar el conocimiento sobre la diversidad, abundancia y distribución de mosquitos hematófagos, especialmente en zonas donde factores como el cambio climático, la urbanización y el uso del suelo están modificando los hábitats naturales (Casas Martínez, 2012). En este estudio, Ae. aegypti fue la especie más frecuente, lo cual coincide con estudios previos en Costa Rica (Calderón-Arguedas et al., 2004; Marín et al., 2009). Sin embargo, en este caso, la segunda especie más común fue Ae. albopictus, desplazando a otras especies como Culex quinquefasciatus o Limatus durhamii reportadas como secundarias en otras investigaciones.
La alta abundancia de Ae. aegypti puede explicarse por su carácter domiciliar, su plasticidad ecológica y su adaptación a múltiples criaderos urbanos, lo que le permite establecer poblaciones estables en distintos ambientes (Kweka et al., 2019). Esta dominancia fue particularmente evidente en distritos con menor diversidad como Jacó, La Suiza y Pital, donde solo se detectó una especie. En contraste, Guácimo y La Virgen presentaron mayor riqueza (6 especies), posiblemente debido a condiciones ambientales favorables compartidas entre ambas zonas, situadas a menos de 100 km de distancia.
El hallazgo de cinco especies del género Culex refuerza la importancia de este grupo en salud pública. Culex quinquefasciatus, C. coronator, C. corniger, C. nigripalpus y C. interrogator han sido implicadas como vectores de filarias (Calderón-Arguedas et al., 2009; Lieske, 1954), virus Oeste del Nilo, virus de la encefalitis de San Luis y virus de encefalitis equina del Este, todos con circulación confirmada en Costa Rica (Romero-Vega et al., 2022).
La presencia de Ae. albopictus en once distritos, incluyendo un nuevo registro para Punta Morales, sugiere una expansión reciente hacia zonas costeras y periurbanas, como ha sido documentado en Costa Rica por Calderón‑Arguedas et al. (2010)
Por otro lado, el uso de diversidad beta para agrupar distritos con similar composición larvaria refuerza su potencial como herramienta para regionalizar estrategias de vigilancia entomológica. Este enfoque es congruente con estudios como el de Ippoliti et al. (2019), que utilizaron agrupamiento ecológico para definir ecorregiones enfocadas en el control vectorial.
El análisis de diversidad beta mediante el dendrograma de Morisita-Horn permitió identificar agrupamientos de distritos con comunidades larvarias similares. Aunque los patrones no siempre corresponden a la dominancia de una especie en particular, este tipo de análisis es útil para evidenciar semejanzas generales en la composición entre localidades. En este sentido, el tercer clúster (Jacó, La Suiza y Pital) coincidió con comunidades monoespecíficas de Ae. aegypti, mientras que los otros grupos reflejan asociaciones más complejas donde varias especies coexisten en proporciones variables. Este resultado subraya la importancia de utilizar enfoques multivariados para interpretar la estructura de comunidades de mosquitos, en lugar de basarse únicamente en la abundancia de una o pocas especies dominantes.
La ausencia de detección de DENV, CHIKV o ZIKV en las larvas analizadas puede explicarse por varios factores. Primero, solo el 17,3% de los grupos larvales fueron recolectados en localidades con brotes activos al momento del muestreo. Esto reduce significativamente la probabilidad de detectar transmisión vertical. Estudios en Brasil mostraron resultados similares, como los realizados por Pinheiro et al. (2005) donde no detectaron DENV en 1816 insectos y por Maniero et al. (2019) que solo detectaron ZIKV tras recolectas sistemáticas durante 10 meses. Además, se ha reportado que las tasas de transmisión transovárica en condiciones naturales oscilan entre 0,2% y 0,8% (da Costa et al., 2017; Lequime & Lambrechts, 2014), lo que implica que grandes cantidades de muestras serían necesarias para evidenciar este fenómeno. Los factores climáticos también influyen ya que las tasas de transmisión vertical suelen ser más altas en climas áridos (Lequime et al., 2016), lo cual podría limitar su detección en zonas tropicales húmedas como las estudiadas.
A pesar del esfuerzo de muestreo, este estudio no incluyó criaderos intra-domiciliares ni evaluó la productividad larval de los recipientes, lo cual limita el análisis de abundancia real y potencial vectorial. Tampoco se aplicaron índices entomológicos clásicos (como el de Breteau), ni se realizaron curvas de rarefacción, debido a que el diseño del estudio no fue sistemático por localidad. Estas limitaciones se reconocen y se propone abordarlas en investigaciones futuras.
Los valores bajos del índice de Shannon-Weaver y la alta similitud entre localidades (Morisita-Horn = 0,85 entre Guácimo y El Cairo) indican una baja heterogeneidad en las comunidades larvales, lo que respalda la interpretación de regionalización ecológica propuesta en el dendrograma. Se recomienda realizar estudios complementarios durante la estación seca, con mayor cobertura espacial y temporal, incluyendo métodos de vigilancia intensiva, para evaluar adecuadamente el posible rol de la transmisión vertical en el mantenimiento de los arbovirus en periodos interepidémicos.
Ética, conflicto de interés y financiamiento
Los autores declaramos que cumplimos con todos los requisitos éticos y legales aplicables durante la ejecución del estudio y la elaboración del manuscrito. No existen conflictos de interés. Este estudio fue financiado por el Proyecto FUNDAUNA “Diagnóstico e Investigación en Medicina Poblacional y Ecosistémica”. Todos los autores aprobamos la versión final del artículo y hemos archivado la documentación ética requerida ante la revista. La declaración de la contribución de cada autor al manuscrito es la siguiente: Todos los autores: Diseño del estudio. S.F.N., E.B.N., A.J.R., G.D.: Análisis de laboratorio. S.F.N., E.B.N., S.A.V.: Recopilación y análisis de datos. Todos los autores: Preparación y aprobación final del manuscrito.

