


 Español (pdf)
 Articulo en XML
 Referencias del artículo

 Traducción automática
 Enviar articulo por email
 Citado por SciELO
 Similares en
SciELO

 Permalink


Introducción
La biodiversidad del suelo a nivel mundial se encuentra amenazada por cambios antropogénicos, como la intensificación del uso de la tierra, la deforestación y los fenómenos climáticos extremos (Santillán et al., 2020). Estos factores alteran su uso y provocan cambios en las comunidades microbianas que lo habitan, lo que tiene un efecto directo en los procesos que en él ocurren y su estabilidad (Zuluaga et al., 2020). Además, los suelos albergan una cuarta parte de la biodiversidad del planeta, dentro de la cual se encuentran los microorganismos promotores del crecimiento vegetal, que constituyen una valiosa herramienta para favorecer una agricultura sostenible y respetuosa con el medioambiente (Rosabal Ayan et al., 2021).
Entre los microorganismos asociados a ambientes con altas concentraciones de sales se encuentran las bacterias halotolerantes, las cuales favorecen la adaptabilidad de las plantas frente a condiciones estresantes (Guerra-Camacho et al., 2024). La Ciénaga de Zapata es un ecosistema sensible a estos fenómenos, reconocido como el mayor humedal de Cuba y ubicado al sur de la provincia de Matanzas (Moya et al., 2005). Es un hábitat vulnerable al cambio climático, en el que se esperan severas afectaciones por el incremento del nivel del mar, lo que traería consigo daños considerables a los cultivos por el aumento de la salinidad en los suelos (Planos et al., 2013).
La Ciénaga de Zapata constituye uno de los lugares más significativos de Cuba por la cantidad y diversidad de ecosistemas que alberga, así como por la singularidad de su flora y vegetación (Moya et al., 2005). Ha sido objeto de estudios científicos que abarcan desde la caracterización de su biodiversidad vegetal y faunística hasta la evaluación del estado de conservación de especies endémicas y amenazadas, así como diagnósticos ecológicos integrales del humedal (Oviedo Prieto, 2013). Otras investigaciones se han enfocado en la diversidad de grupos fúngicos, con énfasis en los hongos micorrizógenos arbusculares (Torres-Arias et al., 2015). No obstante, persiste un vacío de conocimiento sobre la diversidad filogenética y funcional de las bacterias que habitan en estos agroecosistemas, las cuales pueden asociarse de manera eficiente con las plantas y favorecer su crecimiento vegetativo.
Estas comunidades microbianas del suelo ejercen un efecto positivo en la mitigación de estos impactos ambientales al aumentar la adaptabilidad de las plantas frente a diversos tipos de estrés (Ju et al., 2020), lo que propicia la recuperación de los suelos afectados por esta condición (Montenegro Gómez et al., 2020). Diversos microorganismos del suelo tienen la capacidad de sintetizar fitohormonas, que les permiten incrementar la biodisponibilidad de nutrientes y mejorar la nutrición de las plantas (Ahluwalia et al., 2021). Dentro de esta diversidad, sobresalen las bacterias halotolerantes, capaces de favorecer la adaptación de las plantas a condiciones de estrés salino (Guerra-Camacho et al., 2024), fenómeno que constituye una amenaza creciente para la productividad agrícola en estos ambientes.
En este contexto, el objetivo de este estudio fue identificar bacterias halotolerantes aisladas de suelos de la Ciénaga de Zapata, Cuba, y caracterizarlas como estimuladoras del crecimiento vegetal de plantas resistentes a altas concentraciones salinas.
Materiales y métodos
Las investigaciones se realizaron en suelos de la Ciénaga de Zapata, Matanzas, Cuba, con una extensión de 3100 km2 y una altitud de 5 m s. n. m., ubicados en 22°35’ de latitud norte y 81°09’ de longitud oeste (Cuadrado & Molina, 2005). Entre mayo y julio de 2023, se realizaron dieciocho colectas en sitios de muestreo de suelos del municipio Ciénaga de Zapata con el fin de estudiar la diversidad microbiana de estos agroecosistemas (Ortega García et al., 2024). De ellas, diez se efectuaron en la localidad de Soplillar y ocho en Cayo Ramona.
En cada sitio de muestreo se tomaron cinco submuestras de suelo a una profundidad de 20 cm, siguiendo un patrón en “w” o zigzag (Villalba-Martínez & Encina-Rojas, 2024). Los suelos correspondieron a Histosol e Histosol mésico, de baja fertilidad y poca profundidad, con alta presencia de arcillas (1:1), medianamente salinizados, con niveles de conductividad eléctrica entre 2,8 y 3,7 ds/m (Hernández Jiménez et al., 2023). Estas submuestras se homogenizaron para formar una muestra compuesta representativa de cada sitio (1 kg). Para ello, se tomaron 10 g de suelo por triplicado de cada muestra compuesta, las cuales se procesaron según el método de diluciones seriadas en medio de cultivo agar nutritivo (Rodríguez-Martínez & Zhurbenko, 2018), a una concentración de 10-7 UFC mL-1, con el propósito de seleccionar la diversidad de morfotipos presentes (Ortega García et al., 2024).
Se purificó un aislado representativo de cada morfotipo. Se obtuvieron dieciocho aislados de bacterias, los cuales se cultivaron nuevamente en medio de cultivo agar nutritivo, suplementado con diferentes concentraciones de NaCl (0, 50, 150 y 200 mM) y se incubaron a 30 °C durante 24 h para evaluar su tolerancia. A partir de estos ensayos, se seleccionaron cinco bacterias por su tolerancia frente a la mayor concentración de NaCl (200 mM) para continuar los estudios. Todos los aislados se identificaron con el código CZ en referencia a la Ciénaga de Zapata.
Características morfológicas de las bacterias seleccionadas
Las bacterias seleccionadas se clasificaron con base en sus características morfológicas a nivel macroscópico (forma, color, borde, elevación y superficie de las colonias). Por microscopía se observó su forma celular y estructura de la pared celular bacteriana mediante la tinción de Gram, para lo cual se utilizaron cultivos frescos de 24 h. Se realizaron, además, pruebas de DNAsa y coagulasa para evaluar posible patogenicidad y garantizar la inocuidad de los aislados (Madigan et al., 2019).
Identificación taxonómica de las bacterias seleccionadas
Para extraer el ADN genómico, los aislados se cultivaron en medio triptona extracto de levadura durante 24 h, a 30 °C. La extracción se efectuó según el protocolo de Wilson (2001). Para la amplificación del gen 16S rRNA se realizó una reacción en cadena de la polimerasa (PCR, por sus siglas en inglés) con los iniciadores 27f (secuencia 5’-AGA GTT TGA TCM TGG CTC AG-3’) y 1492r (5’-CGG TTA CCT TGT TAC GAC TT-3’) (Bautista et al., 2017). Se utilizó un ciclo de desnaturalización inicial (94 °C por 5 min), seguido de 30 ciclos de 1 min para desnaturalización, alineamiento y extensión (94, 57 y 72 °C, respectivamente), y un ciclo de amplificación final a 72 °C durante 1 min. El producto de la amplificación se visualizó mediante corrimiento electroforético en gel de agarosa al 1,5 %.
El producto de PCR se secuenció en la empresa Macrogen (Corea del Sur). Las secuencias se editaron en el programa BioEdit versión 7.0.9.0, y se compararon con la biblioteca del GenBank a través de una búsqueda BLAST para obtener una colección de secuencias relacionadas. Todas las secuencias se alinearon utilizando el programa CLUSTAL X. El análisis filogenético de cada aislado se realizó con el software MEGA V.7 con un soporte de 1000 repeticiones bootstrap.
Caracterización de las bacterias como promotoras del crecimiento vegetal
En cada una de las pruebas, las bacterias se sembraron por picadura en cuatro puntos equidistantes del borde de la placa de Petri y se incubaron entre 24 y 48 h a 28 °C. En cada medio de cultivo se midió el diámetro de las colonias y el halo generado cada 24 h. Para interpretar el índice de actividad (IA), se midió el tamaño del halo (TH) y de la colonia (TC) en tres direcciones. A partir de los promedios se determinó el índice mediante la fórmula IA = TH/TC.
La capacidad para fijar el nitrógeno atmosférico se evaluó mediante el crecimiento del microorganismo en el medio de cultivo Winogradsky sin nitrógeno, según Elbeltagy et al. (2001); para los nitrificantes, se utilizó el medio NFb (Baldani et al., 2014). Para la solubilización se empleó el medio NBRIP sólido con fosfato de calcio y de aluminio (Shekhar Nautiyal, 1999). El cambio de color se consideró como positivo y, en la solubilización de potasio, se utilizó el medio Alexandrov con KNO3 (Sugumaran & Janarthanam, 2007) y la metodología descrita para el NBRIP. Para la producción de índoles se usó el medio de cultivo agar triptona soya (TSA), se agregó el reactivo de Salkowski y se incubó durante 30 min en oscuridad. La formación de un halo se consideró positiva.
La producción de sideróforos se evaluó con el medio de cultivo agar cromoazurol sulfonato (CAS); un cambio de color azul a naranja o amarillo indicó una respuesta positiva. Para las peroxidasas, la efervescencia por liberación de oxígeno al entrar en contacto con la bacteria se consideró positiva. En las amilasas se utilizó el medio de cultivo Castañeda-almidón; se adicionó yodo al 1 % como indicador, y la formación de un halo amarillo se consideró positiva.
Las proteasas se evaluaron en el medio Luria-Bertani (LB) con leche; la hidrólisis alrededor de las colonias se consideró positiva. Para las lipasas se empleó agar triptona soya con Tween 20 al 1 % y, para las esterasas, el mismo medio con Tween 80 al 1 %; la generación de halo alrededor de las colonias se consideró positiva. En las celulasas se utilizó el medio Rojo Congo con carboximetilcelulosa y CTAB al 1 % como indicador; la formación de halo se consideró positiva. Para las peptidasas se empleó el medio Castañeda-Pectina y CTAB al 1 % como indicador, el cual se adicionó durante 5 min; la formación de un halo blanco alrededor de la colonia se consideró positiva. Para las enzimas se midió el tamaño del halo (Th) y de la colonia (Tc), a partir de los cuales se calculó el radio de hidrólisis (RH = Th/Tc) (Sánchez Castelblanco et al., 2020).
Efecto de la inoculación de las cepas en cultivares de tomate (Solanum lycopersicum L.)
Los ensayos con plantas se realizaron entre junio y noviembre de 2023, en condiciones semicontroladas en un invernadero. Para ello, se utilizaron los cultivares de tomate T-60 y FL-5, en macetas plásticas de un volumen de 360 cm3 en un suelo Vertisol salinizado con 8 ds/m (Hernández Jiménez et al., 2023). Los inóculos se prepararon en medio caldo nutritivo en zaranda rotativa a 120 rpm durante 24 h a una temperatura de 30 °C, hasta obtener una concentración final de 108 UFC/mL para cada cepa, según la escala de McFarland (1907). Luego, se preparó una mezcla inóculo:agua en proporción 1:10 (v:v). Se emplearon seis tratamientos (cinco cepas bacterianas y un testigo absoluto), con 25 plantas por tratamiento y tres repeticiones, a los que se les determinó a los 60 días la altura de las plantas (cm), la longitud de las raíces (cm), el diámetro del tallo (cm), el número de hojas (u) y la masa seca (g).
Diseño del experimento y análisis estadístico
Se utilizó un diseño completamente aleatorizado para las evaluaciones en laboratorio, con los cinco aislados seleccionados como factor de tratamiento. Se evaluaron como variables de respuesta la fijación de nitrógeno, la solubilización de fosfatos y la producción de amonio, sideróforos, compuestos indólicos y enzimas líticas. En los ensayos con plantas se empleó un diseño de bloques al azar con seis tratamientos (cinco cepas bacterianas y un testigo), veinticinco plantas por tratamiento y tres repeticiones, y se consideraron como variables de respuesta los indicadores de crecimiento vegetal y la tolerancia a la salinidad.
Se evaluó la normalidad por medio de la prueba de Kolmogorov-Smirnov y la homogeneidad de varianzas con las pruebas de Cochran C, Hartley y Bartlett. Posteriormente, se realizó un análisis de varianza (ANOVA) de una vía y las medias se compararon mediante la prueba de rangos múltiples de Duncan al 5 % de significancia. Todos los análisis se realizaron con el programa estadístico STATGRAPHICS Plus versión 5.0.
Resultados
Características morfológicas de las cepas
De las cinco cepas seleccionadas de la Ciénaga de Zapata por tolerar altos niveles de NaCl (200 mM), solamente CZ1 pertenece a Soplillar y las otras cuatro cepas (CZ12, CZ13, CZ14 y CZ6) a Cayo Ramona. Se observó diversidad entre ellas en cuanto a sus características morfológicas (Figura 1; Cuadro 1). No obstante, hubo mayor predominio de las formas bacilares grampositivas con formación de colonias en medio de cultivo agar nutritivo de color blanco. Las pruebas DNAsa y coagulasa resultaron negativas en todos los casos, lo que asegura la inocuidad de las cepas para continuar los estudios.
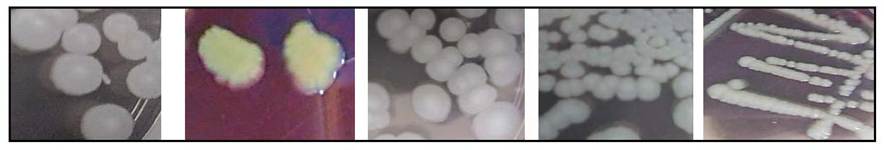
Figura 1 Imágenes de las cinco cepas (CZ1, CZ12, CZ13, CZ14 y CZ6) procedentes de suelos salinos de la Ciénaga de Zapata, Cuba. Centro Nacional de Recursos Genéticos (CNRG), Tepatitlán de Morelos, México. 2024.
Cuadro 1 Características morfológicas de las cinco cepas de suelos salinos procedentes de la Ciénaga de Zapata, Cuba. Centro Nacional de Recursos Genéticos (CNRG), Tepatitlán de Morelos, México. 2024.
| Características morfológicas | Códigos de los aislados | ||||
| CZ1 | CZ12 | CZ13 | CZ14 | CZ6 | |
| Morfología celular | Bacilos | Bacilos cortos | Bacilos | Bacilos | Bacilos largos |
| Tinción de Gram | Gram + | Gram - | Gram + | Gram + | Gram - |
| Color de la colonia | Blanco | Amarillo | Blanco | Blanco | Grisáceo |
| Morfología de las colonias | Circular con bordes irregulares, convexa, seca algodonada, con gránulos y un punto en el centro. | Circular con bordes enteros, convexa y de consistencia mucosa. | Irregular con bordes irregulares, ligeramente elevada, de consistencia seca con gránulos. | Circular con bordes enteros, ligeramente elevada, de consistencia seca, con rebordes, similar a una costra. | Irregular con bordes enteros, ligeramente elevada, de consistencia mucosa. |
Identificación taxonómica de los aislados
El árbol filogenético del gen 16S rRNA indicó que las cepas CZ1, CZ13 y CZ14 pertenecen al género Bacillus. La cepa CZ1 mostró mayor cercanía a la especie Bacillus thuringiensis, la cepa CZ13 a Bacillus albus y la cepa CZ14 a Bacillus paramycoides. Los aislados CZ6 y CZ12 correspondieron al género Cupriavidus y, en ambos casos, fueron cercanos a Cupriavidus cavae. Estos resultados se obtuvieron a partir de la Figura 2.
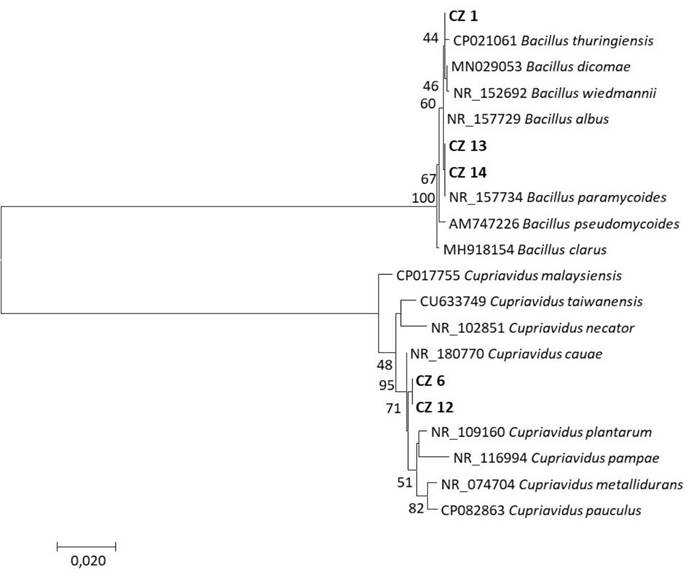
Figura 2 Árbol filogenético de las secuencias del gen 16S rRNA de las cepas CZ1, CZ6, CZ12, CZ13 y CZ14, generado con el programa MEGA 7, con el método de máxima verosimilitud y el modelo de sustitución nucleotídica de K2P. Centro Nacional de Recursos Genéticos (CNRG), Tepatitlán de Morelos, México. 2024.
Caracterización de las cepas como promotoras del crecimiento vegetal
Las cinco cepas mostraron crecimiento en el medio de cultivo Winogradsky sin nitrógeno, lo que sugiere su capacidad para fijar el nitrógeno atmosférico. No obstante, CZ12 y CZ6 destacaron con diferencias significativas con respecto al resto. Se evaluó también la respuesta como nitrificantes en el crecimiento en el medio NFb; en este caso, sobresalió significativamente CZ13, aunque tanto esta como CZ1 manifestaron coloración azul, lo cual indica su capacidad para producir amonio. El resto de los aislados no mostraron cambios.
En la capacidad para solubilizar fosfatos, CZ13 destacó con diferencias significativas respecto al resto de las cepas, ya que solubilizó fosfato de calcio, aluminio y potasio, además de producir sideróforos de hierro y compuestos indólicos. La cepa CZ6 sobresalió en la producción de compuestos indólicos, solubilizó calcio y potasio, y generó sideróforos de hierro. También destacó CZ1 en la producción de sideróforos e incluso solubilizó fosfato de calcio (Cuadro 2).
Cuadro 2 Características de promoción de crecimiento de las cepas de suelos salinos procedentes de la Ciénaga de Zapata, Cuba. Centro Nacional de Recursos Genéticos (CNRG), Tepatitlán de Morelos, México. 2024.
| Pruebas | Cepas bacterianas | |||||
| CZ1 | CZ12 | CZ13 | CZ14 | CZ6 | ESx | |
| Fijación biológica del nitrógeno | ||||||
| Winogradsky | 0,31 c | 0,48 a | 0,34 bc | 0,37 b | 0,47 a | 0,0115 |
| NFb | 2,93 b | 0 | 3,07 a | 0 | 0 | 0,0071 |
| Índice de solubilización de nutrientes | ||||||
| Calcio | 1,74 c | 2,06 b | 3,24 a | 1,77 c | 2,07 b | 0,0105 |
| Aluminio | 0 | 0 | 2,65 a | 0 | 0 | 0,0089 |
| Potasio | 0 | 0 | 1,86 a | 0 | 1,55 b | 0,0049 |
| Índice de producción de sideróforos | ||||||
| Hierro | 2,87 a | 1,06 d | 2,12 b | 0 | 1,35 c | 0,0130 |
| Índice de producción de compuestos indólicos | ||||||
| Compuestos indólicos | 0 | 0 | 0,51 b | 0 | 0,63 a | 0,0033 |
Letras iguales no difieren significativamente entre filas (rangos múltiples de Duncan, α = 0,05; n = 10). ESx: Error estándar / Identical letters do not differ significantly within rows (Duncan’s multiple range test, α = 0.05; n = 10). ESx: Standard error.
En cuanto a la producción de enzimas, los resultados mostraron una gran versatilidad de las cepas (Cuadro 3). Las cepas CZ1, CZ6 y CZ14 se distinguieron por su capacidad de producir enzimas líticas, con siete enzimas detectadas en cada caso, lo que resalta sus potencialidades frente a CZ12 y CZ13. De manera individual, la cepa CZ1 sobresalió como la mayor productora de amilasas y esterasas, con diferencias significativas respecto a las demás cepas.
Cuadro 3 Producción de enzimas líticas de las cinco cepas de suelos salinos procedentes de la Ciénaga de Zapata, Cuba, en relación con su actividad como promotoras del crecimiento vegetal. Centro Nacional de Recursos Genéticos (CNRG), Tepatitlán de Morelos, México. 2024.
| Enzimas | Cepas bacterianas | |||||
| CZ1 | CZ12 | CZ13 | CZ14 | CZ6 | ESx | |
| Radio de hidrólisis (RH) | ||||||
| Peroxidasas | + | + | + | + | + | |
| Amilasas | 2,81 a | 0 | 0 | 1,52 b | 0 | 0,0042 |
| Proteasas | 0 | 1,34 b | 7,63 a | 0 | 1,28 c | 0,0090 |
| Lipasas | 1,39 d | 2,24 a | 1,82 b | 1,74 c | 2,25 a | 0,0069 |
| Esterasas | 1,13 a | 0 | 0 | 1,11 a | 1,12 a | 0,0055 |
| Celulasas | 2,16 e | 8,88 a | 2,86 c | 2,35 d | 3,94 b | 0,0102 |
| Peptidasas | 0 | 0 | 0 | 0 | 0 | |
Letras iguales no difieren significativamente entre filas (rangos múltiples de Duncan, α = 0,05; n = 10). ESx: Error estándar. / Identical letters do not differ significantly within rows (Duncan’s multiple range test, α = 0.05; n = 10). ESx: Standard error.
En el caso de las proteasas, la cepa CZ13 mostró la mayor actividad, mientras que CZ12 y CZ6 destacaron como las principales productoras de lipasas. En cuanto a las esterasas, las cepas CZ1, CZ14 y CZ6 presentaron los valores más altos, y para las celulasas se destacó especialmente la cepa CZ12. Respecto a la enzima peroxidasa, todas las cepas mostraron una respuesta positiva, lo que sugiere que poseen una capacidad ampliamente distribuida para su producción. Por el contrario, ninguna de las cepas evaluadas evidenció producción de peptidasas, lo que indica una limitación específica en este tipo de actividad enzimática.
Las cinco cepas fijaron nitrógeno atmosférico y dos de ellas produjeron amonio. Todas solubilizaron fosfato de calcio, dos solubilizaron potasio y una solubilizó aluminio; cuatro produjeron sideróforos y dos produjeron compuestos indólicos. Además, todas generaron enzimas líticas.
Efecto de la inoculación de las cepas en cultivares de tomate (Solanum lycopersicum L.)
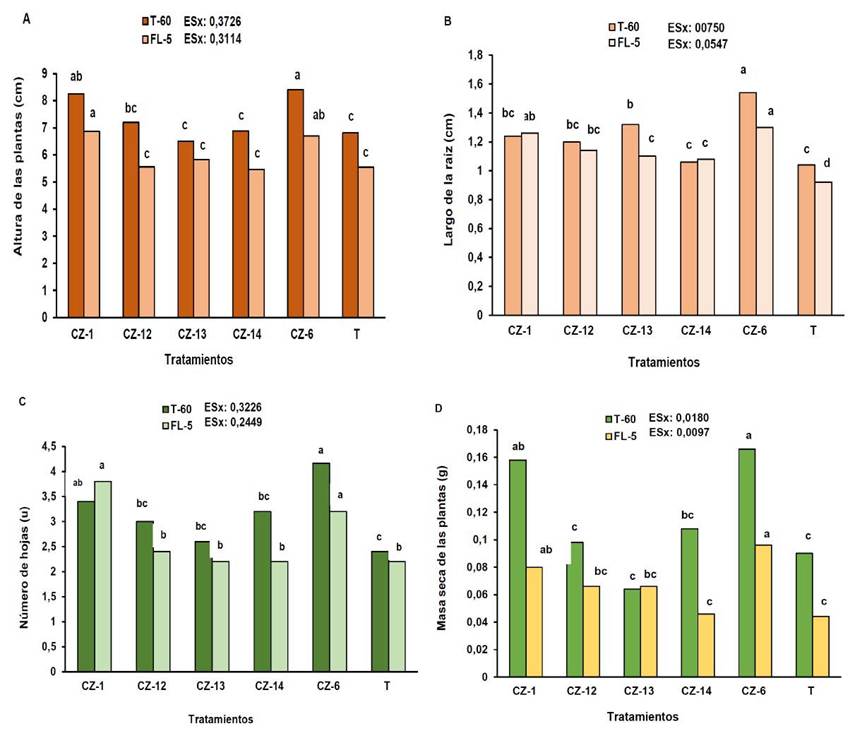
Al evaluar el efecto de la inoculación de las cinco cepas en un suelo Vertisol salinizado sobre los cultivares de tomate T-60 y FL-5, se apreció que sobresalieron las cepas CZ1 y CZ6 en la altura de las plantas, el número de hojas y la masa seca, sin diferencias significativas entre ellas. Se destacó CZ6, que también mostró los mejores resultados en la longitud de las raíces, con diferencias estadísticas respecto al resto de los tratamientos en ambos cultivares (Figura 3).
Discusión
Los nuevos aislados de suelos salinos procedentes de la Ciénaga de Zapata presentaron características distintivas en cuanto a su morfología, lo que denota la diversidad existente entre cepas, aspecto que se ha descrito en otros estudios (Zuluaga et al., 2020). El análisis filogenético mostró que tres de las cepas en estudio pertenecen al género Bacillus, resultados que coinciden con Ibarra-Villarreal et al. (2021), quienes lo ubican como un género dominante en suelos salinos. Estas características distintivas se atribuyen a su reconocida plasticidad metabólica, que le permite sobrevivir bajo condiciones ambientales adversas, así como a su facilidad para colonizar raíces de plantas y producir diversos metabolitos, aspectos que favorecen su actividad de control sobre especies patógenas.
Se ha planteado que las especies de Bacillus muestran alta capacidad para producir ácido indol-3-acético (IAA) y compuestos antimicrobianos, como los sideróforos y las enzimas hidrolíticas asociadas (Mahmud et al., 2021), características de su gran versatilidad y sus posibilidades de uso en diferentes ambientes (Anees et al., 2020). Estudios previos han demostrado que especies de este género, entre las que se encuentran B. thuringiensis, B. albus y B. paramycoides, poseen mecanismos de tolerancia a la salinidad y promueven el crecimiento vegetal en condiciones de estrés salino (Ahluwalia et al., 2021). Esta capacidad les permite colonizar con éxito la rizosfera de las plantas en suelos salinos, contribuyendo a la sostenibilidad de ecosistemas afectados por estas condiciones.
B. paramycoides, detectada en los aislados de este estudio, destaca por su habilidad para solubilizar fosfatos, una función esencial para mejorar la disponibilidad de este nutriente en suelos salinos, donde la fijación y movilidad del fósforo suelen estar limitadas (Sondang et al., 2019). Además, combinaciones de especies como B. albus y B. cereus han mostrado sinergias que favorecen el vigor de las semillas y la concentración de pigmentos en las plantas. Estas características potencian la fotosíntesis y el crecimiento vegetal en condiciones adversas (Ashry et al., 2022; Huang et al., 2020) y se relacionan con el aumento de la productividad de los cultivos.
El estudio reveló nuevas cepas con capacidad para estimular significativamente el crecimiento de cultivares de tomate. Esto coincide con la función bien documentada de este género en la promoción del crecimiento vegetal. La capacidad de Bacillus para disminuir el estrés hídrico (Moreno-Galván et al., 2020), así como la tolerancia a la salinidad presente en el suelo del experimento, se apreció en la efectividad observada en los cultivares en ambientes semicontrolados y ratificó que estas cepas nuevas no solo promueven el crecimiento, sino que también mejoran la resiliencia del cultivo frente a condiciones abióticas adversas, a la cual se asocia gran parte de los beneficios de la aplicación de las bacterias promotoras pertenecientes a este género (Saxena et al., 2020).
Además, se ha comprobado que Bacillus presenta mecanismos que favorecen el crecimiento vegetal, entre ellos la fijación de nitrógeno atmosférico mediante la producción de la nitrogenasa (Masood et al., 2020), lo que implica un mayor suministro de este elemento a la planta, favorece la fotosíntesis y, por tanto, incrementa la productividad de los cultivos. Otras especies como B. thuringiensis benefician el desarrollo de las raíces y la absorción de nutrientes como el manganeso (Huang et al., 2020), aspecto fundamental en el control de insectos en varios cultivos (Moreno-Galván et al., 2020). Estas y otras características evidencian su versatilidad y les confieren ventajas competitivas con respecto a otros géneros bacterianos, ya que, además, refuerzan la actividad enzimática del suelo (Kumar et al., 2021), de ahí que su empleo resulte importante.
En cuanto a Cupriavidus, los resultados mostraron que las nuevas cepas de este género bacteriano presentaron atributos en la promoción del crecimiento bajo condiciones de estrés salino. Cupriavidus se asocia a géneros conocidos por su efectividad en la simbiosis y adaptabilidad (Chevallereau et al., 2022), debido a su capacidad de interacción planta-microorganismo, promoviendo un ambiente microbiano competitivo y benéfico para ambos miembros de la asociación. Entre las funciones destacadas de este género se incluyen la fijación de nitrógeno (Tang & Capela, 2020), la solubilización de fosfatos (Linda et al., 2025) y la resistencia a metales pesados como cobre y cadmio (Abd El-Daim et al., 2019; Shamim & Rehman, 2013), lo cual favorece la nutrición y tolerancia del tomate.
En el estudio con los cultivares de tomate se demostró la efectividad de la aplicación de nuevas cepas de Cupriavidus, lo cual sugiere la validez de su empleo en cultivos sometidos a condiciones de estrés salino. Esto se alinea con estudios previos que reportan la eficacia de este género en otros sistemas como semihidropónicos y cultivos protegidos (Cervantes-Vázquez et al., 2021; Zulueta-Rodríguez et al., 2020). Los hallazgos descritos en la literatura respaldan la funcionalidad y las adaptaciones observadas en las nuevas cepas, como indicativo no solo de su capacidad de sobrevivir en ambientes con alta salinidad, sino también de que pueden desempeñar roles significativos en sistemas agrícolas afectados por este tipo de estrés. Ambos géneros identificados en el estudio permiten el diseño de nuevos consorcios bacterianos que se potencien mutuamente para el beneficio de los cultivos.
Conclusiones
Las cinco bacterias halotolerantes aisladas de suelos de la Ciénaga de Zapata pertenecen a los géneros Bacillus y Cupriavidus. Todas mostraron características promotoras del crecimiento vegetal, aunque sobresalieron las cepas CZ1 y CZ6 en la estimulación de los dos cultivares de tomate estudiados. Estos resultados indican que los aislados poseen atributos funcionales clave para su uso como inoculantes microbianos en ambientes salinos.

