


 Espanhol (pdf)
 Artigo em XML
 Referências do artigo

 Tradução automática
 Enviar este artigo por email
 Citado por SciELO
 Similares em
SciELO

 Permalink


Introducción
El frijol común (Phaseolus vulgaris L.) es una fabácea nativa de América (desde el Norte de México, incluye América Central, hasta el Noroeste de Argentina) (Blair et al., 2010). En la actualidad, junto con otras cinco especies de leguminosas domesticadas pertenecientes al género Phaseolus, son las más consumidas, en África, Asia y Latinoamérica (Rawal & Navarro, 2019). Este grano contribuye con la seguridad alimentaria en esas regiones, debido a su gran valor nutricional como fuente de proteínas, minerales y antioxidantes (Chávez-Servia et al., 2016).
Existe una gran diversidad en los rasgos morfológicos de los granos de frijol mesoamericano, los cuales pueden ser clasificados basados en el color, el cual va desde el blanco hasta el negro e incluye colores como el amarillo y el rojo (Sinkovič et al., 2019).
El maní (Arachis hypogaea L.) también es una fabácea originaria de Sur América (Stalker, 1997). Es uno de los cultivos de granos oleaginosos más producidos a nivel mundial, en su mayoría en países en vías de desarrollo con bajos ingresos (Akram et al., 2018).
Los granos de estos dos cultivos (frijol y maní) son propensos a la contaminación con hongos micotoxigénicos y, por tanto, con micotoxinas. Entre las micotoxinas más relevantes que se pueden encontrar en estos cultivos están las aflatoxinas y las ocratoxinas (Asare Bediako et al., 2019; Telles et al., 2017).
Las micotoxinas son compuestos de bajo peso molecular producidas por el metabolismo secundario de algunos hongos en respuesta a estímulos ambientales. Estas toxinas afectan la salud humana y animal, pueden causar enfermedades como cáncer, efectos en el desarrollo embrionario, desórdenes reproductivos y supresión del sistema inmune (Moretti & Susca, 2017). La contaminación de productos agrícolas con micotoxinas puede ocurrir a lo largo de todo el proceso de producción, desde el campo hasta el almacenamiento (Adeyeye, 2016). Se estima que, a nivel mundial, la contaminación de alimentos con micotoxinas puede alcanzar el 25 % (Eskola et al., 2020), aunque algunos estudios han reportado contaminación de los alimentos de hasta 72 % con al menos una micotoxina y 38 % con dos o más (Streit et al., 2013).
Los principales hongos micotoxigénicos pertenecen al género Aspergillus P. Michelli, Penicillium Link y Fusarium Link, los cuales producen toxinas como aflatoxinas (AFB1, AFB2, AFG1 y AFG2), fumonisinas (FUM), ocratoxina A (OTA), tricotecenos, patulina, zearalenona, entre otras (Omotayo et al., 2019). Las aflatoxinas, micotoxinas producidas por hongos del género Aspergillus, son de gran importancia, ya que son las más tóxicas y carcinogénicas entre los compuestos micotoxigénicos conocidos (Marchese et al., 2018; Ostry et al., 2017). Aspergillus puede contaminar los productos desde el campo (Bailly et al., 2018; Katsurayama et al., 2018) y permanecer en los granos por largos períodos, gracias a su habilidad de sobrevivir como saprófito bajo diferentes condiciones ambientales (Abdel-Azeem et al., 2019; Perrone & Gallo, 2017).
El género Aspergillus incluye seis subgéneros: Aspergillus, Circumdati, Cremei, Fumigati, Nidulantes y Polypaecilum. También, este género de hongos se clasifica en distintas secciones basado en caracteres fenotípicos y fisiológicos (Samson et al., 2014), por ejemplo: las secciones Nigri y Flavi. Entre estas, la sección Flavi (subgénero Circumdati) es una de las más importantes, ya que la especie Aspergillus flavus Link pertenece a esta sección y este hongo es responsable de la producción de la aflatoxina B1 (AFB1), la más tóxica (Houbraken et al., 2020).
Existen otras especies de Aspergillus que pueden producir micotoxinas, por ejemplo, Aspergillus niger Tiegh produce OTA y FUM, mientras que Aspergillus parasiticus Speare produce AFB y AFG, ambos pertenecen al subgénero Circumdati, sección Nigri (Perrone & Gallo, 2017). Por otro lado, hay especies de Aspergillus que producen poca o ninguna micotoxina, como Aspergillus melleus Yukawa que produce OTA y otras que no producen micotoxinas importantes como Aspergillus aculeatus Iizuka, Aspergillus brasiliensis Varga, Frisvad & Samson, Aspergillus japonicus Saito y Aspergillus tubingensis Mosseray (subgénero Circumdati, sección Nigri) (Perrone & Gallo, 2017).
En la naturaleza existen cepas atoxigénicas de A. flavus que pueden ser usadas como biocontroladores (Agbetiameh et al., 2019). Estas cepas perdieron, durante la evolución, de manera parcial o total los genes relacionados con la biosíntesis de aflatoxinas (Yin et al., 2018), por lo que los métodos moleculares son efectivos para identificar cepas atoxigénicas. Por ejemplo, el gen aflR, un factor de transcripción específico requerido para la biosíntesis de aflatoxinas (Khan et al., 2021) y el gen aflT, responsable del transporte de aflatoxinas (aflatoxisomas) (Caceres et al., 2020), han sido utilizados para identificar cepas atoxigénicas de A. flavus (Rao et al., 2020; Wei et al., 2014). Estos genes no están presentes en el genoma publicado de la cepa atoxigénica de A. flavus WRRL1519 (BioProject: PRJNA396578) (Yin et al., 2018).
La identificación de especies de Aspergillus que colonizan granos susceptibles como el frijol común y el maní, es importante para determinar el tipo de micotoxinas que podría contaminar estos granos en campo o durante el almacenamiento. El objetivo del presente estudio fue identificar las especies de Aspergillus que colonizan los granos de frijol y maní en Costa Rica e identificar cepas atoxigénicas de A. flavus.
Materiales y métodos
Localización del estudio
La presente investigación se realizó en el Laboratorio de Micotoxinas del Centro para Investigaciones en Granos y Semillas (CIGRAS) de la Universidad de Costa Rica, San José, Costa Rica.
Recolección de muestras y almacenamiento
Muestras poscosecha (83) de granos desvainados de frijol común (P. vulgaris L.) y de maní (A. hypogaea L.) (19) con tegumento, se recolectaron en Costa Rica, en áreas de cultivo y en sitios de almacenamiento durante el 2019 y 2020. Las muestras se almacenaron en una cámara fría a 5 °C (41 °F) y 85 % de humedad relativa por un máximo de dos meses hasta el aislamiento de los hongos. El número de muestras recolectadas de cada tipo de frijol fue la siguiente: 45 de frijol común rojo, 35 de frijol común negro, 2 de frijol común amarillo y 1 de frijol común blanco. La mayoría (70 %) de ellas se recolectaron en el distrito de Pejibaye de Pérez Zeledón (provincia de San José).
Aislamiento de los hongos y producción de cultivos monospóricos
Para realizar el aislamiento de los hongos, 10 g de granos de frijol común se lavaron tres veces con agua destilada autoclavada dentro de una cámara de bioseguridad. En el caso del maní, primero se removió la cáscara a 20 g de grano y, luego, se lavó tres veces con agua destilada autoclavada, todo dentro de una cámara de bioseguridad.
Se realizaron cultivos microbiológicos con cinco granos, ya fuera de frijol o maní, en platos de Petri de 90 mm con medio agar extracto de malta (20 g L-1 de agar bacteriológico (Oxoid®), 20 g L-1 de extracto de malta (DifcoTM), pH 5,5). Se realizaron seis réplicas por muestra y se incubaron a 30 °C (86 °F) hasta observar el crecimiento de micelio (2-3 días luego del cultivo). Posteriormente, se realizó un cultivo de punta de hifa de cada aislamiento en el mismo medio de cultivo y se incubó por siete días hasta observar esporulación. Los aislamientos que presentaron microconidios de Aspergillus, de acuerdo con Klich (2002), se seleccionaron y utilizaron para la preparación de cultivos monospóricos.
Los cultivos monospóricos se realizaron con base en la metodología propuesta por Leslie y Summerell (2006), con algunas modificaciones: se agregaron 4-5 secciones de micelio en 1000 µL de agua corriente autoclavada en tubos Eppendorf de 2 mL, la solución se mezcló con el fin de separar las esporas del micelio y se tomó una alícuota para calcular la concentración de esporas con un hemocitómetro Fuchs-Rosenthal (Thomas Scientific, Horsham, PA, USA). La solución de esporas se diluyó hasta obtener 0,6 esporas/µL, la cual se cultivó en 50 µL en medio Czapek Dox Agar (CDA, 50,01 g L-1, pH 8,2, PhytoTechnology Laboratories®) y se distribuyó de forma homogénea en la placa con ayuda de una espátula de Drigalsky. Cada solución de esporas se cultivó de la misma manera por duplicado y se incubó a 30 °C (86 °F), en oscuridad, por 24 h o hasta que se observó el crecimiento de cada monospórico a simple vista. Se recolectaron dos microcolonias al azar de cada aislamiento y se colocó, cada una por aparte, en medio CDA en las mismas condiciones antes descritas, hasta que se produjo suficiente micelio para la extracción de ADN.
Identificación molecular de los aislamientos de Aspergillus
El micelio proveniente de cada cultivo monospórico se separó del medio de cultivo y se liofilizó por tres días para remover el agua que interfiere con la posterior extracción de ácidos nucleicos. El ADN se extrajo basado en el protocolo descrito por Brandfass y Karlovsky (2008) a partir de 20 mg de micelio seco molido.
La identificación molecular de los aislamientos se realizó mediante PCR, seguido de la secuenciación de la región del espaciador transcrito interno (ITS por sus siglas en inglés), con los iniciadores universales ITS1 e ITS4 (Samson et al., 2014). La identificación también se realizó mediante secuenciación parcial del gen de la calmodulina (cmd), para lo cual se usaron los iniciadores Cmd5 y Cmd6 (Hong et al., 2005). El PCR se realizó en un termociclador Eppendorf flexlid (Mastercycler nexus gradient, Hamburgo, Alemania) y cada reacción estuvo compuesta de 1X Dream taq buffer, 0,4 U de taq polimerasa (Thermo Scientific, USA), 0,2 μM de cada iniciador y 2 μL de ADN (100 ng μL-1), en un volumen final de 15 μL. Se utilizaron las siguientes condiciones térmicas: 95 °C por 5 min, 30 ciclos de: 95 °C por 30 s, 60 °C por 30 s y 72 °C por 1 min, con una extensión final de 5 min.
Los productos de PCR se enviaron a Macrogen, Inc. (South Korea) para la secuenciación. La calidad de las secuencias se verificó y el alineamiento de las mismas se realizó con la herramienta de alineamiento múltiple ClustalW (Thompson et al., 1994). Las secuencias que mostraron cromatogramas irregulares en los extremos 5' y 3' se eliminaron para evitar errores durante la identificación de las especies. Las especies de Aspergillus se identificaron con base en la herramienta Blast (Basic Local Alignment Search Tool) del Centro Nacional de Información Biotecnológica (NCBI por sus siglas en inglés), mediante comparación de las secuencias contra las depositadas en la base de datos del GenBank (Clark et al., 2016). El análisis filogenético se realizó con el método de máxima similitud con el programa MEGA-X (Molecular Evolutionary Genetic Analysis) versión 10.1.5 (Kumar et al., 2018). Las similitudes se infirieron a partir de las secuencias parciales combinadas de los genes ITS y Cmd. Los valores de Bootstrap se generaron en cada nodo con mil réplicas y se tomaron en cuenta solo los valores de Bootstrap superiores al 80 %. Se utilizó Fusarium temperatum Scaufl. & Munaut como grupo externo. Las accesiones de las especies control para el gen ITS son: A. aculeatinus Noomin, Frisvad, Varga & Samson MT023714, A. fischeri Wehmer MH858698, A. flavus MF685311, A. japonicus MG543694, A. niger JX469424, A. tubingensis MT729937, F. temperatum MH980131. Las accesiones de las especies control para el gen Cmd son: A. aculeatinus MH644882, A. fischeri EF669865, A. flavus LS999591, A. japonicus EU021690, A. niger KT150506, A. tubingensis MH644895, F. temperatum MW402486.
Identificación de los aislamientos atoxigénicos de A. flavus
La determinación de la no toxicidad de los aislamientos de A. flavus, se realizó mediante dos métodos. El primero consistió en la amplificación de una sección de dos genes relacionados con la biosíntesis de aflatoxinas basado en Wei et al. (2014). El segundo consistió en la extracción y el análisis de las micotoxinas producidas por los aislamientos mediante UHPLC-MS/MS.
La primer metodología permitió la identificación temprana y rápida de los aislamientos atoxigénicos de A. flavus (Srour et al., 2017). Se utilizaron las mismas condiciones de PCR antes descritas, con algunas modificaciones: alineamiento a 55 °C y la extensión en cada ciclo se realizó a 72 °C por 90 s. Las secuencias de los imprimadores fueron para el gen aflT (gen relacionado con transporte de aflatoxinas): aflT_F (5'-ATGACATGCTAATCGACGAG-3') y aflT_R (5'-AGGCGCATGCTACGGATC-3') (Chang et al., 2004) y para el gen aflR (regulador transcripcional de la biosíntesis de aflatoxinas): aflR_F (5'-ATGGTCGTCCTTATCGTTCTC-3') y aflR_R(5'-CCATGACAAAGACGGATCC-3') (Wei et al., 2014). Para el segundo método, la producción de micotoxinas se determinó mediante cromatografía líquida acoplada a masas con 20 g de grano molido inoculado con 500 esporas/mL de cada aislamiento por dos semanas a 30 °C (86 °F). La extracción y análisis de micotoxinas se llevó a cabo basado en Acuña-Gutiérrez et al. (2021), a través de cromatografía líquida de ultra-alta resolución (UHPLC), acoplada a un espectrómetro de masas de triple cuadrupolo (Ultimate 3000 TSQ Endura, TQH-E1-0288 series, Thermo Fisher Scientific, Massachusetts, USA). Se realizaron cinco réplicas por aislamiento de A. flavus.
Resultados
Identificación molecular de los aislamientos de Aspergillus
En el caso del frijol, se identificaron 83 aislamientos como Aspergillus spp., mientras que en maní, trece aislamientos se identificaron dentro de este género. Un 46 % de las muestras recolectadas de frijol presentaron contaminación con Aspergillus spp. Según el tipo de frijol, el número de muestras contaminadas con este hongo fue de: 19 (54 %) en frijol negro, 16 (36 %) en frijol rojo, 2 (100 %) en frijol amarillo y 1 (100 %) en frijol blanco. En el caso del maní, se recolectaron diecinueve muestras de las cuales 32 % mostraron contaminación por alguna especie de Aspergillus sp.
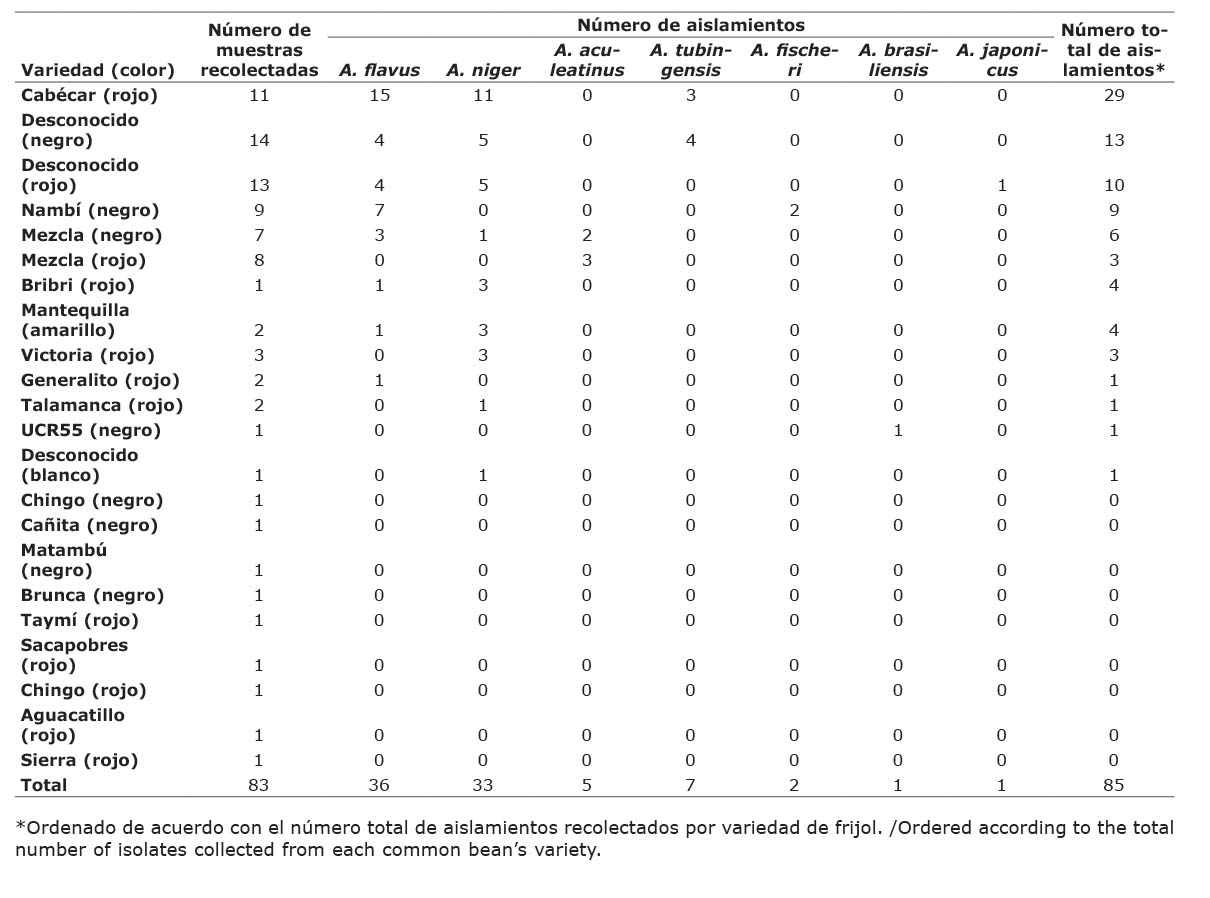
De los 83 aislamientos de Aspergillus spp. obtenidos de frijol, la mayoría pertenecen a la especie A. flavus (sección Flavi) (35 aislamientos), seguido de A. niger (Sección Nigri) (33 aislamientos). Otras especies identificadas fueron: A. aculeatinus (Sección Nigri) (cinco aislamientos), A. tubingensis (Sección Nigri) (siete aislamientos), A. fischeri (Sección Fumigati) (dos aislamientos), y A. japonicus (Sección Nigri) (un aislamiento) (Figuras 1 y 2). La mayoría de los aislamientos de A. flavus se aislaron de las variedades de frijol Cabécar (quince aislamientos) y Nambí (siete aislamientos), mientras que la mayoría de los aislamientos de A. niger se aislaron de la variedad Cabécar (once aislamientos) (Cuadro 1). La mayoría de las variedades de frijol que no presentaron contaminación con hongos del género Aspergillus se recolectaron de La Garita de Alajuela o de San Juan de las Vegas de Parrita.

Figura 1 Árbol circular de máxima verosimilitud de los aislamientos de Aspergillus obtenidos a partir de granos de frijol Phaseolus vulgaris L cultivado en Costa Rica en 2019 y 2020 Laboratorio de Micotoxinas del Centro para Investigaciones en Granos y Semillas CIGRAS de la Universidad de Costa Rica San José Costa RicaLos aislamientos de A. flavus con el símbolo en forma de rombo fueron identificados como atoxigénicos. Figure 1. Maximum likelihood circular tree of the Aspergillus isolates obtained from grains of common beans (Phaseolus vulgaris L.) cultivated in Costa Rica in 2019 and 2020. Mycotoxin Laboratory of the Centro para Investigaciones en Granos y Semillas (CIGRAS), Universidad de Costa Rica, San Jose, Costa Rica. A. flavus isolates with the diamond symbol were identified as atoxigenic.
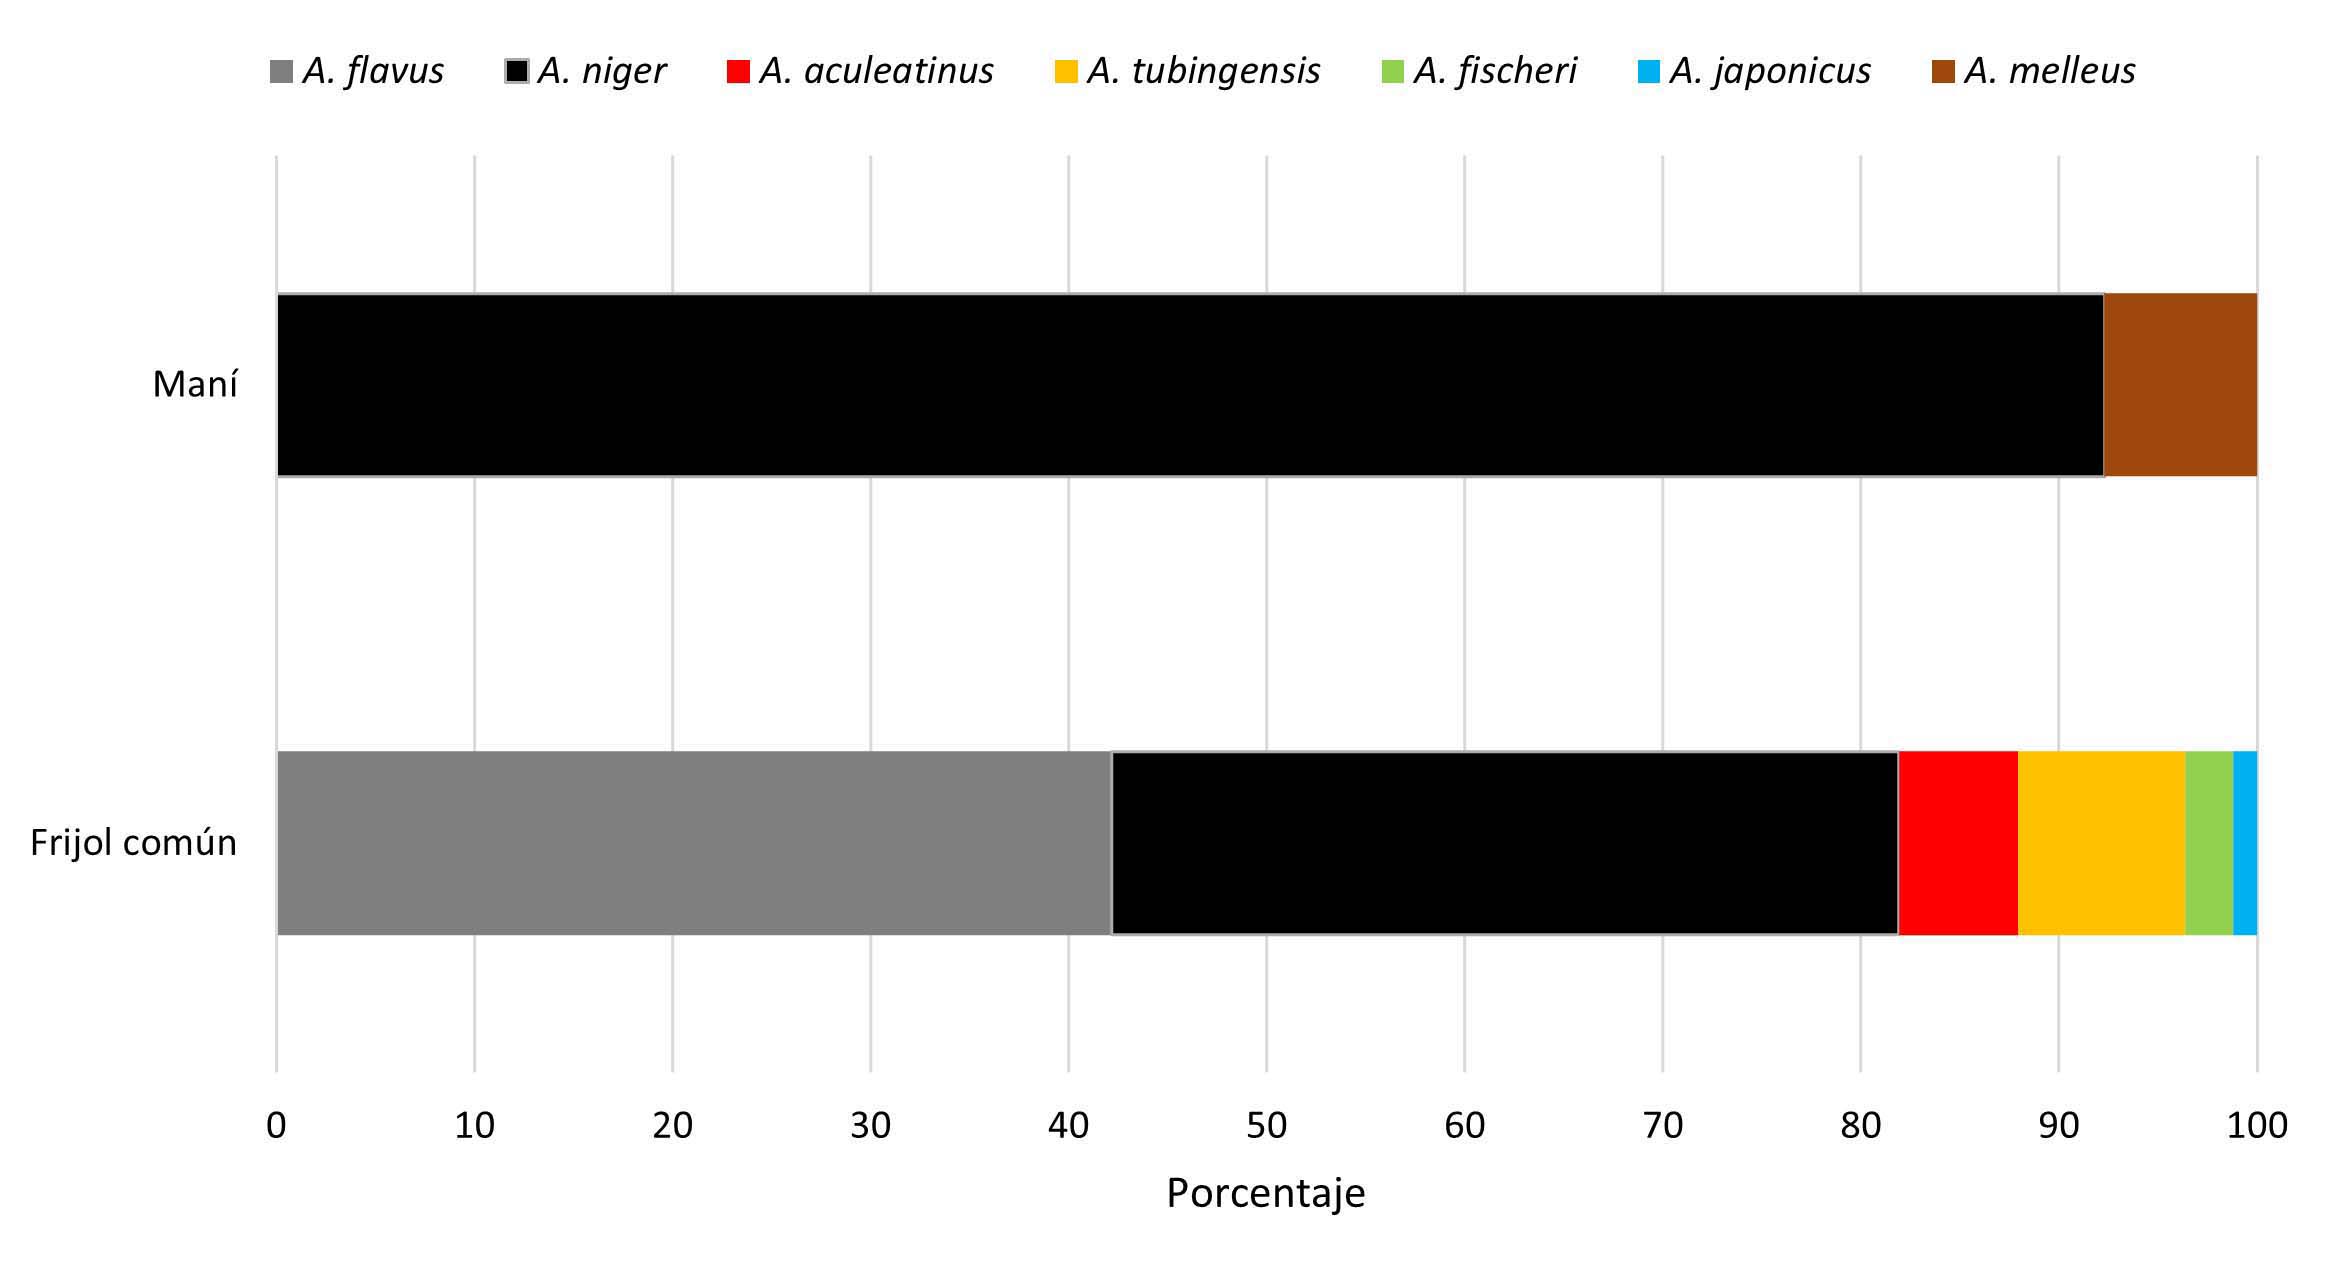
Figura 2 Porcentaje de especies de Aspergillus aisladas de granos de maní (Arachis hypogaea L.) y granos de frijol común (Phaseolus vulgaris L.) cultivado en Costa Rica en 2019 y 2020. Laboratorio de Micotoxinas del Centro para Investigaciones en Granos y Semillas (CIGRAS) de la Universidad de Costa Rica, San José, Costa Rica. Figure 2. Percentage of Aspergillus species isolated from grains of peanuts (Arachis hypogaea L.) and grains of common beans (Phaseolus vulgaris L.) cultivated in Costa Rica in 2019 and 2020. Mycotoxin Laboratory of the Centro para Investigaciones en Granos y Semillas (CIGRAS), Universidad de Costa Rica, San Jose, Costa Rica.
Cuadro 1 Número de aislamientos de cada especie de Aspergillus obtenido a partir de granos de las variedades de frijol común (Phaseolus vulgaris L.) cultivado en Costa Rica en 2019 y 2020. Laboratorio de Micotoxinas del Centro para Investigaciones en Granos y Semillas (CIGRAS) de la Universidad de Costa Rica, San José, Costa Rica. Table 1. Number of isolates of each Aspergillus species obtained from grains of different varieties of common beans (Phaseolus vulgaris L.) cultivated in Costa Rica in 2019 and 2020. Mycotoxin Laboratory of the Centro para Investigaciones en Granos y Semillas (CIGRAS), Universidad de Costa Rica, San Jose, Costa Rica.
En maní se obtuvieron un total de trece aislamientos, solo uno fue identificado como A. melleus y los demás se identificaron como A. niger (Figura 2).
Identificación de los aislamientos atoxigénicos de A. flavus
Basado en la amplificación de los genes aflT (transportador relacionado con aflatoxisomas) y aflR (factor de transcripción necesario para la biosíntesis de aflatoxinas), no se encontraron aislamientos atoxigénicos en maní.
Un total de cinco aislamientos atoxigénicos de A. flavus se encontraron en frijol. Estos aislamientos se encontraron en las siguientes variedades: Nambí (1 aislamiento, #4), frijol comercial negro (1 aislamiento, #28), Generalito (dos aislamientos, #105 y #107) y Cabécar (1 aislamiento, #142). Los aislamientos se obtuvieron de muestras recolectadas en su mayoría en la región Pacífico-Sur del país, en El Águila de Pejibaye de Pérez Zeledón (aislamientos #4, #28 y #142); mientras que solo dos aislamientos se obtuvieron de muestras recolectadas en la Región Central del país, en La Garita de Alajuela (aislamientos #105 y #107).
Discusión
En la presente investigación se determinó la presencia de hongos del género Aspergillus en granos poscosecha de maní y frijol cultivados en Costa Rica en 2019 y 2020. La mayor contaminación se presentó en muestras de frijol, el cual presentó un 46 % de muestras contaminadas, mientras que en maní fue de un 32 %. Este porcentaje en maní se consideró bajo, ya que es común la contaminación de este grano con especies de Aspergilllus, algunas veces puede llegar a porcentajes cercanos al 100 % (Jayaprakash et al., 2019; Mohammed & Chala, 2014). La zona donde se recolectaron las muestras podría ser el factor determinante para la prevalencia de Aspergillus, por ejemplo, la mayoría de las muestras de granos de frijol se obtuvieron en el distrito de Pejibaye de Pérez Zeledón (San José, Costa Rica). Este distrito está localizado en una subregión climática de Costa Rica denominada Pacífico Central 1 (PS1), que presenta un tipo de clima ''lluvioso con influencia monzónica'' con promedios de precipitación elevados de hasta 4560 mm anuales (datos de 2009-2018, Lat: 9° 20' 59'' Norte, Lon: 83° 35' 59'' Oeste, Montecarlo, Pérez Zeledón) (Instituto Meteorológico Nacional, s.f.). Las altas humedades relativas ocasionadas por elevadas precipitaciones son apropiadas para el crecimiento del hongo Aspergillus. Por otro lado, la mayoría de las muestras de maní se recolectaron en diferentes localidades de Alajuela (Atenas, San Rafael, La Garita y La Guácima), zonas ubicadas en la subregión climática denominada Valle Central 1 (VC1), que presenta un tipo de clima ''de sequía'' con precipitaciones anuales aproximadas de 1800 mm (datos de 1995-2018, Lat: 10° 0' 0'' Norte, Lon: 84°15' 59'' Oeste, Estación Experimental Agrícola Fabio Baudrit Moreno) (Instituto Meteorológico Nacional, s.f.). Además, se recolectaron con cáscara y solo se abrieron en condiciones asépticas, lo cual pudo favorecer la remoción de los hongos que se encontraban en la cáscara.
La mayoría (81 %) de los aislamientos de frijol en el presente estudio pertenecen a las especies A. flavus (42 %) y A. niger (39 %), ambas productoras de micotoxinas importantes desde el punto de vista de salud pública. A. flavus es una especie toxigénica y se puede encontrar en gran variedad de cultivos; produce aflatoxinas del tipo B1 y B2 (AFB1 y AFB2), algunas cepas pueden producir también el tipo G1 y G2 (AFG1 y AFG2), las AFB1 son las de mayor importancia al ser calificadas como sustancias cancerígenas de grado 1 (Ostry et al., 2017). Además, A. niger, es un hongo encontrado en alimentos contaminados y que tiene la capacidad de producir ocratoxina A (OTA) y fumonisina B2 y B4 (FUMB2 y FUMB4), ambas con potencial carcinogénico (Frisvad et al., 2011; Ostry et al., 2017). A. flavus y A. niger han sido identificadas en granos de frijol (Santos-Ciscon et al., 2019). Otras especies identificadas, en el presente estudio, en menor cantidad en granos de frijol fueron: A. aculeatinus, A. tubingensis, A. fischeri, A. brasiliensis y A. japonicus, sin embargo, no son importantes productoras de micotoxinas (Somma et al., 2012).
En el presente estudio no se observaron tendencias de contaminación del frijol según el color de este, ya que tanto en los granos rojos como negros hubo contaminación por el hongo Aspergillus. Aunque sí se observaron algunas diferencias según la variedad de frijol, por ejemplo, la mayoría de los aislamientos de Aspergillus se obtuvieron a partir de la variedad de frijol Cabécar. Este frijol es una variedad de grano rojo y es la más sembrada en Costa Rica (Consejo Nacional de Producción, 2017). En el caso del frijol negro, la variedad Nambí fue la que presentó la mayor cantidad de aislamientos, esta variedad, que presenta características de resistencia a sequía (López Sedo, 2017), también se siembra en gran cantidad en el país.
En el caso del maní, la especie predominante fue A. niger, la cual ha sido identificada en granos de maní como un patógeno asintomático (Palencia et al., 2010) y que produce toxinas como fumonisinas y ocratoxinas. En el caso de A. melleus, esta especie puede producir OTA pero en bajas cantidades (Perrone & Gallo, 2017). Las ocratoxinas, micotoxinas producidas por las dos especies de Aspergillus encontradas en maní, se encuentran de forma recurrente en este grano en diferentes partes del mundo (Toffa et al., 2013), por lo que, basado en los resultados de este trabajo, se esperaría que estas sean las especies responsables de la contaminación del maní por ocratoxinas en Costa Rica.
A partir de este trabajo, se logró identificar cinco cepas atoxigénicas de A. flavus, que podrían ser usadas a futuro en el control biológico de aflatoxinas en frijol costarricense.
Conclusiones
Hubo presencia de hongos del género Aspergillus en granos de frijol y maní producidos en Costa Rica. Muchas de las especies identificadas son micotoxigénicas, lo cual representa un potencial peligro para los consumidores de estos productos.
En frijol, la especie predominante fue A. flavus, hongo que produce aflatoxinas, mientras que en maní predominó el hongo A. niger, productor de ocratoxinas y fumonisinas, estas micotoxinas son dañinas para la salud humana y animal.
Las cepas no toxigénicas de A. flavus encontradas en frijol en el presente estudio son un primer aporte para el desarrollo inicial de productos de control biológico contra aflatoxinas en este cultivo.

