


 Spanish (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
 Cited by SciELO
 Similars in
SciELO
 uBio

 Permalink


Introducción
Las praderas de pasto marino son ambientes costeros que proporcionan una variedad de servicios ecosistémicos, como ser hábitat para especies de interés comercial y otras con estatus de conservación amenazadas o vulnerables (Gillanders, 2006). Las praderas, además, tienen la capacidad de reducir la velocidad de las corrientes de agua y disminuir la energía de las olas (Fonseca & Cahalan, 1992; Ward et al., 1984), favoreciendo la sedimentación del material suspendido en la columna de agua y evitando la resuspensión de los sedimentos ya depositados (Potouroglou et al., 2017), así como protegiendo la costa contra la erosión (Ondiviela et al., 2014). Las praderas de pasto marino también secuestran carbono orgánico, principalmente en el sedimento asociado, lo que las convierte en elementos clave para iniciativas de mitigación del cambio climático (Barbier et al., 2011; Gacia et al., 2002; Holmer, 2018; Mazarrasa et al., 2018). Sin embargo, estos servicios ecosistémicos pueden verse modificados por las características biológicas, estructurales y paisajísticas de las praderas (Fourqurean et al., 2012; Lanuru et al., 2018; Mazarrasa et al., 2018; Potouroglou et al., 2017).
La productividad, biomasa y diversidad de los pastos marinos pueden ser influenciadas por diversos factores. Algunos de estos factores clave incluyen la disponibilidad de nutrientes y la profundidad (Enríquez et al., 2019), conocidos como procesos “de abajo hacia arriba” (Lee & Dunton, 1997). En tanto, los procesos “de arriba hacia abajo” se refieren principalmente al efecto de la herbivoría (Valentine & Duffy, 2006), la cual puede afectar la estructura, biomasa y productividad de una pradera de pasto marino, especialmente cuando involucra herbívoros de gran tamaño como las tortugas marinas (Heithaus et al., 2014). El exceso de herbivoría puede llevar al deterioro marcado o incluso a la desaparición de las praderas (Camp et al., 1973; Fourqurean et al., 2019; van Tussenbroek et al., 2014). Varias especies de menor tamaño, como gasterópodos, isópodos y anfípodos, se alimentan frecuentemente del pasto marino o de algas epífitas que crecen sobre sus hojas (Valentine & Duffy, 2006). Otros organismos que forrajean en el pasto marino incluyen varias especies de peces óseos (Unsworth et al., 2007) y cartilaginosos, como el tiburón Sphyrna tiburo (Leigh et al., 2018) y algunas aves acuáticas (Kollars et al., 2017). A nivel mundial, se considera que los erizos son los principales herbívoros de pasto marino (van Tussenbroek et al., 2006). Sin embargo, en sitios con presencia frecuente de megaherbívoros como la tortuga verde (Chelonia mydas), los erizos son desplazados en importancia ya que las tortugas consumen más biomasa del pasto (Valentine & Duffy, 2006).
Los pastos marinos en el Parque Nacional Cahuita (PNC) se desarrollan en la laguna arrecifal y se estima que comprenden el área de pastos más extensa del Caribe de Costa Rica (Cortés et al., 2019; Kjerfve, 1998; Samper-Villarreal et al., 2018). La pradera de pasto marino en el PNC se encuentra formada principalmente por Thalassia testudinum y Syringodium filiforme, con reportes de presencia de Halodule wrightii y Halophila decipiens (Samper-Villarreal et al., 2018).
Los pastos marinos en el PNC han sido monitoreados utilizando la metodología CARICOMP frente al río Perezoso desde 1999, área donde se ha evidenciado una disminución drástica en la complejidad estructural del dosel (Cortés et al., 2010; Cortés et al., 2019; Fonseca et al., 2007; Loría-Naranjo et al., 2018; Nielsen-Muñoz & Cortés, 2008; van Tussenbroek et al., 2014). Durante este monitoreo, se ha evidenciado la disminución de la biomasa fotosintética, la longitud de las hojas, la densidad de haces y la productividad foliar de T. testudinum (Cortés et al., 2010; Fonseca et al., 2007; Loría-Naranjo et al., 2018; van Tussenbroek et al., 2014). Este cambio en los pastos marinos del sitio de monitoreo de largo plazo del PNC, no se ha vinculado con un deterioro en la calidad de agua (Samper-Villarreal et al., 2021). En cambio, se identificó la herbivoría como un factor importante para explicar los cambios observados (Samper-Villarreal et al., 2022). Sin embargo, a la fecha no se han reportado las principales especies de herbívoros que consumen pasto marino en esta pradera, ni su tasa de consumo.
El objetivo de este estudio fue evaluar la complejidad estructural de la pradera de pasto marino, analizando el tamaño de la pradera y la profundidad a la que se encuentran los pastos, su cobertura, densidad de haces, biomasa fotosintética, índice de área foliar (IAF) y el contenido de carbono en el sedimento asociado, así como su relación con la herbivoría de la tortuga verde. Para ello, se estimó la densidad y abundancia de tortugas mediante transectos aéreos y se realizaron experimentos de alimentación para estimar su tasa de herbivoría. Nuestras hipótesis fueron que (1) los pastos marinos serían más abundantes en las zonas más someras, donde la poca profundidad se considera una limitación de acceso para las tortugas; y (2) que los sitios con mayor complejidad estructural del pasto marino contendrían una mayor cantidad de carbono en el sedimento superficial.
Materiales y métodos
Sitio de muestreo: El Parque Nacional Cahuita (PNC) se encuentra en el Caribe Sur de Costa Rica, donde la precipitación promedio anual fue de 3 185 ± 801 mm (prom. ± desv. est.) entre 2007-2015. Mientras que la temperatura fue de 25.6 ± 1.3 °C. Durante el periodo de 2002-2022, los meses más cálidos fueron de abril a octubre, mientras que los menos lluviosos correspondieron a febrero, marzo y abril, así como a septiembre y octubre (Garro-Molina et al., 2023). Abarca una extensión marítima de 244 km2, destacándose en su zona marina la presencia de un arrecife de franja (Fonseca et al., 2006). La cresta arrecifal disminuye la intensidad del oleaje y genera una laguna arrecifal de aproximadamente 3 km2 (Cortés & Risk 1985; Cortés et al., 2010; Cortés, 2016). En la laguna arrecifal desembocan dos ríos de forma intermitente: Perezoso y Suárez (Fig. 1). En esta laguna, se encuentra una pradera de pasto marino con una extensión estimada de 0.2 km2 (Samper-Villarreal et al., 2018), la cual ha sido monitoreada por el programa CARICOMP de forma continua desde 1999 (Cortés et al., 2010; Fonseca et al., 2007; Loría-Naranjo et al., 2018). Además, entre 2005-2007 se estudiaron las tortugas marinas en la laguna y el arrecife, donde se observó la presencia de tortuga verde, tortuga carey (Eretmochelys imbricata), tortuga baula (Dermochelys coriacea) y tortuga cabezona (Caretta caretta) (Hancock, 2006; Hancock, 2007). Los estudios realizados con tortugas marinas reportaron la presencia de juveniles y adultos de tortuga verde en la laguna, con una densidad inferior a 0.3 individuos por km2, estimada a través de transectos subacuáticos (Hancock, 2005).
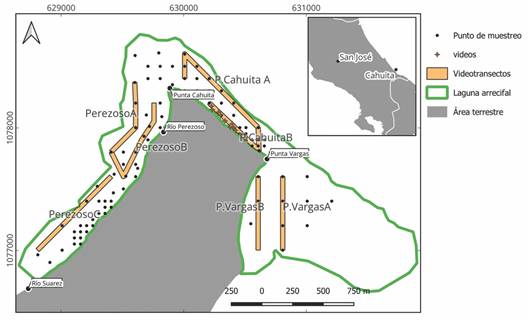
Fig. 1 Mapa del sitio del estudio sobre la complejidad estructural de pastos marinos en el Parque Nacional Cahuita, Limón, Costa Rica y el efecto de la herbivoría por Chelonia mydas. La línea verde indica la posición de las crestas arrecifales y la zona intermareal que limitan la laguna arrecifal del Parque Nacional Cahuita. Los puntos indican los sitios donde se determinó la profundidad, contenido de carbono del sustrato, densidad de haces de pasto marino, biomasa fotosintética y área foliar de T. testudinum, las estrellas indican los sitios de videos de experimentos de anclaje y las áreas naranjadas los transectos muestreadas por video en la laguna arrecifal. / Fig. 1. Site map of the study on the structural complexity of seagrasses in Cahuita National Park, Limón, Costa Rica, and the effect of herbivory by Chelonia mydas. The green line indicates the position of the reef crests and the intertidal zone that delimits the reef lagoon of Cahuita National Park. The dots indicate the sites where depth, sediment carbon content, seagrass shoot density, photosynthetic biomass, and leaf area of T. testudinum were determined. The stars indicate the sites of seagrass tethering experiment videos, and the orange areas represent the transects sampled by video in the reef lagoon.
Muestreo de la pradera: La selección de puntos para el muestreo de la complejidad estructural de la pradera de pasto marino se realizó con base en los límites de la laguna arrecifal, utilizando imágenes de Bing Satellite que fueron obtenidas por medio de QGIS (QGIS Development Team, 2023) y corregidos con observaciones de campo. Los puntos de muestreo se establecieron de forma sistemática distribuyendo el área total de la laguna arrecifal en una grilla con cuadrantes de 50 x 50 m utilizando el programa QGIS. La distribución de los puntos de muestreo estuvo limitada por la zona intermareal y la cresta arrecifal, o profundidades mayores a 6 m. Cada punto se ubicó en el campo utilizando un GPS (Garmin 60 Csx). Debido a la extensión total de la zona de estudio primeramente se evaluaron puntos de muestreo separados cada 200 m. En caso de encontrarse pasto marino en un punto, se procedió a muestrear los puntos contiguos situados cada 50 m (Fig. 1) permitiendo mayor resolución de muestreo en la pradera.
Contenido de carbono en el sedimento: Para la cuantificación de carbono orgánico y carbonatos en el sedimento superficial se recolectó una muestra de 20 ml de sedimento en cada punto, utilizando una jeringa plástica de 60 ml de capacidad. En campo, las muestras de sedimento fueron mantenidas en frío y después congeladas en el laboratorio. Posteriormente, las muestras fueron secadas por dos días a 60 °C y luego homogeneizadas utilizando un mortero de porcelana. Los porcentajes de carbono orgánico e inorgánico se cuantificaron mediante el método de peso ceniza, por variación de peso de crisoles quemados a 550 °C durante cuatro horas y 950 °C durante dos horas, respectivamente (Heiri et al., 2001; Howard et al., 2014).
Caracterización de la pradera: Para analizar la complejidad estructural de la pradera de pasto marino, en 2019 (28 de setiembre a 2 de noviembre), en cada punto de muestreo, se midió la profundidad de la columna de agua utilizando una cinta métrica en el momento del muestreo y se cuantificó el contenido de carbono en el sedimento superficial. Se analizó la cobertura, densidad de haces y biomasa fotosintética por especie de pasto marino y el índice de área foliar (IAF) de T. testudinum. Estas variables fueron determinadas debido a que representan bien la variabilidad de la estructura en una pradera multiespecífica (Pausch et al., 2024; Vieira et al., 2018) y han sido utilizadas en estudios previos en esta pradera (Loría-Naranjo et al., 2018; Samper-Villarreal et al., 2022). En 2021 (12-22 de octubre), se muestreó nuevamente la cobertura de pasto marino, utilizando la mayor cantidad posible de los mismos puntos muestreados en 2019.
La cobertura de pasto marino por especie se estimó utilizando la metodología de Weinberg (1978), utilizando una cuadrícula de PVC de 0.5 x 0.5 m. Para cuantificar la densidad de haces de cada especie de pasto marino, se colocó una cuadrícula rectangular metálica más pequeña de 0.1 x 0.2 m dentro de cada cuadrícula de PVC y se dividió la cantidad de haces en la cuadrícula entre el área de esta. Dentro de cada cuadrícula metálica se recolectaron aleatoriamente tres haces por especie de pasto. La parte verde de las hojas fue secada a 60 °C y pesada para determinar la biomasa fotosintética por metro cuadrado (BF = biomasa seca x número de haces pesados-1 x densidad de haces). En los casos en que las hojas presentaban algas calcáreas visibles o palpables, se sumergieron durante 5 s en HCl al 10 %, previo a ser enjuagadas, secadas y pesadas. Para T. testudinum los haces fueron fotografiados previo al secado y se determinó el área foliar fotosintética por haz, con el programa ImageJ (Schneider et al., 2012). Con esta información se calculó el Índice de Área Foliar (IAF = área fotosintética/área del sustrato).
Mapeo: Para visualizar la distribución espacial de la pradera de pasto marino y sus características estructurales. Se procedió a elaborar mapas de la profundidad, el contenido de carbono en el sedimento superficial y los diversos parámetros de la pradera. Se estableció como área muestreada la zona interna de la laguna con 150 m alrededor de los puntos muestreados. Se seleccionó este radio para el área de amortiguamiento ya que es la distancia mínima requerida para considerar toda el área entre puntos separados a 200 m como área muestreada. Utilizando QGIS 3.14 se realizaron mapas de interpolación con la distancia inversa ponderada (P = 5). Las interpolaciones de densidad y biomasa fueron convertidas en polígonos, los cuales fueron utilizados para determinar el área ocupada por cada especie de pasto marino (coberturas mayores al 1 %) y la extensión total de la pradera. Una estimación de la biomasa fotosintética total de la pradera fue obtenida para cada especie al multiplicar el área de cada polígono por su valor de biomasa fotosintética por área, este valor permite tener una idea de la cantidad de pasto marino disponible para los herbívoros. Esta se considera un indicador de la cantidad de pasto marino potencialmente disponible para herbívoros (Heck & Valentine, 2006). Tanto las interpolaciones como los polígonos fueron delimitados al interior del área establecida como área de muestreo (Fig. 1).
Densidad de la tortuga verde: Para estimar la densidad de la tortuga verde en la laguna arrecifal, se utilizaron videotransectos utilizando un vehículo aéreo no tripulado (VANT) DJI Mavic Pro (Schofield et al., 2019), grabando en calidad 4K a 30 cuadros por segundo. Los videotransectos fueron realizados entre 7:00-11:00 h del 20 y 22 de octubre de 2021. Estas fechas se encuentran dentro de la época del año de mayor transparencia del agua en el PNC, y además se utilizó un filtro rojo para minimizar el brillo del agua y mejorar la visibilidad. Los videos fueron grabados en siete transectos distribuidos por diferentes sectores de la laguna arrecifal (Fig. 1). Cada video fue tomado a 10 m de altitud, para evitar alteraciones en el comportamiento de las tortugas (Bevan et al., 2018). Durante la grabación el VANT se desplazó a una velocidad constante de 2.8 m/s, sin retroceder, para evitar contar el mismo individuo dos veces, de forma similar al método descrito por Hensel et al. (2018). Las rutas de vuelo fueron planificadas con la aplicación de software ‘Litchi for DJI Drones’ (versión 2.10.0) para garantizar que los puntos de grabación coincidieran con aquellos empleados para el muestreo de pastos marinos, y para mantener una altitud y velocidad constantes. Utilizando una escala de 0.5 m colocada a 0.3 m sobre el agua en uno de los transectos y el programa ImageJ se determinó el ancho de los transectos en 18.5 m. La abundancia de tortuga verde fue estimada al multiplicar la densidad promedio obtenida en los videotransectos por el área de la laguna arrecifal. Al ser muestras pequeñas, los intervalos de confianza se determinaron usando la distribución t de Student.
El largo recto máximo del caparazón de las tortugas (LRCmax) fue estimado con ayuda del programa ImageJ. Debido a la diferencia en profundidad de las tortugas con respecto a la escala el LRCmax aparente se multiplicó por la distancia de la cámara a las tortugas (se consideró 11 m para todas las tortugas, ya que no se pudo cuantificar la profundidad real a la que se encontraban) y se dividió por la distancia de la cámara a la escala (9.7 m). Para reducir el efecto de la difracción y el movimiento de la superficie del agua, el LRCmax de cada tortuga fue promediado a partir de tres mediciones, utilizando diferentes fotogramas. La cobertura y profundidad promedio de los transectos fueron calculadas a partir de las interpolaciones obtenidas en QGIS. Estas interpolaciones fueron convertidas en polígonos y estos recortados al área de cada transecto. Se multiplicó el área de cada polígono por su valor de profundidad o cobertura, la sumatoria de estos valores se dividió entre el área total del transecto.
Cuantificación de la tasa de herbivoría por tortuga verde: Para evidenciar y cuantificar la tasa de herbivoría del pasto marino se realizaron experimentos de anclaje de pastos marinos (Heck & Valentine, 2006) con grabación de videos subacuáticos con cámaras GoPro. Se recolectaron haces de T. testudinum adyacentes a la zona intermareal cercana a los puntos en los cuales fueron grabados los videos (Fig. 1). Los haces recolectados cerca de la orilla tenían hojas más anchas y largas que los encontrados en el punto exacto de grabación. Una vez colectados, los haces fueron fotografiados para determinar el área foliar y anclados a una cuadrícula metálica rectangular de 0.1 x 0.2 m. Cada cuadrícula contó con seis pines basales metálicos para su inserción y anclaje en el sedimento. Las cuadrículas con pasto anclado fueron colocadas en una zona de pasto con hojas más pequeñas y delgadas, entre 35-98 cm de profundidad. Las cuadrículas fueron enterradas en el sedimento, procurando que los haces quedaran enterrados hasta el límite entre el área fotosintética y no fotosintética del haz, buscando imitar la forma en la que se encuentran naturalmente. En el área de 0.1 x 0.2 m se colocaron 24 haces, lo que corresponde a la densidad reportada para Cahuita por Loría-Naranjo et al. (2018). A una distancia aproximada de 1 m de la cuadrícula y a unos 20 cm sobre el sustrato se colocó una cámara GoPro que permaneció grabando cada cuadrícula. A una distancia de 1 y 2 m de la cámara, dentro del campo de visión de esta se colocaron pines metálicos marcados (Fig. 2) que fueron usados como escala para estimar el LRCmax de las tortugas observadas, con ayuda del programa ImageJ.
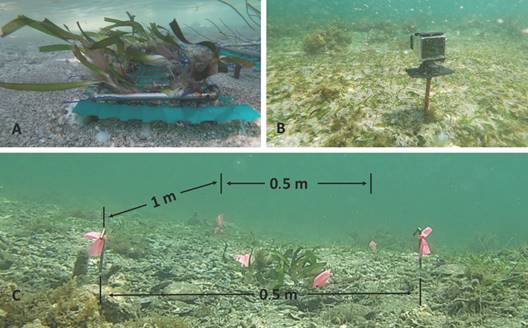
Fig. 2 Montaje de las cuadrículas de experimentos de anclaje para determinar la tasa de herbivoría de tortuga verde sobre el pasto marino en el Parque Nacional Cahuita, Limón, Costa Rica. A. Haces foliares de Thalassia testudinum atados a la cuadrícula antes de ser enterrada en el sustrato. B. Posición de la cámara en el sustrato. C. Distancias entre los pines utilizados como escala para la estimación del tamaño de las tortugas y la posición de estos con respecto a la cuadrícula, que se encuentra a su vez a 1 m de distancia de la cámara. Tanto dos esquinas de la cuadrícula como los cuatro pines metálicos fueron marcados con cinta rosada. / Fig. 2. Setup of experimental grids for tethering to determine the herbivory rate of green turtles on seagrass in Cahuita National Park, Limón, Costa Rica. A. Leaf shoots of Thalassia testudinum tethered to the grid before being buried in the substrate. B. Camera position in the substrate. C. Distances between the pins that were used as a scale for turtle size determination and their relative position to the grid, which is located 1 m away from the camera. Two corners of the grid and the four metal pins were marked with pink tape.
Las grabaciones iniciaron entre las 8:10-14:04 h y finalizaron 95-244 min después, dependiendo de la capacidad de cada batería. De ser posible la cuadrícula fue retirada antes de que se detuviera la grabación; sin embargo, en limitadas ocasiones esto no fue posible por retos en logística de acceso al sitio. Una vez retiradas las cuadrículas, se fotografiaron los haces foliares remanentes, para tener una segunda medida del área foliar. En total, se colocaron 13 réplicas, separadas por al menos 25 m entre sí. Las cuadrículas se colocaron siempre en puntos distintos con el objetivo de evitar que las tortugas aprendieran que en un sitio hay mayor disponibilidad de pasto marino y potencialmente afectara la tasa de herbivoría. De obtener imágenes claras de las escamas de la cabeza en los videos, se identificó la tortuga a nivel de individuo (Reisser et al., 2008). La tasa de herbivoría se determinó como el cambio del área foliar entre el tiempo desde el inicio del video hasta la finalización del experimento de anclaje para consumo del pasto de la cuadrícula. Esta tasa fue tomada como indicadora de la intensidad de herbivoría, como fue realizado por Kirsch et al. (2002). El consumo de pasto se calculó dividiendo el área foliar consumida entre el tiempo durante el cual la tortuga estuvo consumiéndola.
Análisis de datos: Para analizar los efectos de la profundidad, el año y la interacción de estos sobre la presencia de T. testudinum se realizó una modelización ecológica. La cobertura de T. testudinum no tenía distribución normal, debido a la alta frecuencia de puntos con cobertura nula. Debido a esto, la cobertura se categorizó como presencia siempre que hubiera una cobertura mayor a 0 y se analizó por medio de un modelo logístico mixto con el paquete lme4 (Bates et al., 2015) en el programa R (R Core Team, 2021), utilizando el punto de muestreo como variable aleatoria. El ajuste del modelo se evaluó con el pseudo-R2 de McFadden (Hardin & Hilbe, 2007). La relación de la profundidad, proporción de carbonato en el sedimento y biomasa fotosintética de pasto marino con la proporción de carbono orgánico en el sedimento fue analizada con un modelo lineal generalizado. La interacción entre la profundidad y el año no explicaba significativamente la presencia de T. testudinum, por lo que se eliminó del modelo final. Debido a que el contenido de carbono orgánico se encontraba como proporción y no seguía una distribución normal se analizó con el paquete betareg (Cribari-Neto & Zeileis, 2010), para variables con distribuciones beta, en el programa R (R Core Team, 2021). Para el segundo modelo la profundidad y el carbonato no explicaron significativamente el contenido de carbono orgánico, por lo que no se incluyeron en el modelo final.
Resultados
Profundidad: Los puntos muestreados en ambos años abarcaron profundidades entre 0.4-5.3 m, más frecuentemente en profundidades cercanas a los 2 m (Fig. 3, Tabla 1). A su vez, se notó un traslape considerable en las profundidades donde se encontraron las especies T. testudinum y S. filiforme, ambas presentes desde la orilla hasta profundidades cercanas a los 2 m (Tabla 1). Además, fue común observar a estas dos especies creciendo juntas. De las cuatro especies observadas, H. decipiens se encontró a mayores profundidades, sin observarse traslape con las profundidades de T. testudinum ni S. filiforme, aunque sí con H. wrightii (Tabla 1). La mayor cantidad de biomasa por área y cobertura de las especies T. testudinum y S. filiforme fueron observadas a profundidades menores a 1 m, entre Punta Cahuita y Punta Vargas (Fig. 4). La probabilidad de presencia del pasto T. testudinum aumentó a menor la profundidad (Tabla 2).
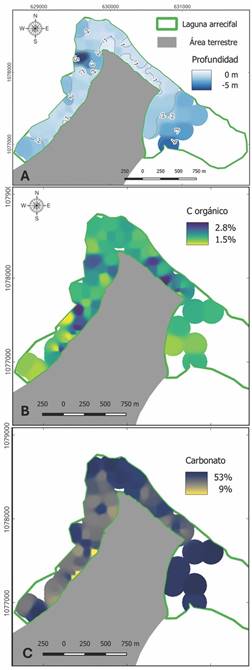
Fig. 3 Dentro de la laguna arrecifal del Parque Nacional Cahuita: A. mapa batimétrico; B. porcentaje de carbono orgánico en el sedimento; y C. contenido de carbonato en el sedimento. / Fig. 3. In the reef lagoon at Cahuita National Park: A. bathymetry map; B. percentage of organic carbon in the sediment; and C. sediment carbonate content.
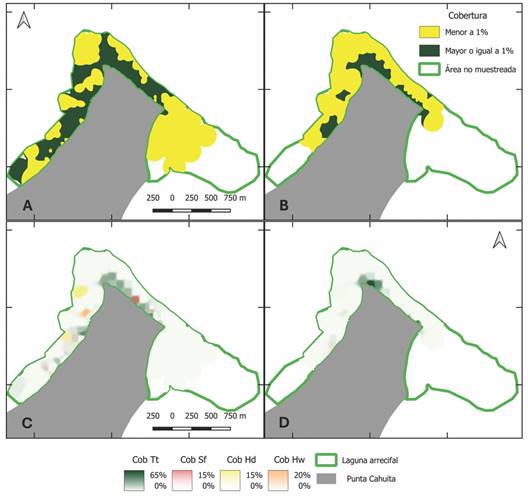
Fig. 4 Cobertura de pasto marino en general y según especie en 2019 A & C. y 2021 B & D. en la laguna arrecifal del Parque Nacional Cahuita, Limón, Costa Rica. / Fig. 4. Seagrass cover in general and by species in 2019 A & C. and 2021 B & D. in the reef lagoon at Cahuita National Park, Limón, Costa Rica.
Tabla 1 Comparación de la estructura de la pradera de pasto marino entre 2019 y 2021, Cantidad de puntos, frecuencia (Frec., %), cobertura (%), densidad (haces/m2), biomasa fotosintética (Biom., g/m2) (Mediana ± RQ) y ámbito de profundidad (m) según la especie de pasto y en total para los pastos marinos encontrados en el Parque Nacional Cahuita, Limón, Costa Rica. / Table 1. Comparison of the seagrass meadow structure between 2019 and 2021. Number of points, frequency (Frec., %), cover (%), density (shoots/m2), photosynthetic biomass (Biom., g/m2) (Median ± IQR) and depth range (m) by seagrass species and in total for seagrasses found at Cahuita National Park, Limón, Costa Rica.
| Pasto Marino | Puntos 2019 | Frec. 2019 | Cobertura 2019 | Densidad 2019 | Biom. 2019 | Puntos 2021 | Frec. 2021 | Cobertura 2021 | Profundidad 2019 & 2021 |
| T. testudinum | 34 | 35 | 10 ± 17 | 300 ± 1025 | 3.8 ± 9.3 | 13 | 19 | 13 ± 35 | 0.4-1.7 |
| S. filiforme | 20 | 21 | 3 ± 4 | 350 ± 200 | 1.6 ± 1.9 | 6 | 9 | 3 ± 3 | 0.6-1.7 |
| H. wrightii | 4 | 4 | 7 ± 4 | 625 ± 1750 | 0.9 ± 2.7 | 0 | 0 | 0 | 1.2-2.5 |
| H. decipiens | 2 | 2 | 13 ± 3 | 1125 ± 125 | 1.2 ± 0.1 | 1 | 1 | 1 | 2.5-5.3 |
| Total | 44 | 46 | 9 ± 16 | 550 ± 1450 | 3.6 ± 9.4 | 16 | 24 | 10 ± 34 | 0.4-5.3 |
Tabla 2 Estimaciones de los parámetros de los modelos logísticos con los que se evaluaron los efectos de diversos factores sobre la presencia de T. testudinum y el contenido de carbono orgánico en el sedimento superficial en el Parque Nacional Cahuita, Limón, Costa Rica. / Table 2. Parameter estimations of the logistical models to evaluate the effect of various factors on the presence of T. testudinum and organic carbon content in surface sediment at Cahuita National Park, Limón, Costa Rica.
| Parámetro | Estimación | Error estándar | P |
| Presencia de T. testudinum | |||
| Intercepto | 4.841 | 1.697 | 0.004 |
| Profundidad | 4.372 | 1.465 | 0.003 |
| Año (2021) | -2.042 | 0.710 | 0.004 |
| R2 | 0.26 | ||
| Porcentaje carbono orgánico | |||
| Intercepto | -3.880 | 0.019 | < 0.001 |
| Biomasa fotosintética | 0.003 | 0.001 | 0.012 |
| R2 | 0.08 |
Carbono en sedimento: El porcentaje de carbono orgánico en el sedimento fluctuó entre 1.5-2.8 %, con una mediana de 2.0 %. Por su parte, el contenido de carbonato varió entre 9.4-52.6 %, con una mediana de 39.7 %. El contenido de carbono orgánico aumentó levemente al haber mayor biomasa fotosintética de pasto marino, pero no se observó efecto significativo de la profundidad ni la proporción de carbonato en este (Tabla 2). No se encontraron patrones evidentes en los porcentajes de carbono orgánico y de carbonato dentro del área de muestreo (Fig. 3).
Tamaño de la pradera de pasto marino: El área de la laguna arrecifal del PNC se calculó en 201.5 ha. En 2019 se muestrearon 96 puntos, cubriendo un área de 149 ha. En 2021, debido a problemas logísticos, solo fue posible muestrear 68 de los puntos originales, cubriendo un área de 89.3 ha. En 2019, se observó al menos una especie de pasto marino en 44 de los puntos muestreados, mientras que en 2021 este número se redujo a 16 puntos (Tabla 1, χ2 = 8.53, 1 g. l., P = 0.003). El área de la pradera de pasto marino en 2019 se estimó en 60.7 ha (41 % del área muestreada) y para 2021 se redujo a 24.7 ha (28 % del área muestreada, Fig. 4). Considerando únicamente los puntos muestreados en ambos años, el área ocupada por pasto marino en 2019 fue de 51.7 ha (58 % del área muestreada). De tal manera, comprando solo los puntos muestreados en ambos años hubo una disminución de 27.0 ha de pasto marino de 2019-2021, lo cual corresponde a una pérdida del 52 % de pasto marino dentro del área muestreada.
Composición de especies y complejidad estructural de la pradera de pasto marino: T. testudinum dominó la estructura de la pradera al ser la especie más frecuentemente encontrada en ambos años (Tabla 1, Fig. 4). Las variables estructurales de T. testudinum, como la cobertura, el Índice de Área Foliar (IAF) y la biomasa fotosintética, mostraron una fuerte correlación con la cobertura y biomasa fotosintética total de pasto marino (Tabla 3). Durante 2019 el IAF de T. testudinum se mantuvo entre valores menores a 0.1 y 4.0; con una mediana de 0.1. Tanto para 2019 como para 2021, T. testudinum presentó mayores coberturas que las otras especies, aunque en algunas zonas donde no se observó, otras especies como H. decipiens o H. wrightii dominaron la cobertura (Tabla 1, Fig. 4). En 31 de los 68 puntos muestreados en ambos años se detectó una reducción o pérdida total de la cobertura de pasto marino en 2021. Solo en cinco puntos se observó un aumento en la cobertura en el segundo año. La mayor densidad de haces se registró para H. wrightii.
Tabla 3 Matriz de correlaciones de Spearman entre las variables que describen la estructura de los pastos marinos en el Parque Nacional Cahuita durante 2019. Cob = Cobertura, IAF = Índice de área foliar, BF = Biomasa fotosintética, Tt = T. testudinum, Sf = S. filiforme, PM = pasto marino. / Table 3. Spearman correlation matrix between variables that describe seagrass structure at Cahuita National Park in 2019. Cob = Cover, IAF = Leaf area index, BF = Photosynthetic biomass, Tt = T. testudinum, Sf = S. filiforme, PM = Seagrass.
| Cob Tt | Cob Sf | Cob PM | IAF Tt | BF Tt | BF Sf | BF PM | |
| Cob Tt | 1.00 | ||||||
| Cob Sf | -0.22 | 1.00 | |||||
| Cob PM | 0.74 | 0.02 | 1.00 | ||||
| IAF Tt | 0.90 | -0.18 | 0.71 | 1.00 | |||
| BF Tt | 0.93 | -0.22 | 0.72 | 0.95 | 1.00 | ||
| BF Sf | -0.20 | 0.94 | -0.01 | -0.19 | -0.23 | 1.00 | |
| BF PM | 0.73 | 0.04 | 0.78 | 0.77 | 0.82 | 0.09 | 1.00 |
En términos de biomasa fotosintética, T. testudinum también fue la especie dominante en la pradera (Tabla 1). La probabilidad de que T. testudinum estuviera presente fue mayor durante 2019 (Tabla 2). A pesar del dominio en cobertura y biomasa fotosintética de T. testudinum, en 2019 se observaron varios parches de unos 2 m2 de S. filiforme mezclada con T. testudinum, con hojas de más de 30 cm de longitud en ambas especies y densidades de hasta 7 150 haces/m2 de S. filiforme, lo que generó una cobertura cercana al 100 %. En estos parches, la biomasa fotosintética de S. filiforme fue de 495 g/m2, muy superior a la biomasa fotosintética máxima de T. testudinum de 114 g/m2. Estos parches eran pocos y pequeños, se encontraban muy cerca de la zona intermareal y no formaron parte del muestreo sistemático inicial, por lo que su presencia no se refleja en las estadísticas ni en los mapas.
Densidad de la tortuga verde en la laguna arrecifal: La densidad de tortugas se estimó en 0.6 ± 0.6 tortugas/ha. Se observaron 12 tortugas en los video transectos realizados. Las tallas de estas tortugas variaron entre el rango de 20-30 cm y de 50-60 cm (Tabla 4). Adicionalmente, se registraron tres tortugas más en la categoría de 50-60 cm, que se observaron fuera de los transectos (Tabla 4). La mayoría de las tortugas observadas por medio de los videos aéreos se encontraban en zonas donde el fondo era visible, con la excepción de una que fue observada en una zona con una profundidad cercana a los 5 m, donde no se apreciaba el fondo (Fig. 5). Con un 95 % de confianza, se estima que la densidad en la laguna arrecifal es de 0.1-1.2 tortugas/ha. Esto equivale a un estimado de entre 14-232 tortugas en toda el área de la laguna. En los transectos ubicados en áreas con pastos marinos (Perezoso y P. Cahuita), se registró una densidad de 0.8 ± 0.6 tortugas/ha. La densidad estimada en los transectos en áreas sin pasto marino (P. Vargas) fue de 0.2 ± 0.6 tortugas/ha (Tabla 5). Sin embargo, es necesario un mayor esfuerzo de muestreo para determinar si estas diferencias son estadísticamente significativas.
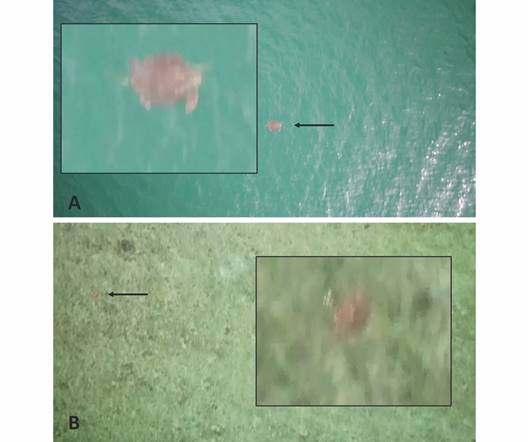
Fig. 5 Ejemplo de tortugas verdes observadas en videos aéreos en el Parque Nacional Cahuita, Limón, Costa Rica. Tortuga con LRCmax estimado de A. 50-60 cm; y B. 20-30 cm. Las flechas muestran la posición de las tortugas en los fotogramas. Los recuadros de línea negra son una ampliación de cada tortuga. / Fig. 5. Sea turtles seen in the areal videos at Cahuita National Park, Limón, Costa Rica. Sea turtle estimated LRCmax of A. 50-60 cm; and B. 20-30 cm. Arrows indicate the position of the sea turtles in the photograms. The black line squares are close ups of each sea turtle.
Tabla 4 Cantidad de tortugas observadas según su largo recto máximo del caparazón (LRCmax) por medio de video aéreo y video submarino, así como el consumo de T. testudinum en la laguna arrecifal del Parque Nacional Cahuita, Limón, Costa Rica. NA = No aplica. / Table 4. Number of turtles seen according to their maximum carapace length (LRCmax) by aerial and underwater video and T. testudinum consumption rate in the reef lagoon at Cahuita National Park, Limón, Costa Rica. NA = Does not apply.
| LRCmax (cm) | Video aéreo | Video submarino | Consumo (cm2/min) |
| 20-30 | 1 | 0 | NA |
| 30-40 | 3 | 1 | 183 |
| 40-50 | 5 | 1 | 77 |
| 50-60 | 6 | 2 | 53 |
| 60-70 | 0 | 5 | 37 |
| 70-80 | 0 | 2 | 75 |
Tabla 5 Cantidad y densidad de tortugas observadas en los videotransectos, así como la profundad de la columna de agua y cobertura promedio de pasto marino dentro en los videotransectos, en el Parque Nacional Cahuita, Limón, Costa Rica. Referirse a la Fig. 1 para ubicación de los transectos. (-) ninguna. / Table 5. Sea turtle quantity and density in videotransects, along with water column depth and mean seagrass cover in the video transects at Cahuita National Park, Limón, Costa Rica. For transect location refer to Fig. 1. (-) none.
| Transecto | Área (ha) | Profundidad promedio (m) | Cobertura promedio (%) | Tortugas observadas | Densidad (tortugas/ha) |
| P. Cahuita A | 3.7 | 1.1 | 0.8 | 4 | 1.1 |
| P. Cahuita B | 2.6 | 1.0 | 3.7 | 1 | 0.4 |
| Perezoso A | 2.3 | 2.5 | 0.3 | 4 | 1.7 |
| Perezoso B | 3.2 | 1.8 | 1.2 | 1 | 0.3 |
| Perezoso C | 3.0 | 1.3 | < 0.1 | 1 | 0.3 |
| P. Vargas A | 2.2 | 2.6 | - | 1 | 0.5 |
| P. Vargas B | 2.2 | 1.7 | - | - | - |
Tasa de herbivoría del pasto marino por la tortuga verde: La tasa de herbivoría por la tortuga verde se estimó en 1.5 ± 1.0 cm2/s. En los 2 140 minutos de grabación que se recopilaron, se registraron 13 tortugas, todas identificadas como C. mydas. De las 13 cuadrículas con pasto marino colocadas, en 12 se observó que el pasto fue consumido por algún herbívoro. En nueve de las cuadrículas, se confirmó con videos que la herbivoría fue realizada por tortugas de la especie C. mydas. El área foliar fotosintética inicial dentro de las cuadrículas varió entre 162-375 cm2. En las cuadrículas donde hubo herbivoría, se removió entre un 64-99 % del área foliar fotosintética (Fig. 6). Las tallas de las tortugas grabadas variaron entre 30-40 cm y entre 70-80 cm (Tabla 4), y la mayoría pudieron ser identificadas a nivel individual. Once de las tortugas fueron observadas solo en un video, mientras que una de las tortugas fue observada en cuatro videos de tres días distintos, consumiendo pasto en cada ocasión. Otra tortuga fue observada en dos videos de días distintos, pero consumió pasto solo en uno de ellos. De las 13 tortugas, nueve fueron observadas consumiendo pasto de la cuadrícula o fuera de esta, mientras que cuatro tortugas fueron observadas nadando sin alimentarse. El tiempo que transcurrió desde el inicio de la grabación hasta que una tortuga comenzó a alimentarse de pasto en la cuadrícula varió entre 24-201 min, con un promedio de 91 ± 57 min. El tiempo que las tortugas permanecieron consumiendo el pasto de la cuadrícula varió entre 67-288 s, con un promedio de 174 ± 82 s. Algunas tortugas interrumpían su consumo para ascender a la superficie a respirar y luego continuaban alimentándose; otras se detenían, nadaban alrededor de la cuadrícula, y reanudaban su alimentación en la misma o en áreas adyacentes. Las tortugas que consumieron el pasto de la cuadrícula llegaron a esta ya sea forrajeando o se detenían al pasar nadando. Se observó que algunas tortugas pasaron nadando sobre la cuadrícula, sin detenerse a alimentarse.
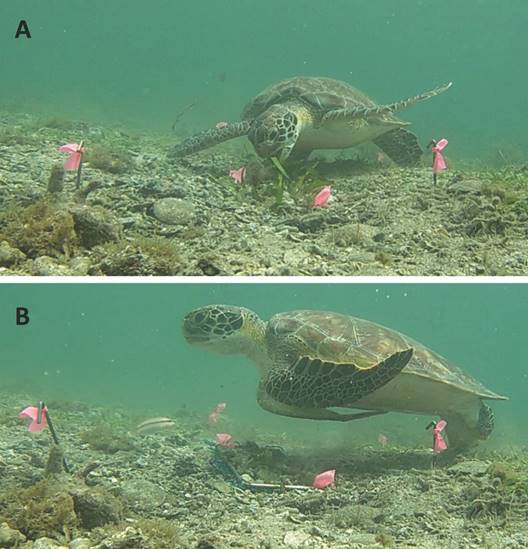
Fig. 6 Fotografías tomadas de tortuga verde bajo agua en el Parque Nacional Cahuita, Limón, Costa Rica. Las fotografías enseñan la misma cuadrícula experimental A. al inicio de un evento de herbivoría y B. unos 7.5 min después, finalizando dicho evento. Puede apreciarse el cambio en la cantidad de hojas, las cuales fueron consumidas casi en su totalidad. Además, la cuadrícula fue desenterrada por la tortuga al morder y tirar de la cinta de marcaje. / Fig. 6. Photographs taken of green turtle underwater at Cahuita National Park, Limón, Costa Rica. Photographs show the same experimental quadrat A. at the beginning of a grazing event and B. about 7.5 min later, ending the event. The change in the number of leaves can be noted as they were almost completely consumed. Furthermore, the quadrat was dug up by the sea turtle when biting and pulling at the marking tape.
Discusión
Este estudio proporciona por primera vez evidencia experimental del consumo directo de pastos marinos y la tasa de herbivoría por la tortuga verde (C. mydas) en el Parque Nacional Cahuita (PNC). Como era esperado, el pasto marino fue más abundante entre más somero, donde la poca profundidad se considera como un factor que limita el acceso para las tortugas. Igualmente, se encontró que el carbono orgánico en el sedimento incrementó levemente con mayor cantidad de pasto marino. El carbono orgánico en el sedimento en este estudio fue similar al reportado para el PNC mientras que el porcentaje de carbonato mostró mayor variabilidad (Samper-Villarreal et al., 2022), ambos en los rangos reportados a nivel global (Fourqurean et al., 2012; Mazarrasa et al., 2015). En el PNC el monitoreo a largo plazo de las praderas de pastos marinos desde 1999 ha evidenciado una disminución drástica en la complejidad estructural del dosel de los pastos marinos (Cortés et al., 2010; Fonseca et al., 2007; Loría-Naranjo et al., 2018; Nielsen-Muñoz & Cortés, 2008; van Tussenbroek et al., 2014). Estos cambios no han sido explicados por un deterioro en la calidad de agua en el sitio (Samper-Villarreal et al., 2021); sino más bien, por herbivoría excesiva por parte de megaherbívoros no identificados (Samper-Villarreal et al., 2022). En el presente estudio se identifica claramente el consumo de pastos marinos por la tortuga verde como un factor sobre la complejidad estructural del dosel de las praderas marinas del PNC. A su vez, estudios previos sobre los pastos en el PNC se han enfocado en áreas muy puntuales (e.g. Cortés et al., 2010; Nielsen-Muñoz & Cortés, 2008; Paynter et al., 2001; Samper-Villarreal et al., 2008; Samper-Villarreal et al., 2020; Samper-Villarreal et al., 2022). En contraste, este es el primer estudio que brinda información sobre la variación espacial en la estructura de los pastos marinos dentro de la laguna arrecifal del PNC y en dos años distintos.
Los hallazgos de este estudio coinciden con otros ejemplos de exceso de herbivoría por tortugas sobre pastos marinos. Debido al éxito en las iniciativas de conservación de estos megaherbívoros, el exceso de herbivoría por tortugas marinas se ha identificado como un factor clave en la degradación de praderas (Christianen et al., 2014; Christianen et al., 2021; Fourqurean et al., 2019). El incremento marcado en la intensidad de herbivoría por parte de tortugas que no sea compensado adecuadamente por producción de hojas de los pastos marinos puede ocasionar el recambio a especies pioneras y llevar a que las tortugas no solo consuman las hojas de los pastos, sino que escarben el sedimento para consumir sus rizomas (Christianen et al., 2014; Christianen et al., 2021; Scott et al., 2018). A su vez, también se ha evidenciado que incrementos en herbivoría por tortugas verdes pueden estimular el recambio de tejido en pastos marinos en las Islas Vírgenes en el Caribe (Gulick et al., 2020). La simulación de herbivoría de tejido sobre el sustrato de T. testudinum durante 16 meses en las Bahamas también llevó a una reducción del 60 % en la abundancia de la comunidad de fauna intersticial más no a nivel de diversidad de especies (Johnson et al., 2020). En el Gran Caribe, se ha reportado la degradación de praderas por impactos antropogénicos en algunos sitios mientras que en otros se han mantenido estables (van Tussenbroek et al., 2014). La zona de anidamiento más grande de tortuga verde en el Atlántico se encuentra en Tortuguero, Caribe Norte de Costa Rica, donde en décadas anteriores se evidenció un patrón de incremento sostenido de eclosión de la tortuga verde, con algunos períodos de estabilidad o leve decline; sin embargo, entre 2000 y 2008 la tendencia cambió hacia una disminución en la eclosión de tortugas (Bjorndal et al., 1999; Restrepo et al., 2023). Adicionalmente, se conoce que las tortugas pueden regular la profundidad a la que se encuentran para forrajear pastos marinos (Hays et al., 2002). A su vez, es posible que otros factores además de los considerados en este estudio también estén afectando la estructura del dosel. A nivel global, la pérdida de praderas marinas se ha relacionado con múltiples factores estresantes tanto por causas antropogénicas como naturales (Adams et al., 2020; Orth et al., 2006; Waycott et al., 2009). De tal manera, se recomienda el continuo estudio y monitoreo a nivel espacial de los pastos marinos y las tortugas verdes en el PNC.
Los videos subacuáticos demostraron que las tortugas verdes son los principales herbívoros de pasto marino durante el día en el PNC. La herbivoría podría impactar principalmente a T. testudinum, la especie dominante, sin afectar a otras especies de manera similar. Un experimento realizado por van Tussenbroek & González Morales (2017) no encontró efecto de la herbivoría sobre la capacidad de reproducción sexual de T. testudinum. Es necesario replicar experimentos de anclaje con diversas especies de pasto (no solo la dominante) y monitorear el impacto de la herbivoría a largo plazo, considerando variaciones estacionales y anuales. También, se debe cuantificar el tiempo de residencia de C. mydas en la laguna arrecifal, lo que podría hacerse mediante telemetría acústica o satelital; donde se espera un tiempo de residencia corto en ambientes con recursos limitados, como ocurre en Bermuda en una pradera forrajeada excesivamente (Meylan et al., 2022). Aunque no se encontró relación entre el tamaño de la tortuga y su tasa de consumo de pasto, esto podría deberse a un tamaño de muestra pequeño (entre 1 y 4 tortugas por categoría de tamaño). Es de esperar que conforme las tortugas crecen el pasto marino se vuelve un componente más importante de su dieta (Esteban et al., 2020). Los comportamientos observados indican que, aunque el forrajeo es la actividad principal, algunas tortugas pueden moverse a través de la pradera sin forrajear.
Estudios previos habían estimado el área total de la pradera del PNC en aproximadamente 20 ha (Samper-Villarreal et al., 2018), mientras que el presente estudio estimó un total de 60.7 ha en el muestreo más exhaustivo realizado en 2019. Sin embargo, para 2021 nuestros datos evidenciaron una disminución drástica en la extensión y cobertura de los pastos marinos, reduciéndose a un área estimada de tan solo 24.7 ha. Este cambio corresponde a una disminución del 52 % en el área de pastos marinos en el PNC entre 2019-2021. La reducción observada no solo destaca la disminución de la cobertura total, sino que resalta también la ausencia de pasto marino en uno de los tres sitios de muestreo de Paynter et al. (2001), ubicado al sur de Punta Vargas, que anteriormente se había descrito como el sitio con mayor biomasa y densidad de T. testudinum. La reducción de la cobertura de pastos marinos en el PNC observada en 2021 incluyó áreas con un mínimo de 1 % de cobertura de pastos, por lo que se puede considerar un estudio altamente inclusivo.
Este estudio identificó las cuatro especies de pastos marinos previamente reportadas en el PNC a profundidades que concuerdan con datos previos (Cortés & Salas, 2009; Samper-Villarreal et al., 2018). Es poco probable que otras especies no reportadas estén presentes dentro del área muestreada debido a la cantidad y diversidad de puntos incluidos en el estudio. Otras especies reportadas para el Caribe de Costa Rica, como Ruppia maritima y Halophila baillonii (Samper-Villarreal et al., 2018) podrían encontrarse en ambientes circundantes que no fueron muestreados. Ruppia maritima podría encontrarse en desembocaduras de ríos debido a su tolerancia a la baja salinidad (Short et al., 2010b). Halophila baillonii y H. decipiens son especies que a menudo se confunden entre sí (Creed & Samper-Villarreal, 2019). Aunque H. baillonii cuenta con un único reporte para el Caribe de Costa Rica (Dawson, 1962), este podría tratarse realmente de H. decipiens. El pasto H. baillonii se encuentra típicamente entre 1 y 3 m de profundidad. pero puede llegar hasta 15 m (Short et al., 2010a), por lo que podría estar presente en áreas más profundas y no incluidas en este estudio, como en la parte sureste de la laguna arrecifal y fuera de la barrera arrecifal en Puerto Vargas y Perezoso. La dominancia de T. testudinum es congruente con lo observado previamente para el PNC y otras áreas del Caribe (Cortés et al., 2010; Paynter et al., 2001; van Tussenbroek et al., 2010). Investigaciones previas en el PNC muestran que S. filiforme comúnmente forma parches monoespecíficos o mixtos con T. testudinum (Cortés et al., 2010; Paynter et al., 2001; Samper-Villarreal et al., 2020). Sin embargo, las especies H. wrightii y H. decipiens raramente han sido incluidas en dichos estudios, debido a que suelen habitar profundidades mayores y formar parches pequeños y dinámicos, en contraste con T. testudinum y S. filiforme (van Tussenbroek et al., 2010).
Las densidades de haces y el IAF de T. testudinum coinciden con estudios previos (Cortés et al., 2010; Fonseca et al., 2007; Loría-Naranjo et al., 2018; Paynter et al., 2001), aunque muestran mayor dispersión en los datos, posiblemente debido a la mayor distancia y por ende variabilidad entre los puntos de muestreo. La biomasa fotosintética de T. testudinum reportada anteriormente entre 68.2 ± 27.9 g/m2 a 154.2 ± 38.8 g/m2 (Paynter et al., 2001) es considerablemente superior a las encontrada en el presente trabajo de 3.8 ± 9.3 g/m2. Esta diferencia podría relacionarse con la disminución del área de las hojas, como lo señalan Loría-Naranjo et al. (2018), sin que el aumento en la cantidad de haces pueda compensar la biomasa perdida. Las densidades de haces de S. filiforme y H. wrightii son superiores en este estudio comparado con Samper-Villarreal et al. (2022), posiblemente por la limitada presencia de H. wrightii. Otro factor que puede explicar estas diferencias es que el sitio en el que se realizó el muestreo en Samper-Villarreal et al. (2022) es poco profundo y con una cobertura dominada principalmente por T. testudinum.
La discusión actual sobre el estado natural de las praderas de pasto marino sugiere que podrían haber sido ecosistemas con una menor dominancia de especies grandes; sino más bien con biomasas reducidas y una mayor abundancia de especies de rápido crecimiento (Christianen et al., 2021). Antes del siglo XVIII se estimaba que el Gran Caribe albergaba entre 33-39 millones de tortugas verdes (Jackson, 1997), mientras que las cifras actuales rondan las de 167 000 hembras en edad reproductiva (Seminoff et al., 2015). Sin embargo, es difícil entender cómo debería ser una pradera prístina debido a todos los estresores antropogénicos contemporáneos. En praderas con herbivoría por la tortuga verde, se ha documentado un crecimiento compensatorio en las hojas de pasto marino, lo que aumenta la relación productividad:biomasa (Gulick et al., 2020). Estudios a futuro podrían evaluar esa relación en el PNC. Adicionalmente, los cambios observados en la complejidad estructural de las praderas deben ser evaluados en el contexto del cambio climático; en el PNC se ha observado que la productividad de T. testudinum disminuye con el aumento de la temperatura del agua (Fonseca et al., 2007) y el aumento en la precipitación (Loría-Naranjo et al., 2018), aumentando la fotorrespiración en las plantas (Galmés et al., 2016) y la tasa metabólica de los herbívoros poiquilotermos (Cloyed et al., 2019). Además, la sobrepesca ha reducido fuertemente las poblaciones de tiburones, principales depredadores naturales de las tortugas adultas (Gallagher et al., 2022; Heithaus et al., 2014; Ward-Paige et al., 2010).
Dentro de las limitaciones del presente estudio se resalta que las tortugas observadas en los video transectos no pudieron ser identificadas a nivel de especie debido a la calidad del video. Sin embargo, la tortuga carey, que puede confundirse con la tortuga verde, suele encontrarse en áreas con alta cobertura del alga parda Sargassum, lo que reduce su visibilidad y probabilidad de encontrarse en los transectos. La densidad de tortugas fue menor que la reportada en otras praderas afectadas por herbivoría de tortuga verde (Christianen et al., 2014; Meylan et al., 2022). No obstante, la densidad no debe considerarse el único predictor de su impacto en los pastos marinos, ya que es importante evaluar otros estresores, factores ambientales y características de la pradera, como la riqueza de especies y especialmente su productividad.
Este estudio identifica por primera vez a la tortuga verde como el principal herbívoro del pasto marino en el PNC y mide la intensidad con la que ésta consume el pasto T. testudinum. Estudios a futuro podrán aportar a un mejor entendimiento de la dinámica de esta pradera al determinar la productividad total de biomasa de pastos marinos y relacionarla con el consumo por herbivoría, así como con factores ambientales. Se recomienda iniciar un programa de monitoreo que estime el tamaño de la pradera y características estructurales de ésta, así como la abundancia de tortuga verde. Con el fin de evitar el colapso de la pradera y mantener los servicios ecosistémicos que esta ofrece conviene implementar un programa de restauración ecológica en puntos donde se ha perdido la cobertura del pasto marino. Además, esta investigación enfatiza que la recuperación y conservación de las praderas de pasto marino en el PNC requieren una comprensión integral de las complejas interacciones ecológicas, así como un monitoreo continuo de la herbivoría y el impacto de las actividades humanas, en especial en el contexto del cambio climático. La necesidad de un enfoque holístico es vital para asegurar la salud y sostenibilidad de estos ecosistemas cruciales. La fuerte disminución del área de pasto marino observada durante este trabajo no solo reafirma los cambios en la estructura de la pradera reportados a través de distintos estudios, sino que además da una clara noción de la magnitud y rapidez con la que ocurren estos cambios.
Declaración de ética: los autores declaran que todos están de acuerdo con esta publicación y que han hecho aportes que justifican su autoría; que no hay conflicto de interés de ningún tipo; y que han cumplido con todos los requisitos y procedimientos éticos y legales pertinentes. Todas las fuentes de financiamiento se detallan plena y claramente en la sección de agradecimientos. El respectivo documento legal firmado se encuentra en los archivos de la revista.

