




 Espanhol (pdf)
 Artigo em XML
 Referências do artigo

 Tradução automática
 Enviar este artigo por email
 Citado por SciELO
 Similares em
SciELO
 uBio

 Permalink


Introducción
La familia Anemiaceae es considerada uno de los grupos basales dentro de los helechos leptosporangiados (Polypodiopsida), formando un grupo monofilético junto con Lygodiaceae y Schizaeaceae claramente definidos por análisis moleculares y morfológicos (Labiak et al., 2015; Pteridophyte Phylogeny Group I, 2016; Smith & Kessler, 2017). En la actualidad, estos mismos autores consideran a la familia monotípica con un solo género Anemia Sw. conformado por 115 especies: 98 Neotropicales, 16 entre África y Madagascar y una especie de la India. Esta riqueza de especies se encuentra distribuida en tres subgéneros: el subgénero Anemia, el subgénero Anemiorhiza y el subgénero Mohria (Smith & Kessler, 2017). La gran mayoría de las especies en el neotrópico se concentran en Brasil (70 especies) y México (20 especies) (Labiak et al., 2015; Mickel & Smith, 2004; Smith & Kessler, 2017), seguido por Colombia (14 especies) (Murillo-Aldana & Murillo, 2017; Murillo-Pulido & Murillo, 2004). La delimitación taxonómica y sistemática de las especies dentro Anemiaceae se dificulta por la hibridación y la poliploidía que son frecuentes en la familia (Mickel, 1982; Mickel & Smith, 2004; Smith & Kessler, 2017).
Morfológicamente, la familia Anemiaceae se caracteriza por sus frondas hemidimórficas (solo algunas especies con frondas holomórficas), leptosporangios con un anillo subapical y esporas triletes, tetraédricas o globosas con muros usualmente paralelos, lisos, equinados o baculados (Labiak et al., 2015; Smith & Kessler, 2017). En particular, Anemia hirsuta (L.) Sw. se distingue por sus frondas hemidimórficas con segmentos de venación libre y márgenes aserrados (Murillo-Pulido & Murillo, 2004; Smith & Kessler, 2017).
A pesar de que los helechos leptosporangiados son considerablemente más diversos con respecto a los grupos eusporangiados (Pteridophyte Phylogeny Group I, 2016; Sessa, 2018), los estudios detallados sobre la esporogénesis y ontogenia de los leptosporangios son escasos (Rincón-Barón et al., 2019; Rincón-Barón et al., 2020; Triana-Moreno, 2012; Wilson, 1999; Yang et al., 2022). Se han hecho avances en el entendimiento de la morfo-anatomía de los esporofitos de Anemia (Albornoz et al., 2021; Hernandez-Hernandez et al., 2012), así como en la biología reproductiva, en especial con el desarrollo de los gametofitos (Chambi & Martínez, 2020; Nester & Schedlbauer, 1981) y los detalles morfológicos y ultraestructurales de las esporas (Dettmann & Clifford, 1991; Ramos-Giacosa et al., 2012; Hill, 1979; Labiak et al., 2015; Ramos-Giacosa, 2014; Ramos-Giacosa et al., 2012; Tryon & Lugardon, 1991; Tryon & Tryon, 1982) y de la tolerancia al estrés hídrico (Nadal et al., 2021). En contraste, los mecanismos ontogénicos relacionados con la esporogénesis en el género Anemia no han sido descritos en detalle. En este trabajo se presenta una descripción pormenorizada del proceso de esporogénesis en la especie A. hirsuta y se incluyen aspectos relacionados con el desarrollo y diferenciación de la cápsula del leptosporangio, formación y función del tapete, estratificación y ultraestructura del esporodermo; así como, la estructura y composición de las micro-ornamentaciones equinadas presentes en los muros y asociadas al perisporio de las esporas maduras.
Materiales y métodos
Material vegetal objeto de estudio: Durante los meses marzo y abril de 2021 se obtuvieron ejemplares fértiles de A. hirsuta en un vivero local. El material de referencia (Rincón 027) se depositó en el Herbario de la Universidad de Antioquia (HUA), Medellín, Colombia. Los ejemplares fueron identificados usando claves taxonómicas proporcionadas por Murillo-Pulido & Murillo (2004), Mickel (2016) y Smith y Kessler (2017). Los ejemplares de A. hirsuta analizados presentan hojas hemidimórficas con dos pinnas basales modificadas que llevan los leptosporangios agrupados en estructuras panniculiformes y con lamina foliar fuertemente reducida (Fig. 1A).
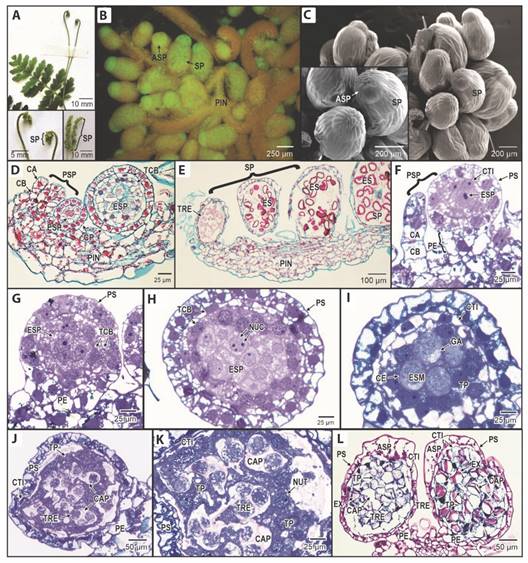
Fig. 1 Anemia hirsuta: Morfología y ontogenia de los leptosporangios. A. Planta fértil. Frondas hemidimórficas sosteniendo agrupaciones de leptosporangios. B-C. Leptosporangios maduros en las pinnas modificadas (Filtro ultravioleta y MEB, respectivamente). C. Se destaca los anillos de los leptosporangios. D-L. Ontogenia de los leptosporangios. D-E. Los leptosporangios presentan maduración asincrónica (safranina/azul de alcian). D-F. Se aprecian la célula basal y apical de origen epidérmico que formarán los primordios de los leptosporangios (safranina/azul de alcian y azul de toluidina, respectivamente). F-G. Primordios de los leptosporangios (azul de toluidina). H. Diferenciación del tapete celular biestratificado y la cápsula del leptosporangio (azul de toluidina). I-K. Diferenciación del tapete plasmodial (azul de toluidina). J-K. Se observa la formación de las cámaras plasmodiales al final de la meiosis. K-L. Tétradas de esporas en desarrollo dentro de cámaras plasmodiales. K. Las tétradas de esporas no han desarrollado el exosporio (azul de toluidina). L. Se aprecia un exosporio incipiente que engrosa a medida que maduran las tétradas de esporas (PAS-amidoblack). ASP: anillo del leptosporangio; CA: célula apical; CAP: cámaras plasmodiales; CB: célula basal; CE: cubierta del esporocito; CP: cápsula del leptosporangio; CTI: células tapetales iniciales; ES: esporas; ESP: esporocitos premeióticos; ESM: esporocitos meióticos; EX: exosporio; GA: gránulos de almidón; NU: núcleo; NUC: nucléolo; NUT: núcleos del tapete plasmodial; PE: pedicelo del leptosporangio; PIN: pinna; PS: pared del leptosporangio; PSP: primordios de los leptosporangios; SP: Leptosporangios; TCB: tapete celular biestratificado; TP: tapete plasmodial; TRE: tétradas de esporas. / Fig. 1. Anemia hirsute. Morphology and ontogeny of Leptosporangia. A. Fertile plant. Hemidimorphic fronds can be seen supporting clusters of leptosporangia. B-C. Mature leptosporangia in modified pinnae (ultraviolet filter and SEM, respectively). C. Leptosporangia rings stand out. D-L. Leptosporangia ontogeny. D-E. Leptosporangia exhibit asynchronous maturation (safranin/alcian blue). D-F. The basal and apical cells of epidermal origin that will form the primordia of the leptosporangio are appreciated (safranin/alcian and toluidine blue, respectively). F-G. Leptosporangial primordia (toluidine blue). H. Differentiation of the bi-stratified cellular tapetum and the leptosporangium capsule (toluidine blue). I-K. Differentiation of the plasmodial tapetum (Toluidine Blue). J-K. The formation of plasmodial chambers can be seen after meiosis. K-L. Spore tetrads developing within plasmodial chambers. K. Spore tetrads have not yet developed the exospore (toluidine blue). L. An incipient exosporium is seen that thickens as the spore tetrads mature (PAS-amidoblack). ASP: leptosporangia ring; CA: apical cell; CAP: plasmodial chambers; CB: basal cell; CE: sporocyte coat; CP: leptosporangium capsule; CTI: initial tapetal cells; ESP: premeiotic sporocytes; ESM: meiotic sporocytes; EX: exospore; GA: starch granules; NU: nucleus; NUC: nucleolus; NUT: plasmodial tapetum nuclei; PE: leptosporangium pedicel; PIN: pinna; PS: leptosporangium wall; PSP: primordia of leptosporangia; SP: leptosporangia; TCB: bistratified cellular tapetum; TP: plasmodial tapetum; TRE: spores tetrad.
Procesamiento histológico y descripción de material vegetal mediante microscopía fotónica: Para los estudios sobre la ontogenia de los leptosporangios se tomaron 30 frondas fértiles con estructuras reproductivas en diferentes etapas de maduración. Este material se fijó en una mezcla de formol, etanol y ácido acético (FAA) por 24-48 horas a 6 °C, se tomaron fragmentos de 1 cm2 de longitud, se deshidrataron en la serie gradual de alcoholes y aclaramiento en HistoChoice® Clearing Agent (Ruzin, 1999) y finalmente se incluyeron en Paraplast plus (Mc Cormick®) durante 12 horas a 55 °C. Se obtuvieron secciones transversales con micrótomo rotatorio MicroTec®, entre 5-7 μm de grosor. Las secciones obtenidas se tiñeron con safranina-azul de alcian y azul de toluidina para realizar descripciones de tejidos con paredes primarias y secundarias, además de resaltar la presencia de cutina, lignina y esporopolenina (Rincón-Barón et al., 2019; Rincón-Barón et al., 2020; Ruzin, 1999) y también con PAS/amidoblack para más detalles morfológicos relacionados con polisacáridos (Soukup, 2014).Muestras adicionales de las frondas fértiles fueron fijadas en Glutaraldehído al 2.5 % en buffer fosfato 0.2 M (pH 7.2) durante 24-48 horas a 6 °C. Luego de la fijación, las muestras se lavaron en el mismo buffer, seguido de agua destilada para posteriormente postfijarlas con tetróxido de osmio al 2 % por 2 horas a 6 °C en oscuridad y agitación ocasional. Finalmente, las muestras se deshidrataron por dos horas en cada paso en una batería de etanol en grado ascendente (30, 50, 70, 80, 90, 95 %) y dos cambios en etanol al 100 % por 12 horas. Posteriormente, las muestras se embebieron a 4 °C en mezclas progresivas de óxido de propileno-resina Spurr, durante dos días. Se hicieron varios cambios de resina pura durante 48 horas en agitación constante. La resina fue polimerizada a 60 °C por 48 horas. Se obtuvieron secciones de 0.5-0.7 μm de grosor con cuchillas de vidrio en un ultramicrótomo Leica Ultracut UCT®; las cuales se tiñeron con azul de toluidina (TBO) en bórax al 1 % (pH 3.6) por 30-60 segundos. Para más datos morfológicos y estructurales, muestras procesadas en parafina y teñidas con safranina azul de alcian se examinaron empleando el filtro de triple banda de excitación DAPI-FITC-Texas RED, el cual incorpora un filtro de excitación con ventanas de paso de banda angostas en las regiones espectrales violeta (395-410 nm), azul (490-505 nm) y verde (560-580 nm). Todas las secciones obtenidas se examinaron con un microscopio fotónico Nikon eclipse Ni equipado con el sistema de contraste diferencial de interferencia (CDI). Las fotografías se obtuvieron con cámara digital Nikon DS-Fi1® utilizando el programa de manejo de imágenes NIS Elements, versión 4.30.02 (Nikon Instruments Inc.).
Procesamiento y descripción de material vegetal mediante microscopía electrónica de barrido y transmisión: Para la descripción ultraestructural de la pared de las esporas maduras se obtuvieron secciones ultrafinas 80 a 70 nm de grosor con cuchilla de diamante, empleando las muestras procesadas y embebidas en resina como se indicó anteriormente. Estas secciones se contrastaron con acetato de uranilo y citrato de plomo durante 10 min y 5 min, respectivamente y se examinaron con un microscopio electrónico de transmisión JEOL JEM 1200 EX. Para llevar a cabo las descripciones morfológicas de los leptosporangios y esporas maduras con microscopía electrónica de barrido (MEB), las muestras se fijaron en glutaraldehído al 4 % en buffer fosfato durante 24 horas, se lavó el exceso de fijador y se procedió a posfijar con tetraoxido de osmio al 1 % por 4 horas a 6 °C. Las muestras se deshidrataron en dos cambios en 2.2 dimetoxipropano acidificado por 4 y 12 horas, respectivamente (Lin et al., 1977) y se procedió a dos cambios en etanol al 100 % por 2 y 24 horas. Finalmente, las muestras se pasaron a una mezcla 1:1 hexametildisilazano (HMDS)-etanol al 100 % durante 12 horas y luego en HMDS puro durante este mismo tiempo (Bhattacharya et al., 2020; Rincón-Barón et al., 2024). Posteriormente se permitió que el HMDS se evaporara en desecador de vidrio. Las muestras se montaron sobre cinta conductiva de carbono de doble cara y se recubrieron con oro utilizando un cobertor iónico Quorum SC7620 durante 10 minutos. Las observaciones y registro fotográfico, así como el microanálisis por dispersión de energías de Rayos-X (XEDS) de las microespinas presentes en el perisporio de las esporas, se realizaron en un microscopio electrónico de barrido FEG (Field Emission Gun) QUANTA FEG 650. Para las descripciones en general se utilizaron los términos sensuLellinger (2002).
Resultados
Los leptosporangios se ubican en las pinnas reducidas formando dos hileras; son globosos y presentan un característico anillo subapical (Fig. 1B, Fig. 1C). En estas pinnas, es posible encontrar leptosporangios en diferentes momentos de maduración, es decir, la maduración es mixta o asincrónica (Fig. 1D, Fig. 1E). Sin embargo, cuando la pinna fértil llega a su máximo momento de desarrollo, todos los leptosporangios han madurado y la actividad meristemática que los forma se detiene por completo (Fig. 1A).
La diferenciación de los leptosporangios en el tejido foliar de las pinnas modificadas se produce a partir de una sola célula epidérmica; la cual se divide por plano oblicuo dando origen a la célula basal y la apical (Fig. 1D, Fig. 1F). Una vez que se han diferenciado la célula basal y la apical, éstas experimentan divisiones mitóticas sucesivas en varios planos, para formar los primordios de los leptosporangios que se caracterizan por presentar una estructura corta que corresponde al pedicelo y una porción expandida terminal globosa que corresponde a la cápsula incipiente del leptosporangio (Fig. 1F).
Con el desarrollo de los primordios de los leptosporangios, se forman los esporocitos premeióticos que se dividen para formar una capa de células parietales de contorno rectangular que se diferenciarán en las células tapetales iniciales (Fig. 1F). Posteriormente, estas células se dividen en un plano periclinal para formar el tapete celular biestratificado que rodea a los esporocitos premeióticos (Fig. 1G). Con el avance en el desarrollo de los leptosporangios, los esporocitos premeióticos se dividen activamente por mitosis aumentando en número (Fig. 1H). Para esta etapa del desarrollo, la capa más externa del tapete presenta contorno rectangular aplanado con aspecto vacuolado, en tanto que la capa del tapete celular próxima a los esporocitos premeióticos, es de contorno cuadrangular con un núcleo en posición central, por lo general con un nucléolo y citoplasma de aspecto granular (Fig. 1H). Los esporocitos premeióticos también presentan contorno cuadrangular y núcleo central y estos pueden tener hasta tres nucléolos y el citoplasma fuertemente granular (Fig. 1H). Así mismo, la pared del leptosporangio está constituida por una capa uniestratificada de células epidérmicas cuadrangulares con una sola vacuola que ocupa la mayor parte del citoplasma y un núcleo voluminoso con varios nucléolos (Fig. 1H).
Con el crecimiento y desarrollo del leptosporangio, la capa más interna del tapete celular va perdiendo su integridad y se transforma en un tapete plasmodial, que invade progresivamente a los esporocitos premeióticos, rodeándolos hasta aislarlos por completo y estimulándolos para entrar en meiosis. Esta actividad se refleja en el cambio de aspecto de los esporocitos, que se tornan de contorno globoso, con una gruesa cubierta, un núcleo altamente eucromático, sin nucléolos y el citoplasma de aspecto granular con abundantes gránulos de almidón (Fig. 1I). Además, se pudo apreciar que la capa más externa del tapete celular, las células tapetales iniciales, persiste hasta este momento y hasta la liberación de las esporas.
Una vez que el tapete plasmodial rodea a los esporocitos por completo, estos experimentan meiosis de tipo simultánea formando tétradas de esporas en disposición tetraédrica (Fig. 1J, Fig. 1K); para este momento del desarrollo, el tapete plasmodial rodea por completo a las tétradas que se encuentra incluidas en cámaras plasmodiales. Estas cámaras se aprecian como estructuras translúcidas poco teñidas que rodean a las tétradas de esporas y limitan con el tapete plasmodial. Así mismo, el tapete plasmodial se aprecia como un sincitio funcional de aspecto denso y granular (Fig. 1K). Las tétradas de esporas inicialmente se encuentran juntas en la misma cámara plasmodial, donde continúan su desarrollo y allí se deposita el exosporio que se aprecia como una capa delgada fucsia claro al teñir con safranina (Fig. 1L) y este se va engrosando progresivamente tornándose de un color fucsia oscuro (Fig. 1L).
En contraste, al teñir con azul de toluidina, el exosporio se torna de un color azul turquesa brillante (Fig. 2A). El engrosamiento progresivo del exosporio termina con la formación del patrón de microornamentación muriforme, constituido por muros paralelos característico de las esporas (Fig. 2B, Fig. 2C). Finalmente, se deposita el endosporio que corresponde a una capa muy fina que delimita con el citoplasma de las esporas y con el exosporio (Fig. 2 C). Junto con este proceso de desarrollo, las células en la región apical del leptosporangio se diferencian aumentando de tamaño y desarrollando engrosamientos lignificados sectorizados en forma de “U” diferenciándose el anillo del leptosporangio (Fig. 2C).
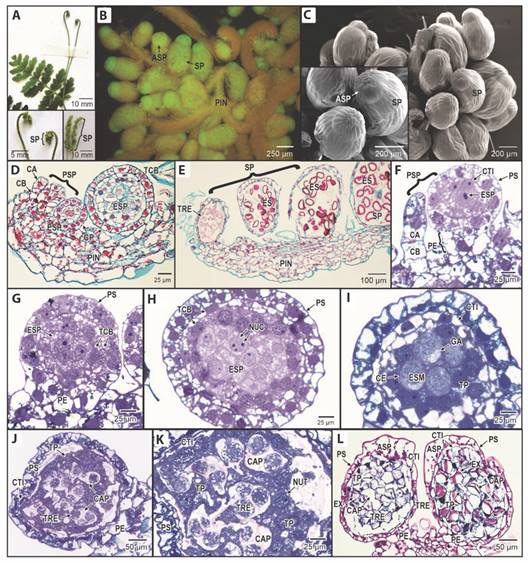
Fig. 2 Tétradas de esporas, anillo del leptosporangio y esporas maduras de Anemia hirsuta A-C. Maduración de las tétradas de esporas, depósito del esporodermo y tapete plasmodial. En el detalle en C, anillo del leptosporangio completamente diferenciado. A-B. Azul de toluidina. C. PAS-amidoblack. D-E. Leptosporangios y esporas maduras excitadas con luz ultravioleta (Filtro UV, material vegetal fresco). D. Cavidad del leptosporangio con varias esporas (Filtro DAPI-FITC-Texas, safranina/azul de alcian). E. Se evidencia la autofluorescencia del anillo del leptosporangio y de las esporas maduras al ser excitadas con luz ultravioleta (Filtro UV, material vegetal fresco). F-I. Detalles micromorfológicos de las esporas (MEB). F. Vista polar distal. G. Vista polar proximal. H. Vista ecuatorial. I. Patrón de microornamentación muriforme con surcos lisos y presencia de microespinas ramificadas o no, en los muros. J. Microanálisis por dispersión de energías de Rayos-X (MEB-XEDS) de las microespinas presentes en los muros de las esporas. Se destaca un alto contenido de sílice (flecha y resaltado en amarillo). K-L. Detalles ultraestructurales del esporodermo (MET). K. Región de los surcos. Se observa un endosporio delgado, un exosporio de dos capas: uno interno y otro externo grueso. El exosporio interno se observa como una capa delgada electrodensa que limita con el endosporio. El perisporio está formado por dos estratos: uno interno denso con pocas escamas electrolúcidas (asterisco) y otro externo de aspecto microgranular (doble asterisco). L. Se aprecia la región de los muros, que se diferencia ultraestructuralmente de la zona de los surcos, con un exosporio externo grueso (en la imagen no se muestra el exosporio interno). El perisporio interno está conformado por tres estratos: uno denso (flecha) en contacto íntimo con el exosporio externo, un estrato medio formado por tres a cuatro capas de escamas (asterisco) y un estrato externo también denso (doble asterisco). En el perisporio externo se aprecian dos estratos: uno grueso de aspecto microgranular (estrella) y otro delgado denso (doble estrella). ASP: anillo de los leptosporangios; CAP: cámaras plasmodiales; CIT: citoplasma de las esporas; CTI: células tapetales iniciales; EN: endosporio; ES: esporas; ESC: escamas; EX: exosporio; EXE: exosporio externo EXI: exosporio interno; LE: lesura trilete; MER: microespinas ramificadas; MES: microespinas; MU: muros; MUA: muros anastomosado; MUC: muro central; PER: perisporio; PS: pared del leptosporangio; SP: leptosporangios; SU: surcos; TP: tapete plasmodial; TRE: tétradas de esporas; ZT: zona triangular. / Fig. 2. Spore tetrads, leptosporangium ring, and mature spores of Anemia hirsuta. A-C. Maturation of spore tetrads, deposition of sporoderm and plasmodial tapetum. In detail C, the fully differentiated leptosporangium ring can be appreciated. A-B. Toluidine blue. C. PAS-amidoblack. D-E. Leptosporangia and mature spores. D. Cavity of the leptosporangium, including several spores (DAPI-FITC-Texas filter, safranin/alcian blue). E. Autofluorescence of the leptosporangium ring and mature spores is visible when they are excited with ultraviolet light (UV filter, fresh plant material). F-I. Micromorphological details of the spores (SEM). F. Distal polar view. G. Proximal polar view. H. Equatorial view. I. Muriform microornamentation pattern, with smooth grooves and branched or non-branched microspines in the muri. J. Energy-dispersive X-ray microanalysis (SEM-XEDS) of the microspines present in the muri. A high silica content stands out (arrow and highlighted in yellow). K-L. Ultrastructural details of the sporoderm (TEM). K. In the grooves, a thin endospore is observed, as well as an exospore of two layers: an internal one and a thick external one. Internal exospore appears as a thin, electron-dense layer surrounding the endospore. The perispore is formed of two strata: a dense internal one with few electro-lucent scales (asterisk) and an external one with a microgranular appearance (double asterisk). L. The murus region can be observed, which is ultrastructurally differentiated from the groove area by a thick external exospore (the internal exospore is not shown in the image). The internal perispore is constituted by three strata: a dense one (arrow) in close contact with the external exospore, a middle stratum formed by three to four strata of scales (asterisk), and an external stratum that is also dense (double asterisk). In the external perispore, two strata can be seen: a thick one with a microgranular appearance (star) and a thin, dense one (double star). ASP: leptosporangial ring; CAP: plasmodial chambers; CIT: spore cytoplasm; CTI: initial tapetal cells; EN: endospore; ES: spores; ESC: scales; EX: exospore; EXE: external exospore; EXI: internal exospore; LE: trilete lesure; MER: branched microspines; MES: microspines; MU: muri; MUA: anastomosig muri; MUC: central murus; PER: perispore; PS: wall of the leptosporangium; SP: leptosporangia; SU: grooves; TP: plasmodial tapetum; TRE: spore tetrads; ZT: triangular zone.
Con la maduración y diferenciación de las esporas, estas se ubican en cámaras plasmodiales individuales (Fig. 2B, Fig. 2C). Para el momento de la liberación de las esporas, el tapete plasmodial experimenta autolisis hasta desaparecer, dejando a las esporas maduras libres en la cavidad del leptosporangio (Fig. 2D). Las células del anillo del leptosporangio emiten autofluorescencia amarilla-naranja demostrando la presencia de lignina (Fig. 2E), en tanto que las esporas maduras en fresco al ser iluminadas con luz ultravioleta presentan autofluorescencia amarillo-verdoso debido a la presencia de esporopolenina. Estas esporas son tetraédricas, con simetría radial, heteropolares, ámbito triangular a subtriangular en vista polar distal, se establece una zona con diferentes formas, siendo la triangular, pequeña, la más frecuente (Fig. 2F). La lesura trilete abarca la totalidad de la cara polar proximal y concluye en el ángulo de la espora (Fig. 2G). El diámetro ecuatorial en vista ecuatorial (VE) mide 105-100 µm y el diámetro polar (en VE) 75-54 µm y el diámetro ecuatorial (en vista polar) es de 90-40 µm. En vista ecuatorial la forma de la espora es semi-esferoidal, con la cara proximal recta y la distal convexa (Fig. 2H). La ornamentación es positiva, es decir, con elementos de la exina elevados sobre la superficie, con muros delgados de 3 µm de ancho por 3.4 µm de alto y surcos más anchos de 8.5 µm, que se disponen en formaciones paralelas a cada lado del triángulo central formado por la lesura (Fig. 2G) y estos muros se unen en la zona ecuatorial formando una línea continua que culmina en la lesura (Fig. 2H). Los muros presentan microespinas bajas con ápices agudos o truncados, la mayoría de los procesos están bifurcados o ramificados y se ubican en forma variable, miden entre 2 y 2.8 µm, algunas zonas no presentan microornamentación (Fig. 2I). Las microespinas dispuestas en los muros presentan diferencias en su tono, apareciendo blancas o de un tono más claro que el resto de la esporodermis (Fig. 2I); los análisis por dispersión de energías de Rayos-X detectaron que las microespinas contienen abundante sílic (Fig. 2J). La lesura trilete presenta procesos similares al resto de la esporodermis (Fig. 2I).
Utilizando microscopía electrónica de transmisión, en la zona de los surcos se distingue la ultraestructura de la esporodermis, formada por un exosporio homogéneo, muy desarrollado, de 1 µm de grosor, siendo el perisporio más complejo y con un espesor menor (0.3 µm), el endosporio forma una capa muy delgada (0.1 µm), uniforme (Fig. 2K). En el exosporio se aprecian dos capas; una interna que limita con el endosporio, muy delgada, más contrastada y una capa externa muy gruesa y compacta, no se observan perforaciones (Fig. 2K). En la zona de los muros, el exosporio mantiene la estructura similar a la zona de los surcos, el perisporio en cambio tiene mayor desarrollo (0.7 µm) y está formado por un perisporio interno diferenciado en tres capas (Fig. 2L). Una capa interna en contacto con el exosporio, muy delgada, fuertemente contrastada. La capa media, menos contrastada que la interna, de aspecto irregular, formada por tres o cuatro estratos de escamas y una capa externa muy delgada y contrastada (Fig. 2L). Así mimo, el perisporio externo está formado por dos capas, una gruesa microgránular, estos microgránulos se pueden apreciar unidos dando la impresión de formar cordones; la otra capa es delgada, densa y delimita el contorno de la espora (Fig. 2L).
Discusión
Algunos autores han indicado para helechos leptosporangiados que el desarrollo y maduración de los esporangios es asincrónico o mixto (Gifford & Foster, 1989; Rincón-Barón et al., 2019; Rincón-Barón et al., 2020; Triana-Moreno, 2012) lo cual es coincidente con las observaciones para A. hirsuta en esta investigación y podría tratarse de un mecanismo de adaptación a las condiciones ambientales para favorecer la viabilidad de los gametofitos, tal y como lo sugieren estas mismas investigaciones.
En A. hirsuta los procesos ontogenéticos relacionados con la formación de los primordios de los leptosporangios constituidos inicialmente por una célula apical y otra basal que posteriormente experimentan divisiones celulares en varios planos para formar el pedicelo y la cápsula del leptosporangio; además de las características citomorfológicas de los esporocitos premeióticos y de las divisiones celulares que experimenta para formar las células tapetales iniciales a medida que los leptosporangios maduran y se desarrollan, son similares a lo descrito previamente para helechos leptosporangiados (Rincón-Barón et al., 2019; Rincón-Barón et al., 2020; Triana-Moreno, 2012; Wilson, 1999; Yang et al., 2022); lo que implica que estos eventos son conservados para este grupo de plantas.
En helechos leptosporangiados, el tapete biestratificado se forma por la división de las células tapetales iniciales, lo cual determina que la pared de la cápsula del leptosporangio en esta etapa del desarrollo quede formada por tres capas celulares: la pared del leptosporangio que es uniestratificado y el tapete celular que es biestratificado (Rincón-Barón et al., 2019; Rincón-Barón et al., 2020; Parkinson, 1995; Yang et al., 2022); estas características son coincidentes con lo observado en esta investigación para A. hirsuta. Así mismo y en relación con el tapete, varios autores han descrito como la capa más interna del tapete celular biestratificado sufre autolisis perdiendo así la integridad celular, formando un tapete plasmodial que progresivamente invade a los esporocitos premeióticos; en tanto que la capa de las células tapetales iniciales se mantiene hasta la liberación de las esporas (Parkinson, 1995; Rincón-Barón et al., 2019; Rincón-Barón et al., 2020; Yang et al., 2022). Estos eventos también coinciden con las observaciones registradas en esta investigación para A. hirsuta.
Los esporocitos de A. hirsuta al ser invadidos por el tapete plasmodial experimentan una diferenciación morfocitológica, tornándose de contorno globoso con una gruesa cubierta y un núcleo fuertemente eucromático, marcando el inicio de la meiosis; estos cambios en los esporocitos estimulados por el tapete plasmodial, han sido indicados en otras especies de helechos incluidos leptosporangiados y en algunos licófitos siendo considerados esenciales para el desarrollo de las esporas (Parkinson, 1987; Parkinson, 1995; Rincón-Barón et al., 2011; Rincón-Barón et al., 2013; Rincón-Barón et al., 2019; Rincón-Barón et al., 2020; Uehara & Kurita, 1991). Lo cual resalta la importancia del tapete como tejido nutricio y origen de los componentes de la esporodermis tanto de las esporas como los granos de polen (Yao et al., 2022).
Furness et al. (2002) indican que la meiosis de tipo simultánea termina con la formación de tétradas en disposición tetraédrica y se relaciona con la formación de esporas y granos de polen triletes; lo cual es coincidente con nuestras observaciones para A. hirsuta.No obstante, estas observaciones difieren con respecto a otras especies de helechos leptosporangiados que producen esporas monoletes mediante meiosis de tipo simultánea en lugar de sucesiva (Rincón-Barón et al., 2019; Rincón-Barón et al., 2020).
En helechos homospóricos como en heterospóricos, se ha demostrado que durante la ontogenia de la espordermis primero se deposita el exosporio, luego el endosporio y finalmente el perisporio, si está presente (Rincón-Barón, Rolleri, Alzate-Guarin & Dorado-Gálvez, 2014; Rincón-Barón, Rolleri, Passarelli et al., 2014; Rincón-Barón et al., 2019; Rincón-Barón et al., 2020; Wallace et. al. 2011; Tryon & Lugardon, 1991; Uehara & Kurita, 1991; Uehara et al., 1991). Estos mismos autores, indican que, para el momento de la liberación de las esporas, el tapete plasmodial se degrada dejándolas libres en la cavidad del esporangio. Las observaciones anteriores son congruentes con lo registrado en esta investigación para A. hirsuta.
Rincón-Barón, Rolleri, Passarelli et al. (2014) y Rincón-Barón et al. (2020) observaron que cuando las esporas maduras de Lycopodiaceae y Pleopeltis macrocarpa (Bory ex.Willd.) Kaulf. son excitadas con luz ultravioleta, emiten autofluorescencia amarillo-verdoso en tanto que el anillo del esporangio con estas mismas condiciones emite autofluorescencia amarillo-naranja; producto de estas observaciones, concluyeron que la autofluorescencia característica de estas estructuras se debe principalmente a la presencia de esporopolenina y lignina respectivamente. Estos mismos autores corroboraron estos hallazgos con las tinciones de safranina/azul de alcian y azul de toluidina. La safranina tiñe de color fucsia a la esporopolenina y a la lignina; en contraste, el azul de toluidina tiñe de color azul turquesa a la esporopolenina y azul claro o azul verdoso a la lignina. Las observaciones en esta investigación para A. hirsuta son congruentes con estas conclusiones y son corroboradas por análisis extensos hechos en tejidos vegetales (Roshchina, 2008; Ruzin, 1999).
Las esporas maduras del género Anemia se caracterizan por una ornamentación muriforme, con muros paralelos, que distingue a la familia Anemiaceae incluso en material fósil de sedimentos, constituyendo el grupo de esporas cicatricosas halladas desde el Jurásico superior y Cretácico inferior (Archangelsky & Archangelsky, 2010; Archangelsky et al., 2012; Labiak et al., 2015). Esta uniformidad en la ornamentación de la esporodermis, tiene patrones bien definidos de organización de los muros y surcos.
Dettman y Clifford (1991) refieren la presencia de seis tipos morfológicos diferentes basados en la ornamentación, uno reticulado en Anemia wrightii Baker, también mencionado como tipo inusual por Tryon & Tryon (1982) y el resto el típico cicatricoso con muros con diferente grado de ornamentación. Ramos-Giacosa et al. (2012), realizan una división más sencilla para las especies de Anemia de Argentina y distinguen dos tipos morfológicos bien diferenciados, uno con muros paralelos, el tipo Anemia herzogii Rosenst. que presenta muros estrechos y paralelos con báculas, separadas por surcos amplios y el tipo Anemia australis (Mickel) M. Kessler & A.R. Sm. con muros paralelos separados por surcos estrechos y suaves con ángulos prominentes y redondeados. Las esporas de A. hirsuta pertenecen al primer grupo, y según Tryon & Tryon (1982), estas esporas presentan caracteres que las distinguen de otras especies del género compartidos por Anemia oblongifolia, los muros y surcos como la forma y disposición de los procesos, y la forma general de la espora son caracteres específicos.
La presencia de sílice en A. hirsuta, evidenciada por una importante diferencia de tonalidad en las microespinas y procesos del perisporio al observarlas con MEB y complementado con los análisis XEDS constituye un aspecto nuevo, no registrado previamente. La sílice es componente común en algunos grupos de plantas y se relaciona con resistencia al estrés biótico y abiótico (Kumar et al., 2017). Específicamente en helechos se ha identificado como componente importante del cuerpo vegetativo de las plantas que refuerza las paredes celulares dando soporte mecánico y permitiendo cierto grado de resistencia a la herbivoría (Currie & Perry, 2007, Mazumdar, 2011; Sundue, 2009).
En estudios recientes, se ha indicado la importancia de la sílice en hojas de Selaginella P. Beauv. formando una estructura parecida a una lente, permitiéndole a la planta adaptarse a condiciones de poca luz, algo también descrito para esporas de resistencia de algas diatomeas (Shih et al., 2022). En las esporas de helechos eusporangiados este componente ha sido documentado en Equisetum L., Selaginella e Isoetes L. (Corrêa-Lopes & Feio, 2020; Currie & Perry, 2007, Law & Exley, 2011; Macluf et al., 2003; Macluf, Meza-Torres & Solís, 2010; Macluf, Morbelli & Giudice, 2010; Polevova & Moiseenko, 2023; Taylor, 1992; Taylor 1993; Volkov, et al., 2019), aunque los autores no indican alguna posible función.
En esporas de helechos leptosporangiados, no se ha registrado la presencia de sílice; por lo que los hallazgos de esta investigación constituyen un aspecto nuevo, no explorado sobre las esporas de este grupo de plantas. Dado que la sílice, se registra acá por primera vez en A. hirsuta, específicamente en las microespinas relacionadas con el perisporio y aunque no se conoce bien su función, este elemento podría estar relacionado con mecanismos de protección al estrés biótico y/o abiótico (Currie & Perry, 2007) que les da resistencia hasta el tiempo de germinación. En relación con lo anterior y teniendo en cuenta que el mecanismo de dispersión de las esporas más conocido o más frecuente en helechos leptosporangiados, se relaciona con el disparo de estas a manera de catapulta, dada las características biomecánicas del anillo del leptosporangio (Llorens, et al., 2016); poco se conoce sobre el efecto de la microornamentación de las esporas y su relación con la dispersión. En este sentido Dias y Branco (2023), analizaron, entre otros, la relación de las microespinas presentes en las esporas Trichomanes speciosum Willd. y la posible dispersión de estas adheridas a las plumas de las aves. No obstante, y en concordancia con estos autores, consideramos que esta hipótesis que relaciona microornamentación de las esporas versus dispersión, necesita de más investigación para poder ser validada. También recientemente, Gómez-Noguez et al. (2022) indican la importancia de la microornamentación de las esporas con su aerodinámica y la facilidad de dispersión.
En cuanto a la ultraestructura observada en este trabajo, coincide con otros autores que han estudiado la esporodermis en el género Anemia, un exosporio muy ancho y denso formando los muros y un perisporio mucho más delgado, pero con diferentes formas en su estructura, con escamas microgránulos y diversidad de organización de los elementos intra-perisporio (Dettmann & Clifford, 1991; Tryon & Lugardon, 1991; Tryon & Tryon 1982). Existe una marcada diferencia de grosor y desarrollo del perisporio en la zona de los muros y de los surcos, con la presencia de tres capas que se distinguen por su electrodensidad. Aunque varios autores describen y documentan la presencia de perforaciones en el exosporio (Dettmann & Clifford, 1991), no es el caso de A. hirsuta cuyo exosporio es muy compacto. Se ha demostrado la presencia de esporas anormales en ejemplares de Anemia tomentosa (Savigny) Sw. de Argentina, estas esporas son aletes, esferoidales y con escasas diferencias a nivel de escultura, aunque en algunos casos la ornamentación puede faltar y los muros ser de menor tamaño; con la estructura de la esporodermis similar a la que se observa en esporas normales (Ramos-Giacosa, 2014); en A. hirsuta no se observó la presencia de esporas anormales.
Declaración de ética: los autores declaran que todos están de acuerdo con esta publicación y que han hecho aportes que justifican su autoría; que no hay conflicto de interés de ningún tipo; y que han cumplido con todos los requisitos y procedimientos éticos y legales pertinentes. Todas las fuentes de financiamiento se detallan plena y claramente en la sección de agradecimientos. El respectivo documento legal firmado se encuentra en los archivos de la revista.

