




 Espanhol (pdf)
 Artigo em XML
 Referências do artigo

 Tradução automática
 Enviar este artigo por email
 Citado por SciELO
 Similares em
SciELO
 uBio

 Permalink


Introducción
Los rasgos de las historias de vida son atributos numéricos y conceptuales que definen aspectos básicos de la biología de los peces y se encuentran asociados con las respuestas de las poblaciones a las condiciones ambientales (da Costa et al., 2018; Winemiller, 2005). Basados en ciertos rasgos asociados con la reproducción y el crecimiento, diversos análisis han permitido agruparlos en determinados categorías (oportunistas, equilibrio, periódicos, salmónidos, e intermedios) facilitando tanto en peces marinos y dulceacuícolas dichos atributos numéricos y su relación con el entorno abiótico (King & McFarlane, 2003; Winemiller, 1992; Winemiller & Rose, 1992). Por ejemplo, el tiempo en el que alcanzan la edad de la primera maduración es uno de los parámetros considerados en las diversas categorías de las historias de vida y que está asociado con el crecimiento (Winemiller & Rose, 1992).
La ganancia de talla en un periodo de tiempo (crecimiento somático) de los organismos es una característica variable que puede depender, entre otros, de factores, internos (pe. metabolismo y osmorregulación), externos (pe. condiciones del hábitat, oferta de alimento) (Baltz et al., 1998; Bœuf & Payan, 2001; Handayani et al., 2016; Higgins et al., 2015; Imsland et al., 2005; Parma & Deriso, 1990), y de los rasgos controlados por factores genéticos (Gallo & Jeffery, 2012). A su vez, las tasas de crecimiento en condiciones naturales o modificadas por actividades antrópicas (e.g. pesca y modificación del hábitat) podrían incluso (otros aspectos como la mortalidad y el reclutamiento también intervienen) alterar las densidades poblacionales (Henderson, 2005).
El modelamiento del crecimiento en los peces o ajuste del cambio en el tamaño corporal usando una ecuación, es un componente fundamental para abordar la evaluación de stocks (Mangel et al., 2000). La ecuación que describe el modelo de Von Bertalanffy, ha demostrado un mejor nivel de detalle al trazado de la curva, e incluso ser superior cuando es comparado con modelos polinomiales (Chen et al., 1992). A manera de ejemplo, en especies iteróparas, al tener en cuenta un crecimiento diferenciado bajo dos etapas, previo y luego del comienzo del ciclo reproductivo, el modelo presenta mejor ajuste con base en esta discretización de los datos a partir del estadio de vida (Lester et al., 2004).
Adicional al crecimiento, y bajo el concepto de población, otros atributos biológicos como el reclutamiento y la mortalidad proveen información primordial a la teoría de historia de vida en los peces. Aspectos complementarios que determinan en última instancia, la supervivencia, la continuidad de cohortes y el éxito de una especies en un ambiente dado (Beverton & Holt, 1993; Sparre & Venema, 1997). Es así, como el análisis de los descriptores de las historias de vida juegan por ejemplo, un papel fundamental en la variabilidad de los tamaños alcanzados, y en consecuencia, la dinámica de las poblaciones de un sistema (lo cual repercute en la producción de las pesquerías ante los escenarios de manejo y evaluación de los stocks pesqueros) (Johnson et al., 2016; Maunder & Thorson, 2019; Sparre & Venema, 1997).
En la cuenca del río Magdalena habitan 233 especies de peces (García-Alzate et al., 2021). De estas, el 97 % han sido asignadas a cierta categorías de historia de vida como oportunista, equilibrio y periódica; incluso, (Jiménez-Segura et al., 2021) proponen una clasificación adicional basado en la temprana edad de maduración (géneros Characidium y Astyanax). Adicionalmente, diversos estudios han aportado al conocimiento básico de los rasgos de historia de vida de las especie del río Porce, enfocando sus esfuerzos en los temas reproductivos y ecológicos (Álvarez-Bustamante et al., 2018; Jiménez-Segura, Restrepo-Santamaría, et al., 2014; Loaiza-Santana et al., 2018; Londoño-Velásquez et al., 2018). Con la formación de nuevos embalses al interior de las redes fluviales del río Magdalena, el hábitat de las especies de peces se ha ido modificado progresivamente (Restrepo-Santamaria et al., 2022) y, con ello surgen de nuevos ensamblajes o asociaciones de peces caracterizados por la reducción en la abundancia de especies nativas (Agostinho et al., 1999; Agostinho et al., 2008) así como también la proliferación de algunas especies introducidas como el Tucunaré (Cichla ocelaris) y las Tilapias o mojarras (Oreochromis niloticus, O. mossambicus, Coptodon rendalli y Parachromis loisellei, ) (Álvarez-Bustamante et al., 2018; Jiménez-Segura, Álvarez et al., 2014; Valencia-Rodríguez et al., 2021). Para el caso de la cuenca del río Porce, en aquellos tramos artificiales sometidos al estrés hidráulico por apertura de compuertas, la riqueza de especies de peces observada resulta indicativa de los niveles de persistencia de las especies ante las condiciones drásticas del ambiente creadas por el hombre (Restrepo-Santamaria et al., 2022).
La cuenca del río Porce ha sido transformada para la construcción de una red de embalses destinados a la generación de energía eléctrica. La ictiofauna que habita este río ha sido monitoreada desde la formación de algunos de sus respectivos embalses evidenciando cambios en sus ensamblajes (Álvarez-Bustamante et al., 2018; Jiménez-Segura et al., 2018). Con el objetivo de abordar las posibles causas que relacionan los atributos poblacionales y sus historias de vida en función de los hábitats ocupados en dos embalses de producción hidroenergética. En este artículo respondemos algunas preguntas planteadas, como por ejemplo, que si la tasa de crecimiento somático de las especies de una zona de los embalses es particular al tipo de estrategia de vida de la especie, en qué momento del año se da el mayor reclutamiento de sus poblaciones, si es particular para cada especie y si estos rasgos han tenido consecuencias en las abundancias poblacionales actuales. También discutimos cómo su estrategia de vida influyó en la persistencia de sus poblaciones ante las nuevas condiciones ambientales definidas por el embalse.
Métodos y métodos
Área de estudio: La cuenca del río Porce tiene un área de 5 248 km2 y una longitud del cauce de 282 km, y es parte de la red fluvial de la macrocuenca Magdalena-Cauca, (Fig. 1). Desde su nacimiento a los 3 340 m.s.n.m. el río Porce recoge alrededor de 250 tributarios y en su cuenca media las principales fuentes de contaminación puntual con diferentes cargas y agentes contaminantes (Álvarez-Bustamante et al., 2018; Corantioquia et al., 2015). Al ser represados, los ambientes lenticos presentan un carácter eutrofizado por alta materia orgánica, en particular la porción de transición (fluvial-lacustre) del río Porce al embalse Porce II (Gallo-Sánchez et al., 2014). La cuenca recibe una precipitación mensual acumulada promedio de 272 mm (anual entre 1 650-3 850 mm) aportando a la altura de embalse Porce II, un caudal mensual promedio de 120 m3/s o aguas abajo una media de 252 m3/s. El régimen hidrológico presenta dos periodos de lluvias y sus correspondientes de estiaje, (Estación IDEAM 2701802). Los nuevos antromas acuáticos fueron formados a partir del llenado de los embalses Porce II (altitud de 500 m.s.n.m.) y Porce III (altitud de 900 m.s.n.m.), en los años 2001 y 2011, respectivamente.
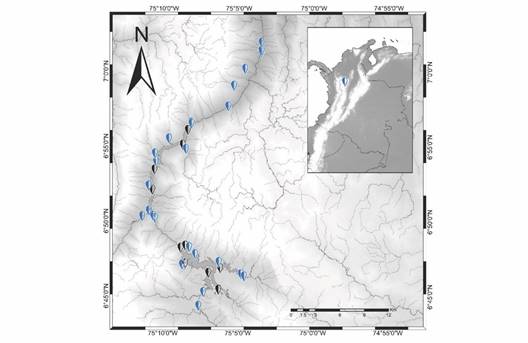
Fig. 1 Ubicación geográfica de estaciones fijas de monitoreo en el área de influencia de los proyectos hidroeléctricos Porce II y Porce III. Negro: estaciones ubicadas en embalses. Azul: estaciones ubicadas en tributarios al embalse y cauce principal del río Porce. Mapa elaborado por Juliana Herrera (juliana.herrera.p@gmail.com). / Fig. 1. Geographical location of fixed monitoring stations of Porce II and Porce III hydroelectric projects. Black: stations located in reservoirs. Blue: stations located in tributaries to the reservoir and main channel of the Porce River. Map prepared by Juliana Herrera (juliana.herrera.p@gmail.com).
Diseño de muestreo: En 31 estaciones fijas de monitoreo agrupadas a partir de los principales tipos de ambientes, cauce principal del río Porce, embalses Porce II y Porce III, y afluentes a cada embalse, se realizaron trece jornadas de campo. La ventana temporal proporciono el análisis de la serie histórica de los datos comprendida entre el 2005 y 2017. Dicha información correspondió con los monitoreos normativos decretados por la autoridad nacional de licencias ambientales (ANLA) al seguimiento de la ictiofauna en el área de influencia de ambos proyectos hidroeléctricos, (Fig. 1).
Captura de peces: Se utilizaron diversos métodos de pesca complementarios, acorde con las condiciones abióticas de cada ambiente de interés, para registrar la mayor diversidad íctica posible. En los ambientes lenticos o embalses se utilizaron redes de espera con diferentes ojos de malla (1, 2, 3, 4, 5, 6, 7, 8, 9, 10 cm), expuestas durante seis horas. En las estaciones con flujo unidireccional (quebradas y ríos), se emplearon atarrayas (ojo de malla 1 cm, 30 lances) y dos horas de barrido a un sector de 100 metros con electropesca (Samus 725MP). Los peces muertos se fijaron en formol al 10 % y transportados al laboratorio de ictiología de la Universidad de Antioquia (análisis trófico y reproductivo), y los demás devueltos al medio donde fueron inicialmente capturados. Por condiciones de seguridad, las capturas se realizaron en horas del día (7:00-14:00 horas). Las consideraciones éticas para el manejo de individuos se hicieron siguiendo los protocolos de interés (Murphy & Willis, 1996).
En los últimos diez años de monitoreo se han detectado 57 taxones, 62 en total para la cuenca del río Porce (Huertas-Rodríguez et al., 2022; Jiménez-Segura, Álvarez et al., 2014). Para poder estimar los parámetros de crecimiento somático usamos solo la información de aquellas especies de mayor frecuencia y abundancia numérica acumulada en el histórico de monitoreo; se estableció arbitrariamente un punto de corte mínimo de 600 datos de longitudes para el proceso de estimación y un análisis grafico preliminar de las progresiones modales (Tabla 1).
Tabla 1 Conteos numéricos de las especies con mayor cantidad de registros acumulados durante los monitoreos ictiológicos realizados entre 2005 y 2017 en los embalses Porce II y Porce III (Río Porce, Antioquia, Col). / Table 1. Numerical counts of the species with the greatest number of records accumulated during the ichthyological monitoring carried out between 2005 and 2017 in the Porce II and Porce III reservoirs (Río Porce, Antioquia, Col).
| Ambiente | Sistema | Taxón | ||||||
| Andinoacara latifrons | Astyanax microlepis | Brycon henni | Chaetostoma cf. thomsoni | Coptodon rendalli | Hemibrycon caucanus | Roeboides dayi | ||
| Lacustre | Porce II | 585 | 15 609 | 4 | 0 | 447 | 0 | 453 |
| Porce III | 445 | 2 171 | 332 | 0 | 184 | 0 | 145 | |
| Fluvial tributario | Sistemas loticos Porce II | 642 | 184 | 606 | 17 | 4 | 415 | 10 |
| Sistemas loticos Porce III | 10 | 1 | 2 320 | 429 | 0 | 356 | 1 | |
| Fluvial principal | Río Porce | 924 | 766 | 539 | 193 | 75 | 679 | 105 |
| Total | 2 606 | 18 731 | 3 801 | 639 | 710 | 1 450 | 714 | |
Estimación de parámetros de crecimiento: A partir de las distribuciones de frecuencias obtenidas o por periodo de muestreo para cada especie se estimaron los parámetros de crecimiento: talla asintótica, Linf (promedio de la talla asintótica, cm), coeficiente de crecimiento, k (tasa exponencial de acercamiento a Linf, año-1) y t0 (considerado un artefacto del modelo, predice cuál es el tiempo o la edad cuando la talla promedio era cero, año-1), empleando las rutinas ELEFAN I (Electronic Frequency Analysis), del software FISAT II (FAO-ICLARM Fish Stock Assessment Tools) (Gayanilo et al., 2002). Las curvas de crecimiento estimadas para cada especie seguirán la ecuación (1) del Modelo de Crecimiento (MCvB) propuesto por von Bertalanffy; ecuación modificada por Beverton y Holt (Beverton & Holt, 1993).
L t = L inf (1-e -k(t-t0) ) (1)
Los parámetros de crecimiento estimados bajo los métodos propuestos, establecen como supuestos básicos: i) no consideran estacionalidad en su ganancia o detenimiento del metabolismo bajo ciertas condiciones ambientales como se presentan en latitudes altas, ii) suponen un crecimiento constante que disminuye al alcanzar la asíntota mientras los peces avanzan en edad, iii) las edades deben considerarse como relativas y no absolutas (Sparre & Venema, 1997). Como criterio a la selección de los parámetros se buscó el mejor ajuste partiendo del criterio Rn (bondad de ajuste interno del programa = 10ESP/ASP/10; donde ESP: Explained Sum of Peaks, ASP:Available Sum of Peaks) y la inspección visual del trazado de la curva a través del histograma con los datos reestructurados. Herramientas adicionales como Shepherds (Shepherd, 1987) y Powell-Wetherall (Powell, 1979) permitieron afinar y corroborar los estimados anteriores verificando valores cercanos.
Con base en los datos de los máximos tamaños corporales que pudieran alcanzar los peces (valores extremos), la Longitud Máxima Estimada (procedimiento de regresión tipo I) en el paquete FISAT. Los valores del Linf coincidieron con los intervalos (95 %) de la Longitud Máxima Estimada (LME) (Formacion et al., 1992). LME fue estimada por una de las herramientas de asociación ofrecida por el software FISAT t0 fue calculado a partir de la fórmula empírica (2) propuesta por Pauly (1980) (Froese & Pauly, 2022):
log 10 t 0 = -0.392-0.275 * log 10 L inf -1.038 * log 10 k (2)
Así mismo, el reclutamiento se define como un proceso que vincula aquella fracción de la población (usualmente joven) proveniente de un stock desovante donde subyace el potencial de renovación; a una determinada edad/talla involucra habitualmente un cambio de hábitat, comenzando por ejemplo a ser disponible para la pesquería (Johnson et al., 2016; Lorenzen & Camp, 2019).
La edad máxima de crecimiento o longevidad fue estimada a partir de la idea de Taylor (1958), fórmula empírica 3, donde los peces de mayor edad en condiciones de un stock no explotado, alcanzan el 95 % de la Linf, a partir del MCvB (Pauly, 1980):
t max ≈ 3/k + t 0 (3)
El reclutamiento y sus respectivos pulsos en la frecuencia mensual, fueron reconstruidos a partir de las series de tiempo (Moreau & Cuende, 2005; Shepherd, 1987) bajo el MCvB llevado a cabo en el programa FISAT II (Gayanilo et al., 2002). Durante los procesos de muestreo y de acuerdo con los métodos de pesca experimental durante los protocolos de monitoreo, para casi todas las especies se proporcionan una amplia variedad de tallas, lo cual mejora la proyección de las curvas de crecimiento y estimadores poblacionales. En cualquier caso, se delimitó un número mínimo de observaciones, 700 datos de los longitud estándar, para los respectivos análisis empleados en programa FISAT II (Gayanilo et al., 2002).
Resultados
Se analizaron un total de 28 651 datos de longitud estándar, correspondiente con siete especies de peces con los mayores registros numéricos disponibles (Tabla 1). En términos numéricos las especies más representativas en las zonas limnéticas de los embalses Porce II y Porce III incluyeron a: sardina coliamarilla Astanax microlepis, chango Roeboides dayi y la mojarra Coptodon rendalli, en donde sus abundancias relativas a estos sistemas corresponden al 94.5, 83.7 y 88.9 %, respectivamente (Tabla 1).
De otro lado, las especies torrentícolas fueron registradas exclusivamente en los ambientes fluviales y tributarios de alta turbulencia (río Guadalupe, Quebrada Caracolí), guacuco Chaetostoma thomsoni, sardina Hemibrycon caucanus y sabaleta Brycon henni; esta última solo registro el 8.8 % en los ambientes lacustres. La Mojarra azul o mojarrita Andinoacara latifrons, fue una especie conspicua en el área de estudio; proporcionalmente fue capturada en ambientes lacustres (39.5 %) y fluviales (40.5 %), incluso en ambientes transiciones como desembocaduras y tramos con caudal ecológico fue relevante.
Solo dos especies, Coptodon rendalli y Brycon henni, son objeto de captura; en el primer caso por la pesquería artesanal de Porce II, y la segunda derivada de la pesquería de recreativa y de subsistencia en los tributarios al embalse (principalmente el río Guadalupe), respectivamente. A partir de la información de todos los ambientes, las longitudes medias de captura, máximas estimadas y demás parámetros poblacionales para las especies anteriores son descritos en la Tabla 2.
Tabla 2 Resumen de los parámetros en la estructura de tallas y crecimiento de algunas especies de peces presentes en los sistemas de Porce II y Porce III. / Table 2. Summary of growth and parameters of some fish species registered on Porce II and Porce III systems.
| Especie | LMC ± D.E (mm) | LME ± IC95% (mm) | Linf2 (mm) | Linf1 (mm) | K1 (año-1) | tmax (año) | K2 (año-1) | to |
| Astyanax microlepis | 79.93 ± 10.57 | 139.50 (128.42-150.58) | 149.34 | 149.54 | 0.568 | 5.3 | 0.46 | -0.35 |
| Andinoacara latifrons | 70.18 ± 22.71 | 206.86 (178.21-228.41) | 203.30 | 216.88 | 0.24 | 12.5 | 0.28 | -0.66 |
| Brycon henni | 90.59 ± 44.87 | 299.04 (271.16-326.92) | 353.59 | 353.59 | 0.252 | 11.7 | 0.27 | -0.34 |
| Chaetostoma thomsoni | 59.68 ± 23.37 | 172.94 (149.05-196.83) | 190.12 | 190.12 | 0.225 | 13.3 | - | -0.85 |
| Coptodon rendalli | 147.56 ± 56.93 | - | 410.46 | 416.36 | 0.54 | 5.5 | - | -0.28 |
| H. caucanus | 58.31 ± 11.92 | 118.79 (109.84-127.74) | 160.26 | 160.76 | 0.375 | 8.0 | - | -0.52 |
| Roeboides dayi | 69.71 ± 9.84 | 137.88 (122.77-152.99) | 129.61 | 129.41 | 0.5 | 6.0 | - | -0.41 |
1. Promedio obtenido por ELEFAN; 2 obtenido por Powell-Wetherall. LMC: Longitud Media de Captura, LME: Longitud Máxima Estimada, Linf: Longitud infinita o asintótica, k: coeficiente de incremento ecuación del MCvB, tmax: longevidad, t0: parámetro inicial de ecuación MCvB. D.E: Desviación Estándar. IC: Intervalo de confianza. / 1. Average obtained by ELEFAN; 2 Obtained by Powell-Wetherall. LMC: Average length of capture, LME: Estimated Maximum Length, Linf: Infinite or asymptotic length, k: coefficient of increase equation of the MCvB, tmax: longevity, t0: initial parameter of equation MCvB. D.E: Standard Deviation. IC: Confidence intervals.
Las especies A. microlepis, C. rendalli y R. dayi, todas ellas asociadas a los sistemas represados o leníticos, presentaron los mayores valores en los coeficientes de crecimiento (k entre 0.568 y 0.5 año-1). El resto de las especies (A. latifrons, B. henni, C. thomsoni y H. caucanus), cuyas capturas provienen de los sistemas loticos, presentaron valores intermedios (k entre 0.225 y 0.357 año-1), las curvas de crecimientos con los valores promedio son descritos en la Tabla 3.
Tabla 3 Curvas de crecimiento bajo el MCvB (valores promedios a partir de las rutinas de estimación ELEFAN y Powell-Wetherall) para algunas especies de peces presentes en los sistemas de Porce II y Porce III. / Table 3. Growth curves under the MCvB (average values from the ELEFAN and Powell-Wetherall estimation routines) for some fish species present in the Porce II and Porce III systems.
| Especie | Curva de crecimiento |
| Astyanax microlepis | L inf = 149.44(1 - e -0.514(t-(-0.35) ) |
| Andinoacara latifrons | L inf = 210.09(1 - e -0.26(t-(-0.66) ) |
| Brycon henni | L inf = 353.59(1 - e -0.261(t-(-0.34) ) |
| Chaetostoma thomsoni | L inf = 190.12(1 - e -0.225(t-(-0.85) ) |
| Coptodon rendalli | L inf = 413.41(1 - e -0.54(t-(-0.34) ) |
| H. caucanus | L inf = 160.51(1 - e -0.375(t-0.52) ) |
| Roeboides dayi | L inf = 129.51(1 - e -0.5(t-(-0.41) ) |
Bajo el mismo modelo predictivo de crecimiento (MCvB) los ambientes lacustres ofrecen las condiciones para alcanzar tamaños medios de captura y máximo esperados en menor tiempo: A. microlepis (LMC = 1.19 y LME = 4.96 años), A. latifrons (LMC = 0.9 y LME = 11.05 años), B. henni (LMC = 0.79 y LME = 17.93 años), C. cf. thomsoni (LMC = 0.84 y LME = 9.62 años), C. rendalli (LMC = 0.54 y LME = 2.38 años), H. caucanus. (LMC = 0:58 y LME = 3.05 años) y R. dayi (LMC = 1:14 y LME = 5.26 años).
Dos posibles patrones temporales fueron observados en los pulsos de reclutamiento. Por un lado, el patrón de reclutamiento observado en los ambientes lóticos o lacustres presentaron una tendencia a la bimodalidad, particularmente en los cíclidos A. latifron y C. rendalli y los microcaracidos A. microlepis y R. dayi. En el caso de A. microlepis (especie con mayor número de registros numéricos en los ambientes lacustres), los pulsos mensuales fueron proporcionalmente iguales a lo largo del año. El ajuste gaussiano realizado por el retro-cálculo del modelo de crecimiento sugiere una leve disminución para mayo, no obstante, su reclutamiento bien podría extenderse a lo largo del ciclo anual.
De otro lado, la tendencia monomodal en, H. caucanus y B. henni, sugieren un único periodo de reclutamiento, y temporalmente de mayor duración a lo largo del año. En el caso concreto de B. henni, el único pico de reclutamiento observado sugiere una fase intensa del ingreso de sus primeras cohortes a las áreas de monitoreo extendidas cuatro meses antes y después de este, (Fig. 2). En el caso de C cf. thomsoni, el pulso de reclutamiento se da principalmente durante el segundo trimestre del año, extendiéndose en menor proporción hasta finales de este; un segundo incremento es proyectado por el ajuste gaussiano hacia el último trimestre, (Fig. 2). R. dayi fue la especie con mayor discontinuidad temporal o variabilidad mensual en el reclutamiento (Fig. 2).
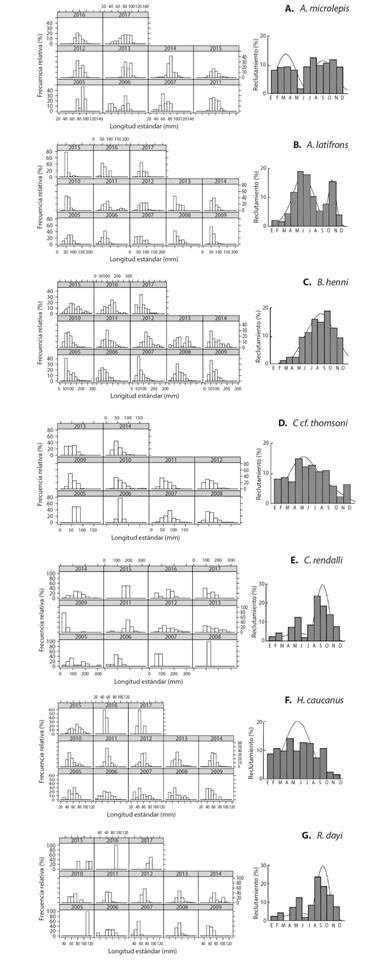
Fig. 2 Distribución relativa anual de los datos de longitud (izquierda) y patrón de reclutamiento (derecha) durante el periodo 2005-2017 para las especies de peces A. A. microlepis, B. A. latifrons, C. B. henni, D. C. cf. thomsoni, E. C. rendalli, F. H. caucanus, y G. R. dayi, registradas en los sistemas de Porce II y Porce III.Fig. 2. Annual relative distribution of length data (left) and recruitment pattern (right) during the period 2005 and 2017 for fish species A. A. microlepis, B. A. latifrons, C. B. henni, D. C. cf thomsoni, E. C. rendalli, F. H. caucanus, y G. R. dayi, registered on Porce II and Porce III systems.
Discusión
La abundancia de algunas especies de peces dentro de un embalse las cuales han logrado mantener sus poblaciones a los nuevos filtros ecológicos, puede ser explicada por la teoría de los rasgos de historia de vida (Hitt et al., 2020). Atributos que en concordancia con los gradientes estacionales intentan explicar parcialmente la distribución de los peces dulceacuícolas tropicales (Tedesco et al., 2008).
Por ejemplo, las especies nativas analizadas, A. microlepis, A. latifrons y R. dayi se han adaptado a las nuevas condiciones ambientales ofrecidas por la construcción de los embalses, logrando hasta cierto punto mantener poblaciones viables, incluso en ambientes como los túneles de descarga con escenarios hidráulicos altamente variables (Jiménez-Segura et al., 2018), y en el propio cauce del río Porce a pesar de las altas cargas de contaminantes (Gallo-Sánchez et al., 2014; Milena & Arroyave, 2008).
En consecuencia y con base en los rasgos de historia de vida para las estrategias oportunistas, estas dos especies de microcaracidos, A. microlepis, y R. dayi, han sido previamente clasificadas como tal (Jiménez-Segura et al., 2021; Londoño-Velásquez et al., 2018); donde históricamente han representado los mayores registros numéricos en los monitoreos como ha sido evidenciado en este estudio, y dominantes a nivel de las asociaciones analizadas dentro de los embalses (Álvarez-Bustamante et al., 2018). A partir de los análisis realizados, estas especies se caracterizaron fundamentalmente por ser organismos de pequeño porte (bajos tamaños corporales, LMC, LME o menores tallas asintóticas, Linf), de rápido crecimiento (mayores valores del coeficiente de crecimiento, k > 0.5 año-1) y de mayor recambio generacional (longevidad baja, tmax, inferior a los 6 años). De manera particular, tanto A. microlepis, y R. dayi han sido registradas en los ambientes epilimneticos de ambos embalses, principalmente en los ambientes próximos a las colas de los embalses (ambientes transicionales fluvial-lacustre) (Álvarez-Bustamante et al., 2018; Loaiza-Santana et al., 2018; Londoño-Velásquez et al., 2018), sus altos registros numéricos sugieren una preferencia por estos tipos de hábitats transicionales donde adicionalmente encuentran una alta disponibilidad de alimento (dato no mostrado). En condiciones naturales, ambas especies coexisten comúnmente en las ciénagas que conforman los planos inundables del río Magdalena , y en el caso concreto del género Astyanax spp., este ha sido clasificada como periódica-maduración temprana (Jiménez-Segura et al., 2016; Jiménez-Segura et al., 2021).
No obstante, bajo las condiciones de ambientes formados por nuevos antromas sus efectivos poblacionales incrementan notoriamente. A. microlepis con un reclutamiento constante a lo largo del periodo anual, provee aportes continuos a sus poblaciones locales, manteniendo así altas densidades en los mismo ambientes ya mencionados; ejemplares maduros han sido constantemente observados durante los años 2011-2016 (Londoño-Velásquez et al., 2018). Género cercanos a Astyanax como por ejemplo Moenkhausia presenta patrones de reclutamiento los cuales sugieren una alta continuidad e incluso con más de un pulso de reclutamiento durante todo el año (Perez-Lizama & Ambrósio, 2003).
En el caso particular de R. dayi, las poblaciones han presentado una disminución progresiva principalmente en el embalse Porce II. Una posible explicación basado en los conceptos de historia de vida podrían estar en función de un constante reclutamiento de A. microlepis y con una mayor fecundidad (diez veces superior en A. microlepis) (Loaiza-Santana et al., 2018) siendo un gran competidor para R. dayi. Ambas especies presentan hábitos ecológicos compartidos (preferencia por recursos tróficos, posición en la común de agua, hábitats de desove y crecimiento, etc.) (Álvarez-Bustamante et al., 2018; Jiménez-Segura, Álvarez et al., 2014; Loaiza-Santana et al., 2018).
La segunda estrategia de historia de vida, en equilibrio (rápido a mediano crecimiento, bajo recambio generacional o longevidad incrementada, reclutamiento variable, grandes tamaños corporales y mayor longitud asintótica.), agrupa dos especies nativas de la macrocuenca, A. latifrons y C thomsoni, y una especie exótica de interés pesquero, C. rendalli. Este estudio evidencio a partir de los registros numéricos, que A. latifrons ha demostrado ser bastante tolerante tanto en los sistemas lacustres y fluviales de los embalses Porce II y Porce III. Además la presencia de ejemplares maduros en ambos ambientes (Loaiza-Santana et al., 2018), sugiere una continuidad de su ciclo reproductivo sin importar las características contrastantes en las masas de agua (ambientes lacustres vs fluviales).
De otro lado, A. latifrons ha presentado desoves parciales, un periodo de reproducción no estacional y prolongado que se extiende durante todo el año (Loaiza-Santana et al., 2018; Olaya-Nieto et al., 2010; Winemiller, 1989), hechos que evidenciarían una menor variabilidad en su reclutamiento anual. A. latifrons es una especie de permanente registro en el tramo de caudal ecológico del embalse Porce III (Restrepo-Santamaria et al., 2022) una porción del lecho sometida a estrés hidráulico bajo la operación por apertura de compuertas. Al igual que C. rendalli, A. latifrons presenta un cuidado parental bucal (Mojica et al., 1997; Olaya-Nieto et al., 2010; Ramírez-Gil & Ajiaco-Martínez, 2001) y su táctica está basada en la puesta de pocos oocitos (fecundidad media) pero de tamaños intermedios (Loaiza-Santana et al., 2018).
Del orden Siluriformes, el loricarido C. thomsoni, registrado principalmente en las quebradas (afluentes de aguas cristalinas) tributarias de Porce III, ha sido clasificado de acuerdo a sus rasgos de historia de vida como estratega en equilibrio (Jiménez-Segura et al., 2021; Zúñiga-Upegui et al., 2014). C. thomsoni presenta una fecundidad baja (Zúñiga-Upegui et al., 2014). El género Chaestosotoma ofrece un cuidado parental de la prole depositada en los sustratos durante la época verano o estiaje (Power, 2003). En el alto Magdalena Chaestostoma sp. según la estructura de tallas anual, un ingreso constante de menores tamaños (en otras palabras reclutamiento) presenta incrementos en el primer trimestre del año (Zúñiga-Upegui et al., 2014). En el área de estudio C. thomsoni viene presentando una disminución progresiva en sus capturas.
La otra especie con estrategia de historia de vida en equilibrio, introducida al sistema de embalses, es C. rendalli. Sus principales rasgos (rápido crecimiento, bajo recambio generacional o longevidad incrementada, reclutamiento variable, grandes tamaños corporales y longitud asintótica de mayor magnitud) y constituyente fundamental de los desembarcos artesanales (López-Sánchez et al., 2018). Sus altas abundancias y alto valor en el coeficiente de crecimiento, con valor medio k = 0.479 obtenido a partir de 24 referencias en el Fishbase (Froese & Pauly, 2022; Weyl & Hecht, 1998), esta especie ha logrado habitar de forma exitosa el embalse de Porce II. De acuerdo con el patrón de reclutamiento de C. rendalli, se sugiere un mayor ingreso de nuevos reclutas en el primer semestre del año. Con base en las estrategias de historia de vida, presenta la particularidad de la construcción de nidos para los sus huevos fertilizados (Agostinho et al., 2021; Popma & Masser, 1999), hecho que se evidencia en las socavaciones o huevos de las márgenes o litorales de ciertas zonas del embalse Porce II. Su patrón bimodal de reclutamiento podría estar relacionado con las mismas variaciones hidrológicas que as su vez modulan la disponibilidad de los sustratos verticales en las márgenes de los embalses (cola y zona media del embalse Porce II), hábitat apropiado para el cuidado de sus proles.
Dentro de la estrategia de historia de vida, estacional o periódica, la Sabaleta Brycon henni es considerada como una de las especies con mayor interés bio-ecológico por sus particularidades en su ciclo de vida. Esta especie presenta un ciclo biológico con migraciones cortas (cauce principal y tributarios menores), la cual a su vez posiblemente determina su diferenciación genética (Hurtado-Alarcón et al., 2011), al tanto que la diversidad y estructura genética durante aproximadamente una década (tiempo de llenado de Porce III) no se evidencian alteradas ante la imposición de una barrera antropogénica, (presa de Porce III) (Herrera-Pérez et al., 2023). No obstante, y con base en los resultados del monitoreo, en la actualidad, la principal población de B. henni está restringida a un sistema regulado (río Guadalupe, afluente al cauce comprendido entre los embalses Porce II y Porce III), manteniendo su estructura corporal a lo largo del gradiente longitudinal (resultado no mostrado). Contrariamente, otros tributarios de menor caudal directos al embalse (p. e. quebrada Caracolí) Porce III, han evidenciado una progresiva disminución en su ocurrencia (resultado no mostrado).
El reclutamiento larval de B. henni, tiene lugar en las pequeñas posas remanentes cercanas al cauce, y su reproducción ha sido catalogada como anual o bianual (organización histológica en dos posibles patrones de los ovarios, desarrollo asincrónico, asincrónico en más de dos grupos y sincrónico en dos grupos) (Builes & Urán, 1974; Mancera-Rodríguez, 2017; Montoya et al., 2006); es posible existan varios fenotipos reproductivos. Para B. henni, la estacionalidad de las precipitaciones y la temperatura predicen potencialmente su presencia en sistemas de alta montaña (Valencia-Rodríguez et al., 2021), mientras variables como el brillo solar y el nivel de oxígeno, están asociadas con su ciclo reproductivo (Montoya et al., 2006). En términos del crecimiento y bajo condiciones de laboratorio, B. henni ha presentado tasas de crecimiento similar si comparado con especies del mismo género (Gaviria & Arroyave, 2015). Adicionalmente, B. henni evidenció un comportamiento monomodal en su patrón de reclutamiento hacia el segundo semestre del año (principalmente durante la época de lluvias). B. henni ha sido particularmente capturada en las colas de los embalses del Porce III, en las quebradas tributarias y en el tramo de caudal ecológico del mismo embalse. De acuerdo a las particularidades de sus rasgos que definen su historia de vida (distribución geográfica, ciclo de vida, requerimientos de hábitats e importancia para la pesca local), la sabaleta se perfila como una especie clave para el desarrollo de estrategias de manejo sobre la conservación y protección de los peces de agua dulce (Valencia-Rodríguez et al., 2021), de alta relevancia para la pesca recreativa y de subsistencia en la zona de estudio, y en general otras cuencas adyacentes que hacen uso de este recurso. Esta especie ha venido disminuyendo sus registros numéricos progresivamente durante los últimos años de monitoreo (dato no publicado).
Por último, dentro de la estrategia de historia de vida periódica, algunas especies dentro del género Hemibrycon han sido clasificadas de acuerdo a la misma estacionalidad en relación a las fases hidrológicas coincidentes con los periodos de estiaje durante los desoves (Ibarra-Trujillo & García-Alzate, 2017; Román-Valencia et al., 2008; Román-Valencia & Botero, 2006). A pesar de que las especies dentro de este género han sido clasificadas como oportunistas (Jiménez-Segura et al., 2021), es quizás prudente considerar que especies de pequeño porte y crecimiento medio, amplíen los rangos que definen a las especies con historias de vida estacional. En el caso particular de la cuenca del río Porce, se presenta una sola etapa de reclutamiento proyectada hacia mitad de año, y a partir de la serie histórica de los conteos numéricos, la especie H. caucanus ha presentado cambios en la estructura anual de los tamaños corporales (disminución en el rango), y paralelamente, al igual que B. henni, disminuido los conteos numéricos de manera progresiva. Es de resaltar que las especies de este género presentan una baja fecundidad (Ibarra-Trujillo & García-Alzate, 2017).
En consecuencia, se corrobora que bajo el panorama actual, el recambio temporal de las especies abre la ventana al éxito de las especies (nativas) oportunistas (en el presente caso explosión demográfica de microcarácidos nativos) y consecuente decrecimiento de especies periódicas y en equilibrio (Hitt et al., 2020); también el incremento de especies con cuidado parental (cíclidos) puede ser indicativo del estado de envejecimiento de los embalses (Agostinho et al., 1999).
Bajo un enfoque poblacional de los rasgos de historia de vida (crecimiento y el reclutamiento) y otros atributos bioecológicos, surgen dos posibles patrones que intentarían explicar la respuesta de sus poblaciones locales bajo un área intervenida. Por un lado, la supervivencia y finalmente el éxito de establecer poblaciones viables en escenarios ambientales transformados (antromas o embalses destinados a la generación de energía), incluyen un aspecto relacionado con el crecimiento acelerado, y las ventajas que ofrece un alto recambio poblacional independiente de los tamaños alcanzados. De otro lado, las especies de peces coexistentes en los sistemas tributarios, ríos y quebradas a la cadena de embalses, resaltan por su crecimiento medio, y una amplia diversidad de tamaños corporales en función de la composición del ensamblaje local (resultado no mostrado).
Declaración de ética: los autores declaran que todos están de acuerdo con esta publicación y que han hecho aportes que justifican su autoría; que no hay conflicto de interés de ningún tipo; y que han cumplido con todos los requisitos y procedimientos éticos y legales pertinentes. Todas las fuentes de financiamiento se detallan plena y claramente en la sección de agradecimientos. El respectivo documento legal firmado se encuentra en los archivos de la revista.

