


 Spanish (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
 Cited by SciELO
 Similars in
SciELO
 uBio

 Permalink


Introducción
El estudio de la diversidad de organismos nos permite tener una idea de los procesos que determinan la composición y estructura de las comunidades biológicas en la naturaleza. El abordaje desde sus diferentes perspectivas (diversidad alfa, beta, gamma, la diversidad funcional o la diversidad filogenética) nos permite aproximarnos y comprender mejor su funcionamiento y hacer un seguimiento temporal de estas con fines de monitoreo (Moreno et al., 2017). Los ecosistemas urbanos no son la excepción; en estos ecosistemas, comunidades de organismos ricas en especies coexisten con el ser humano (Aronson et al., 2014). Explorar la diversidad en la urbe es importante porque nos permite tener un mejor conocimiento de las especies con las que compartimos diariamente los hábitats que circundamos (Stępniewska, 2021) y valorar los servicios que nos brindan (por ejemplo, la provisión de aire de buena calidad, y la mantención de bienes culturales) para velar apropiadamente por su cuidado y protección (Nilon et al., 2017).
En ecosistemas urbanos, las comunidades de insectos son un grupo que ha tenido particular interés por los investigadores ya que se encuentran altamente relacionadas a los cambios, composición y estructura de su entorno. Por ejemplo, en estos ecosistemas se ha apreciado que las comunidades de los órdenes himenoptera, diptera y coleoptera son sensibles (tienden a aumentar su riqueza) en zonas con mayor riqueza de flora y en función del tamaño del área de los parques (Lequerica-Tamara et al., 2021); estos órdenes altamente diversos no solo son importantes por el rol como polinizadores, sino también por las múltiples interacciones insecto-planta fruto de procesos coevolutivos lo que nos invita a evaluarlos en conjunto (Lunau, 2004). Las hormigas que se encuentran en zonas urbanas disminuyen su locomoción, aumentan su actividad nocturna y disminuyen el tiempo de maduración de las crías (Trigos-Peral et al., 2024). Se sabe que los polinizadores tienden a aumentar en los las zonas urbanas con mayor oferta floral (Davis et al., 2017; Dietzel et al., 2023; Zeng et al., 2023) y que la producción de flores y frutos aumenta con una mayor diversidad de polinizadores (Nguyen et al., 2023); este grupo funcional mantiene incluso la conectividad entre parques dentro de la ciudad, incluso frente a la presencia aparentes de barreras físicas (Płaskonka et al., 2024), asimismo, la polinización es uno de los servicios ecosistémicos más afectados en áreas urbanas (Llodrà-Llabrés & Cariñanos, 2022). Las comunidades de detritívoros (Silphidae, Histeridae, Phoridae) se ven afectadas también por procesos de urbanización disminuyendo sus tasas de degradación (Marschalek & Deutschman, 2022). Todo ello es muestra de cómo los insectos son indicadores de cambios y procesos que ocurren en los ecosistemas, algunos de los cuales mantienen servicios ecosistémicos importantes (ej. polinización y sus beneficios, el reciclaje de materia orgánica, el control biológico y de especies que causan enfermedades, la regulación de la fertilidad del suelo solo por mencionar algunos; puede ver una lista detallada en Noriega et al. (2018)) para los ciudadanos.
Para el Perú son pocos los trabajos científicos publicados sobre insectos en ambientes urbanos; algunos de ellos se han centrado en insectos plaga como áfidos (Macrosiphum rosae, Myzus persicae, Rhodobium porosum y Wahlgreniella nervata) o la mosca blanca (Aleurodicus juleikae), estas investigaciones sentaron las bases para encontrar métodos de control de estas especies fitófagas (León-López & Ortiz, 2014; Valencia, 2009). Otros trabajos en campus universitarios han mostrado interés por el estudio de la diversidad de la familia Syrphidae (importante por permitir una vegetación diversa) (Aucca et al., 2021) y la orden Coleoptera (con un trabajo de inventario que permitió registrar 74 especies en este orden (Juárez & González, 2016). En ese contexto, se hace necesario un estudio más integral de la diversidad de insectos que ocupan los espacios urbanos; de esta forma, podremos tener una idea de la magnitud de especies que habitan en estas áreas verdes, de su importancia como proveedores de servicios ecosistémicos, y de la importancia de los parques y jardines como albergues para estas especies de organismos. Por ello, la presente investigación tuvo como objetivo conocer la diversidad de insectos en parques de uno de los distritos más ecológicamente comprometidos de la ciudad de Lima, comparando a) la diversidad entre las estaciones fría y cálida, b) la similitud de la riqueza y estructura comunitaria entre los parques evaluados a nivel de morfoespecie y c) estudiando la similitud a nivel de órdenes y grupos funcionales entre estaciones y parques.
Materiales y métodos
Área de estudio: Estuvo ubicada en el distrito de Miraflores, Lima (Perú). Este distrito, que cuenta con más de 113 mil habitantes y. 9.62 km2, se encuentra en la zona costera de la capital peruana, al sur oeste de la ciudad; se caracteriza también por la importancia que le toma su municipalidad a la promoción y conocimiento de los parques y jardines, ofreciéndoles programas ambientales para involucrar a los ciudadanos; sus parques son considerados uno de sus principales atractivos turísticos, siendo utilizados con fines de esparcimiento y como espacios para realizar manifestaciones culturales (Municipalidad Distrital de Miraflores, 2023). Las evaluaciones se realizaron en invierno del 2022 (julio-octubre 2022; 15.38 °C, 1.98 mm/hora, 87.68 % para los promedios de las temperatura, precipitación y humedad respectivamente) y verano 2023 (enero-marzo 2023; 24.07 °C, 10.94 mm/hora, 77.60 % para los promedios de las temperatura, precipitación y humedad respetivamente) (Servicio Nacional de Meteorología e Hidrología del Perú, 2023).
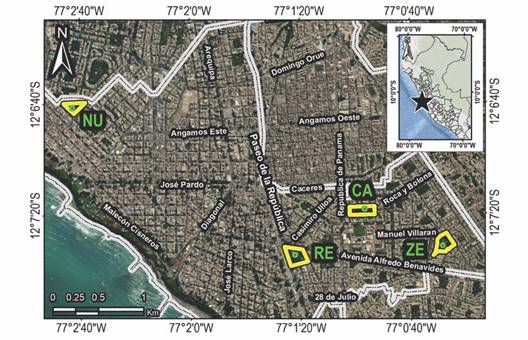
Fig. 1 Área de estudio. En la esquina superior derecha se muestra la ubicación en la costa peruana. CA = Castilla; RE = Reducto; UN = Naciones; ZE = Zela. / Fig. 1. Study area. The location on the Peruvian coast is shown in the upper right corner. CA= Castilla; RE= Reducto; NU= Naciones; ZE= Zela.
Se eligieron cuatro parques para la instalación de las trampas para insectos (Fig. 1); su elección estuvo basada en criterios de idoneidad (que presentaran árboles y pastos en donde pudiera colocarse las trampas), accesibilidad (que se pudiera acceder libremente o con coordinación de una autoridad perenne), protección y seguridad (que las trampas pudieran colocarse sin que corran el peligro de ser sustraídas intencional o no intencionalmente, así como que no se encontrara cerca de algún foco de peligrosidad). Un trabajo previo sobre la vegetación (Obando & Aponte, 2023) nos permite tener una idea de las características de los parques elegidos:
a) Parque Naciones Unidas (en adelante, Naciones): Ubicado en las coordenadas (-12°06’41” N & -77°02’42” W), este parque cuenta con un área de 1.24 ha; tiene un aproximado de 52 especies de plantas entre árboles, arbustos y palmeras. La trampa de dosel fue colocada en un árbol “Ficus” (Ficus benjamina) a aproximadamente ocho m de altura en una zona rodeada de algunos macizos florales al pie del árbol.
b) Parque Francisco de Zela (en adelante, Zela): Ubicado en las coordenadas (-12°07’31” N & -77°00’28” W), este parque cuenta con un área de 2.57 ha; tiene un aproximado de 48 especies de plantas entre árboles, arbustos y palmeras. La trampa de dosel fue colocada en un árbol de Eucalyptus sp. a aproximadamente 10 m de altura en una zona rodeada de más árboles de eucaliptos en forma de bosque.
c) Parque Reducto N°2 (en adelante, Reducto): Ubicado en las coordenadas (-12°07’34” N & -77°01’21” W), este parque cuenta con un área de 2.28 ha; tiene un aproximado de 38 especies de plantas entre árboles, arbustos y palmeras. La trampa de dosel fue colocada en un árbol “Tipuana” (Tipuana tipu) a aproximadamente 12 m de altura en una zona rodeada de árboles de casuarinas, eucaliptos y tipas.
d) Parque Ramón Castilla (en adelante, Castilla): Ubicado en las coordenadas (-12°07’08” N & -77°00’56” W), este parque cuenta con un área de 2.24 ha; tiene un aproximado de 44 especies de plantas entre árboles, arbustos y palmeras. La trampa de dosel fue colocada en un árbol de Sapindus saponaria de aproximadamente 6 m de altura en una zona rodeada de árboles de Ficus sp. y Melia sp., asismismo, había algunos macizos florales cerca del pie del árbol.
Diseño y técnicas de muestreo: Para cada temporada (invierno y verano) se emplearon cuatro métodos de recolecta: tres pasivos (trampas de caída “pitfall”, una trampa “malaise” al raz del suelo y una en dosel; periodo de actividad: 72 h) y uno activo (trampa de luz; periodo de actividad: 6 h); el tamaño de muestras y esfuerzo de muestreo se basó en estudios previos (Ramírez et al., 2002; Smith-Pardo & Gonzalez, 2007; Uhler et al., 2022).
Se colocaron 10 trampas pitfall al ras del suelo formando una grilla de 4-4-2 con una distancia entre trampas de 5 m; estas trampas se activaron con una solución de detergente, sal y agua hasta la mitad del envase (Giraldo-Mendoza, 2021; Rossi-La Torre, 2022). Se utilizó también una trampa Malaise; para el envase de recolecta se agregó alcohol de 70º (Krahner et al., 2021; Lewthwaite et al., 2024). Se colocó también una trampa Malaise en el dosel; esta fue instalada y activada con alcohol de 70° (Gasca & Higuera, 2010) utilizando el Sistema de Cuerda Estática o Static Rope Sytem y el Sistema de Cuerda Móvil o Moving Rope System (Anderson et al., 2015; Julius & Lilly, 2021); esta trampa fue implementada mediante las técnicas de ascenso al dosel, o trepa de árboles, las cuales se realizan con equipos de protección personal y por un especialista con experiencia, siguiendo protocolos de seguridad para el operador y para no dañar al árbol (International Society of Arboriculture, 2017; Jepson, 2007; Kane & Ryan, 2009).
La trampa de luz se hizo trabajar por una noche y esta fue ensamblada con una tela blanca de 3 x 2 m y una lámpara de vapor de mercurio; se cuidó que no hubiera puntos de luz cercanos, de forma que evitar la menor perturbación posible.
Las trampas pasivas formaron una sola estación, con una distancia menor a 10 m entre ellas; la trampa luz, fue ubicada a no más de 20 m de distancia.
Los insectos atrapados fueron puestos en bolsas de polipropileno (5 x 10) y se rotularon; aquellos que se recolectaron por medio de la trampa de luz, se colocaron en envases con sobres de papel glassine. El total de muestras se evaluaron en el laboratorio de Dosel Tropical, Ingenieros y Consultoría Ambiental, utilizando bibliografía especializada, como las claves del libro “Introducción a los Hymenoptera de la Región Neotropical” (Fernández & Sharkey, 2006), “American Beetles” (Arnett et al., 2002) y “Manual of Nearctic Diptera” (McAlpine et al., 1981) fueron clasificados y contados hasta el nivel máximo posible (Orden, superfamilia, familia), cuando las especies no puedan ser determinadas, serán diferenciadas en morfoespecies, dicha definición corresponde a grupos de individuos que se consideran especies distintas en función a su morfología externa (Oliver & Beattie, 1996). Una vez trabajadas las muestras se depositaron en el Museo de Entomología Klaus Raven Büller de la Universidad Nacional Agraria La Molina. Esta investigación contó con las autorizaciones de la Municipalidad y con el visto bueno de Serfor mediante la RD N° D000082-2022-MIDAGRI-SERFOR-DGGSPFFS-DGSPFS.
Análisis de datos: Se generó una base de datos conteniendo el orden, familia y grupo funcional de cada morfoespecie en función de su familia y orden; en cada caso se anotó su abundancia según el tipo de trampa, estación del año (invierno o verano) y parque evaluado. La asignación de grupos funcionales se realizó tomando como base la información provista en la bibliografía (Naumann et al., 1991); en el caso particular de las micro avispas perteneciente a Himenoptera se les asignó el grupo funcional parasitoide ya que su función en general es parasitar huevos de Lepidoptera o Aphidoidea. Los datos y sus tendencias se analizaron y graficaron utilizando el software PAST V4.16c (Hammer et al., 2001); todos los algoritmos utilizados corresponden a los que se encuentran programados como parte del software (Hammer et al., 2001). A continuación, se detallan los análisis realizados:
a) Riqueza y abundancia por periodo (invierno y verano): Se comparó la riqueza y abundancia a nivel de morfoespecie de manera i) global (sumando los valores de los cuatro parques) y ii) considerando los valores de cada parque por separado. En el caso ii) se utilizaron pruebas para comparar las estaciones de invierno y verano; para ello se verificó la normalidad (prueba de Shapiro Wilk, en adelante SW) y la homocedasticidad (prueba de Levene, en adelante L); cuando ambos se verificaban (p > 0.05) se utilizó la prueba de T de Student (en adelante TS), caso contrario se utilizó la prueba de Mann Withney (en adelante MW). Se hicieron gráficos de cajas para mostrar la distribución de los valores obtenidos.
b) Similitud entre parques y estaciones: Se evaluó la similitud de la composición de morfoespecies entre los parques y estaciones del año por medio de un analisis de agrupamiento utilizando las incidencias (presencia/ausencia) de los taxones y el índice de Jaccard; se calculó el índice de correlación cofenético con la finalidad de medir la confiabilidad de la representación gráfica. Con esta misma data, se comparó la similitud comunitaria entre los muestreos de invierno y verano mediante una prueba de permutación no paramétrica (con 9 999 permutaciones, en adelante PERMANOVA) con el índice de Jaccard.
c) Análisis de composición comunitaria por estación según el tipo de trampa: Se comparó la composición comunitaria de las estaciones de invierno y verano obtenidas en cada tipo de trampa (pitfall, malaise en dosel, malaise al raz del suelo y trampa de luz) a nivel de morfoespecie. Para cada tipo de trampa se anotó la riqueza o abundancia de cada parque y se comparó utilizando TS o MW según fue el caso (ver sección a) para más detalle).
Se utilizó las abundancias de cada morfoespecie por parque para hacer una comparación entre las estaciones (invierno y verano) por medio de una PERMANOVA; cuando hubo diferencias, se graficaron por medio de un análisis de coordenadas principales (el índice de Bray Curtis, en adelante PCoA; se hizo el gráfico con las dos coordenadas más explicativas) y se identificó las morfoespecies responsables de más del 50 % de diferenciación por medio de un análisis SIMPER.
Adicionalmente, se calculó la efectividad de captura por tipo de trampa. Para ello se estimó el número de especies potenciales por estación usando el estimador de diversidad de Chao-1; se dividió la riqueza encontrada de morfoespecies observada entre el valor estimado, y se multiplicó por 100.
d) Órdenes y Grupos funcionales según estación y parque: Se comparó las comunidades de insectos entre las estaciones a nivel del orden y grupos funcionales. Esta comparación se hizo con los valores de riqueza y abundancia, i) global (sumando los valores de los cuatro parques) y ii) considerando los valores de cada parque por separado. Para el caso i), se utilizó una prueba de Chi cuadrado (en adelante X2), mientras que para el caso ii) se utilizó una PERMANOVA con el índice de similitud de Bray-Curtis y acompañado por la identificación de los órdenes/grupos funcionales responsables de más del 50 % de diferenciación por medio de un análisis SIMPER (solo en los casos en que el p < 0.05 para PERMANOVA).
Resultados
Resumen de los cuatro parques en conjunto: En total se recolectaron 191 morfoespecies distribuidas en seis órdenes y seis grupos funcionales; su orden, grupo funcional y abundancia por parque puede revisarse en el Material Suplementario 1 (MS1 A). El orden con mayor cantidad de morfoespecies fue Diptera (68) seguido de Hymenoptera H(40) y Coleoptera (30); los órdenes con mayor abundancia (individuos recolectados) fueron Diptera (773), Lepidoptera (338) e Himenoptera (328); los grupos funcionales con mayor cantidad de morfoespecies fueron detritívoro (63), fitófago (58) y parasitoide (40); estos mismos grupos tuvieron también las abundancias más altas (789, 586 y 251 individuos respectivamente) (Tabla 1).
Tabla 1 Número de morfoespecies y abundancia en los diferentes órdenes y grupos funcionales encontrados. / Table 1. Number of morphospecies and abundance in the different orders and functional groups.
| Morfoespecies | Abundancia | |
| ORDEN | ||
| Blattodea | 3 | 13 |
| Coleoptera | 30 | 173 |
| Dermaptera | 1 | 7 |
| Diptera | 68 | 773 |
| Hemiptera | 16 | 174 |
| Hymenoptera | 40 | 328 |
| Lepidoptera | 25 | 338 |
| Neuroptera | 2 | 3 |
| Orthoptera | 1 | 3 |
| Psocodea | 3 | 140 |
| Siphonaptera | 1 | 1 |
| Thysanoptera | 1 | 2 |
| GRUPO FUNCIONAL | ||
| Parásito | 1 | 1 |
| Depredator | 21 | 134 |
| Parasitoide | 40 | 271 |
| Detritívoro | 63 | 789 |
| Fitófago | 58 | 586 |
| Xilófago | 1 | 6 |
| Micófago | 4 | 150 |
| Polinizador | 3 | 8 |
Riqueza y abundancia por estación del año: La riqueza de morfoespecies fue mayor en el muestreo de verano (139 morfoespecies) en comparación con el muestreo de invierno (105); las abundancias siguieron un patrón similar (1 214 y 731 individuos recolectados para verano e invierno respectivamente). La riqueza de morfoespecies por parque en cada muestreo se aprecia en la Fig. 2A; es posible apreciar que los valores más altos fueron obtenidos en el parque Reducto en el muestreo de verano (81 morfoespecies) seguido del parque Castilla en el muestreo de invierno (66 morfoespecies); el promedio de morfoespecies por parque fue de 38.75 y 59.5 para los muestreos de invierno y verano respectivamente; a pesar de esta diferencia en los promedios la diferencia no fue estadísticamente significativa (T = 1.627; p > 0.05). La Fig. 2B muestra la abundancia de individuos por parque; es posible apreciar que los valores más altos fueron obtenidos en los parques Castilla y Reducto durante el muestreo de verano (440 y 332 individuos recolectados respectivamente); el promedio de la abundancia por parque fue de 182.75 y 303.5 para los muestreos de invierno y verano respectivamente; a pesar de esta diferencia en los promedios la diferencia no fue estadísticamente significativa (Z = 1.299; p > 0.05). Pueden verse más detalles del análisis estadístico y gráficos de cajas complementarios en MS1 B.
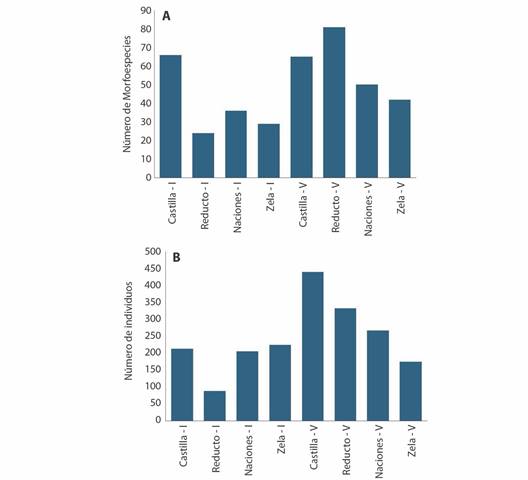
Fig. 2 A. Riqueza y B. abundancia de morfoespecies por parque en los muestreos de invierno (I) y verano (V). / Fig. 2. A. Richness and B. abundance of morphospecies per park in winter (I) and summer (V) sampling.
Similitud entre parques y estaciones: El análisis de agrupamiento mostró dos grupos: un grupo con los parques en el muestreo de invierno y otro con los parques durante el verano; el coeficiente de correlación cofenético (> 0.85) nos indica que la representación es confiable (Fig. 3). La similitud entre los parques es baja (menor al 40 %) lo que nos muestra un alto recambio de especies entre parques; la prueba de PERMANOVA confirmó las diferencias entre los muestreos de invierno y verano (F = 1.936; p < 0.05).
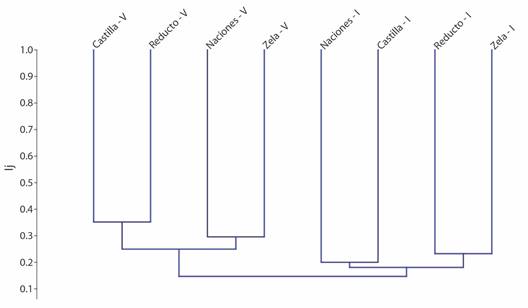
Fig. 3 Análisis de agrupamiento utilizando el índice de similitud de Jaccard (Ij) en los muestreos de verano (V) e invierno (I) y. Coeficiente de correlación cofenético = 0.88. / Fig. 3. Clustering analysis using the Jaccard similarity index (Ij) in summer (V) and winter (I) sampling. Cophenetic correlation coefficient = 0.88.
Composición comunitaria por estación según el tipo de trampa: La mayor abundancia y riqueza fue registrada en las trampas pitfall (269 individuos y 51 especies, ambos para el muestreo de verano del parque Reducto; Tabla 2); el análisis estadístico mostró diferencias únicamente entre la riqueza de verano e invierno de las muestras obtenidas con las trampas pitfall (T = 2.68; p < 0.05), en donde los valores más altos fueron obtenidos en verano; no hubieron diferencias soportadas estadísticamente entre verano e invierno para los otros tipos de trampas ni variables (Fig. 4, MS1 C, MS1 D, MS1 E, MS1 F). Se encontraron diferencias entre el invierno y verano para la composición comunitaria en las trampas tipo pitfall (F = 2.01; p < 0.05, Fig 5A) y malaise a ras del suelo (F = 2.04; p < 0.05, Fig. 5B). En la trampa tipo pitfall 12 taxones contribuyeron al 50 % de las diferencias entre invierno y verano, con predominancia de Sciaridae en invierno y Phoridae en verano; para la trampa tipo malaise al raz del suelo, tres taxones contribuyeron al 50 % de las diferencias entre invierno y verano, con predominancia de Pscodea en invierno y Lepidoptera en verano (Tabla 3). La efectividad de captura encontrada tuvo valores promedio de 74.6 % (62.5-86.8 %), 82.8 % (53.9-100 %), 60.9 % (41.2-76.4 %) y 50 % (31.4-64.5 %) para las trampas pitfall, malaise en dosel, malaise al raz del suelo y trampa de luz respectivamente (MS1 C, MS1 D, MS1 E, MS1 F).
Tabla 2 Número de individuos recolectados y número de morfoespecies por parque y tipo de trampa en los muestreos de invierno y verano. / Table 2. Number of individuals collected) and number of morphospecies by park and type of trap in winter and summer sampling.
| INVIERNO | VERANO | ||||||||
| Tipo de Trampa | Castilla | Reducto | Naciones | Zela | Castilla | Reducto | Naciones | Zela | |
| Pitfall | A | 116 | 45 | 186 | 112 | 196 | 269 | 230 | 94 |
| R | 34 | 15 | 28 | 13 | 38 | 51 | 43 | 30 | |
| Malaise en Dosel | A | 0 | 3 | 0 | 1 | 1 | 12 | 0 | 1 |
| R | 0 | 3 | 0 | 1 | 1 | 10 | 0 | 1 | |
| Malaise raz del suelo | A | 59 | 38 | 20 | 76 | 210 | 20 | 37 | 80 |
| R | 23 | 10 | 12 | 11 | 13 | 11 | 12 | 12 | |
| Trampa de noche | A | 38 | 2 | 0 | 35 | 33 | 31 | 0 | 0 |
| R | 20 | 1 | 0 | 11 | 17 | 20 | 0 | 0 | |
A = abundancia; R = riqueza. / A = abundance; R = richness.
Tabla 3 Morfoespecies que aportaron con el 50 % de las diferencias comunitarias según la prueba SIMPER para la trampa tipo Pitfall (Disimilitud promedio = 86.51) y malaise al raz del suelo (Disimilitud promedio = 95.05). / Table 3. Morphospecies that contributed with 50 % of the community differences according to the SIMPER test for the Pitfall type trap (Average dissimilarity = 86.51) and ground malaise (Average dissimilarity = 95.05)
| Tipo de trampa | Morfoespecie | DP | % C | % A | PI | PV |
| Pitfall | Phoridae 1 | 9.79 | 11.32 | 11.32 | 8 | 38.8 |
| Sciaridae 1 | 7.872 | 9.099 | 20.41 | 25.8 | 2 | |
| Delphacidae 2 | 3.962 | 4.58 | 24.99 | 0.25 | 13.8 | |
| Hymenoptera 7 | 3.951 | 4.566 | 29.56 | 0.25 | 13 | |
| Formicidae 1 | 3.641 | 4.208 | 33.77 | 0.75 | 7 | |
| Formicidae 6 | 2.533 | 2.928 | 36.7 | 3.5 | 9.25 | |
| Tachinidae 1 | 2.427 | 2.805 | 39.5 | 8.75 | 0 | |
| Aphididae 1 | 2.419 | 2.796 | 42.3 | 6.75 | 1 | |
| Diptera 30 | 2.152 | 2.488 | 44.79 | 7.25 | 0 | |
| Diptera 23 | 2.07 | 2.393 | 47.18 | 2.25 | 7 | |
| Diptera 1 | 1.901 | 2.197 | 49.38 | 6 | 0 | |
| Diptera 24 | 1.872 | 2.164 | 51.54 | 1.5 | 5.5 | |
| Malaise al raz del suelo | Lepidóptera 11 | 35.35 | 37.19 | 37.19 | 0 | 66.3 |
| Psocodea 2 | 7.771 | 8.175 | 45.37 | 10.5 | 0.5 | |
| Ichneumonidae 2 | 6.942 | 7.303 | 52.67 | 6 | 0.75 |
DP = Disimilitud promedio del taxón; % C = porcentaje de contribución; % A = porcentaje acumulado de contribución; PI = promedio Invierno; PV = Promedio verano. / DP = Average taxon dissimilarity; % C = contribution percentage; % A = accumulated contribution percentage; PI = winter average; PV = Average summer.
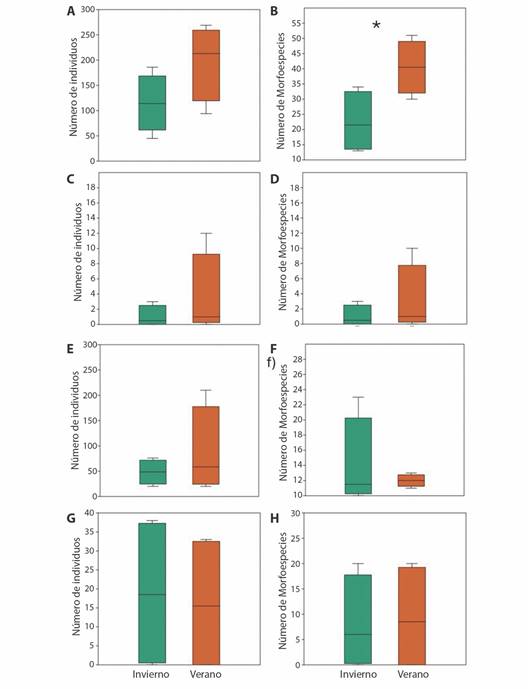
Fig. 4 Número de individuos recolectados (abundancia) y número de morfoespecies (riqueza) para los muestreos de invierno (verde) y verano (naranja) usando: A. y B. las trampas pitfall, C. y D. malaise en dosel, E. y F. malaise a ras del suelo y G. y H. trampas de noche. *p < 0.05 para T de student. / Fig. 4. Number of individuals collected (abundance) and number of morphospecies (richness) for winter (green) and summer (orange) sampling using: A. and B. pitfall traps, C. and D. canopy malaise, E. and F. root malaise ground and G. and H. night traps. *p < 0.05 for student’s T.
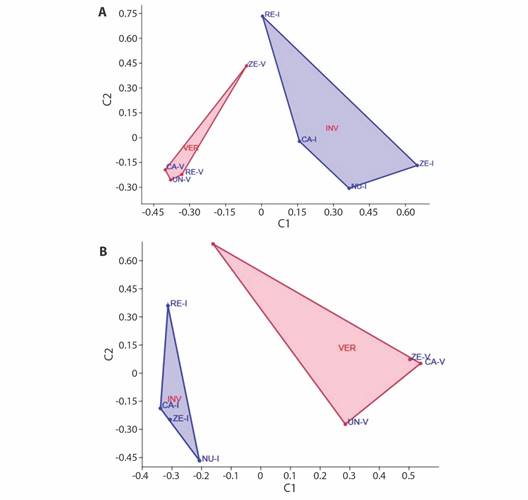
Fig. 5 Análisis de coordenadas principales para las muestras provenientes de las trampas A. pitfall y B. malaise en los muestreos de invierno (INV) y verano (VER). En ambos casos se muestran los ejes 1 (C1) y 2 (C2) que tuvieron el 51 y 48 % de la explicación acumulada para los casos A. y B. respectivamente. CA = parque Castilla; RE = parque Reducto; UN = parque Naciones Unidas; ZE = parque Zela. / Fig. 5. Principal coordinates analysis for the samples from the A. pitfall and B. malaise traps in the winter (INV) and summer (VER) sampling. In both cases, axes 1 (C1) and 2 (C2) are shown, which had 51 and 48 % of the accumulated explanation for cases A. and B. respectively. CA = Castilla Park; RE = Reducto Park; UN = United Nations Park; ZE = Zela Park.
Órdenes y Grupos funcionales según estación y parque: Las proporciones de órdenes y grupos funcionales en invierno y verano se encuentran en la Fig. 6; los valores detallados se encuentran en MS1 G. Cuando se hizo el análisis con los datos de los parques en su conjunto, se encontraron diferencias entre el invierno y verano a nivel de ordenes más abundantes y más ricos en especies (p < 0.05 para la prueba de X2 en ambos casos); los órdenes más abundantes durante los meses de invierno fueron Diptera (406 individuos recolectados) y Psocodea (136); en los meses de verano abundaron individuos de los órdenes Diptera (367) y Lepidoptera (317); los órdenes más ricos en invierno fueron Díptera (52 morfoespecies) e Himenoptera (18), mientras que en verano fueron Diptera (37) e Himenoptera (34) seguidos cercanamente por Coleoptera (27).
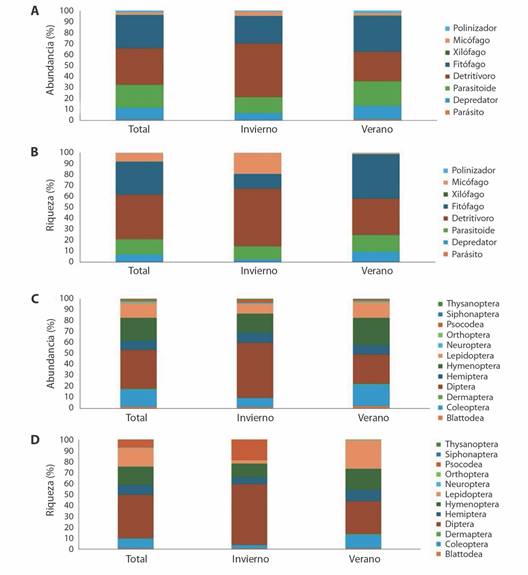
Fig. 6 Proporción de A. y B. órdenes y C. y D. grupos funcionales en función de A. y C. la abundancia y B. y D. la riqueza. En todos los casos, la prueba de X2 indicó diferencias entre los muestreos de invierno y verano (p < 0.05). / Fig. 6. Proportion of A. and B. orders and C. and D, functional groups as a function of A. and C. abundance and B. and D. richness. In all cases, the X2 test indicated differences between winter and summer sampling (p < 0.05).
También se encontraron diferencias entre el invierno y verano a nivel de los grupos funcionales más abundantes y más ricos en morfoespecies (p < 0.05 para la prueba de X2 en ambos casos); los grupos funcionales más abundantes durante los meses de invierno fueron Detritívoro (384 individuos recolectados) y Micófago (138); en los meses de verano abundaron individuos Fitófagos (487) y Detritívoros(405); los grupos funcionales más ricos en especies en invierno fueron Detritívoro (51 morfoespecies) y Fitófago (26), mientras que en verano fueron Fitófago (45) y Detritívoro (30).
Cuando se hizo el análisis considerando los datos de cada parque por separado se encontró diferencias para los órdenes entre invierno y verano (solo para el análisis basado en abundancias; F = 2.729, p < 0.05); Lepidoptera, Diptera e Himenoptera explican más del 50 % de estas diferencias, siendo más abundantes en verano (Tabla 4; para más detalle revisar MS1 H). También se encontraron diferencias entre los grupos funcionales de invierno y verano (solo para análisis basado en abundancias; F = 2.381, p < 0.05); en este caso, fitófago y detritívoro explicaron más del 50 % de las diferencias (Tabla 4).
Tabla 4 Órdenes y grupos funcionales que aportaron con el 50 % de las diferencias comunitarias entre invierno y verano según la prueba SIMPER. / Table 4. Orders and functional groups that contributed with 50 % of the community differences between winter and summer according to the SIMPER test.
| Grupo | DP | % C | % A | PI | PV | |
| Órdenes | Lepidoptera | 14.25 | 26.68 | 26.68 | 5.25 | 79.3 |
| Diptera | 11.54 | 21.62 | 48.29 | 102 | 91.8 | |
| Hymenoptera | 7.548 | 14.13 | 62.42 | 22.8 | 59.3 | |
| Grupos funcionales | Fitófago | 19.28 | 41.05 | 41.05 | 24.8 | 122 |
| Detritívoro | 9.559 | 20.36 | 61.41 | 96 | 101 |
Disimilitud promedio para ordenes = 53.41. Disimilitud promedio para grupos funcionales = 46.96. DP = Disimilitud promedio del grupo; % C = porcentaje de contribución; % A = porcentaje acumulado de contribución; PI = promedio Invierno; PV = Promedio verano. / Average dissimilarity for orders = 53.41. Average dissimilarity for functional groups = 46.96. DP = Group average dissimilarity; % C = contribution percentage; % A = accumulated contribution percentage; PI = winter average; PV = Average summer.
Discusión
A la fecha, existen muy pocos trabajos que aborden de manera integral el estudio de la diversidad de insectos en ambientes urbanos; algunos trabajos están focalizados únicamente en un orden o grupo (Aucca et al., 2021; Juárez & González, 2016) lo que dificulta hacer una comparación entre ecosistemas urbanos estudiados. Con esta investigación, se muestra el gran potencial que tienen los parques y jardines para albergar la diversidad biológica de insectos. Considerando los valores de efectividad obtenidos (50-82.8 %) se puede inferir que la muestra obtenida en el presente estudio represente solo una parte de la diversidad de insectos que se encuentra en los parques estudiados. Trabajos realizados en ecosistemas cercanos muestran una riqueza de morfoespecies similar; por ejemplo, el trabajo de Rossi-La Torre (2022) reportó 160 morfoespecies en un humedal costero del Callao (con valores de efectividad entre el 62-72 %). Es importante considerar que el recambio observado (inferido de la baja similitud entre parques; Fig. 3) también es un indicador de alta diversidad; en este caso, esta baja similitud nos indica la particularidad de cada sitio evaluado y que, de aumentar el número de parques evaluados, podríamos encontrar incluso una mayor cantidad de morfoespecies. La similitud no parece guardar relación con la distancia entre parques; por ejemplo, a pesar de que el parque Naciones Unidas se encuentra mucho más alejado del resto de parques (Fig. 1), los valores de similitud son similares dentro cada época de muestreo (con valores alrededor del 35 % para el verano y 25 % para el invierno). Este patrón ha sido ampliamente estudiado para otros grupos taxonómicos presentes en ecosistemas costeros peruanos como el de las plantas vasculares en los humedales, en donde esta estructura paisajística ha devenido propuestas de la creación de corredores de diversidad (Gonzáles & Aponte, 2022); esto podría funcionar también a nivel de parques y jardines, quienes de forma complementaria albergan a la diversidad de organismos.
Es interesante notar que la mayor riqueza y abundancia se dio en los meses de verano; respuesta que era esperable por el aumento del metabolismo y oferta floral propia de la época cálida. En el verano la temperatura incrementa y trae consigo la disminución de la duración de los estados de desarrollo, generando (madurando) más individuos en menos tiempo, lo que expone un incremento en las dinámicas en los ecosistemas urbanos. Ejemplo de ello podría ser la presencia de Phoridae en verano; estos individuos, detritívoros por excelencia, pueden asociarse al fango de los parques y al tipo de agua de riego, estos componentes forman un sustrato dónde se lleva a cabo el desarrollo larval (Lewthwaite et al., 2024). Esto, podría estar asociado con la alternancia de otros grupos como con el mismo interés alimenticio como Sciaridae (quienes se alimentan de organismos directamente relacionados con la degradación como los hongos, lo que podría explicar su mayor presencia en invierno), aunque algunas investigaciones sugieren que esto esta alternancia requiere aún mayor investigación (Bangay et al., 2022). Es interesante notar también que la presencia de insectos de la familia Eucoliidae está asociada a la gran cantidad de dípteros por ser sus presas predilecta para la ovoposición (Arnold, 2022); esto podría justificar su presencia durante el verano, donde Hymenoptera 7 estuvo presente.
La luz y la temperatura juegan también un papel importante, influyendo en el forrajeo que representa un patrón de actividad específico por especie: A más luz y temperatura más actividad y por lo tanto mayor probabilidad de ser recolectados (Choi, 2008; Kocsis & Hufnagel, 2011). Esto pudo ser observado en una de las morfoespecies encontradas (Lepidoptera 11), la cual estuvo prácticamente ausente en las colectas realizadas en los meses de invierno y presente en todos los parques en los meses de verano (Tabla 3). Esto nos lleva a proponer que esta morfoespecie puede ser un muy buen indicador del inicio de la estación cálida, ya que las polillas están más activas en días cálidos y cerca a sus fuentes de alimento como botones florales (Choi, 2008; Csóka et al., 2018); posteriores investigaciones centradas particularmente en este orden (y morfoespecie) son importantes a fin de considerarla como un indicador de los cambios climáticos (Kocsis & Hufnagel, 2011).
En la presente investigación se evaluaron cuatro parques, que diferían ligeramente en área y número de especies arbóreas (ver sección “Área de estudio”). Particularmente el parque Naciones Unidas, fue aquel que presentó el menor tamaño; a pesar de ello, este parque no fue el que registró los valores más bajos de abundancia y número de morfoespecies siendo el parque Reducto el que tuvo los datos más bajos durante el muestreo de invierno (Fig. 2). El parque Reducto tiene una menor variedad de especies arbóreas; esto último podría explicar la menor cantidad de especies de insectos al disminuir la oferta de flores (en especial en los meses de invierno) la cual disminuye la diversidad de insectos (Davis et al., 2017; Zeng et al., 2023). Para poder comprobar esta hipótesis se sugiere plantear posteriores trabajos que permitan tener una mayor gradiente de tamaño de parques y de riqueza florística entre parques (características que no se buscaron en el presente diseño experimental lo que no permite hacer adecuados análisis de correlación; esto forma parte de las limitaciones de esta investigación).
Es importante mencionar que la metodología empleada permitió estimar la riqueza y abundancia de los diferentes grupos funcionales de insectos ya que los diferentes tipos de trampa permiten capturar insectos con diferentes comportamientos. En ese contexto, la variedad de grupos funcionales encontrada es un indicador de la diversidad de procesos que tienen a cargo estos organismos en los parques evaluados. La polinización, control biológico, el control del ciclo de nutrientes es llevado a cabo por grupos funcionales como los polinizadores, predadores/parasitoides y detritívoros respectivamente (Noriega et al., 2018), grupos que hemos visto representados en este estudio y cuya variabilidad a lo largo del año ha podido ser apreciada (Fig. 6). Se han encontrado parasitoides de la familia Ichneumonidae, Braconidae y se registraron 14 morfoespecies de la familia Tachinidae, lo cual evidencia un control biológico constante (Arafa & Shestakov, 2020; Salim et al., 2016), finalmente están aquellos como los pertenecientes a la familia Syrphidae que en larva son predadores y controlan pulgones, pero de adultos son importantes polinizadores que se pueden encontrar -también- en áreas verdes (Auca et al., 2021; Dunn et al., 2020). Estos resultados deben ser tomados en cuenta por los gestores de las áreas urbanas para poder valorar adecuadamente no solo a los polinizadores, sino también a los otros grupos de insectos que están cumpliendo un rol importante en los parques y jardines como los detritívoros y predadores. La gestión a este nivel incluye la implementación labores poda en árboles y arbustos que eviten eliminar y separan hábitats, manteniendo y enriqueciendo los espacios florales, así como creando parches de vegetación estacional que brinde refugio y alimento (Dietzel et al., 2023). De igual forma, esta información debe ser utilizada para acrecentar el nivel de conciencia ambiental que tienen los pobladores en la ciudad, permitiendo proponer actividades complementarias de ciencia ciudadana como la construcción de “Hoteles de Insectos”, los cuales permiten el refugio de insectos y otros artrópodos como las arañas, dándoles un espacio donde se salvaguardan las condiciones ambientales y temporales de la ciudad, propiciando su incremento y facilitando el acercamiento del ciudadano a la variedad de procesos ecológicos que ocurren en la naturaleza urbana (Núñez, 2021; Vásquez, 2016; Venn & Niemelä, 2004). Hay que considerar que el escenario es apropiado ya que los ciudadanos de la ciudad de Lima viven en un contexto donde se cuenta también con otros ecosistemas como las lomas, los humedales y los tillandsiales que son utilizados con fines de educación ambiental y turismo (Aponte, 2015) por lo que, de trabajar con las políticas adecuadas, el acercamiento con la naturaleza debe ser cada vez menos ajena culturalmente.
Finalmente, es importante considerar que para este tipo de estudios se requiere de un considerable esfuerzo de coordinación (por ejemplo, para evitar las pérdidas o robos de las trampas). Este tipo de estudios no podría haberse realizado sin el apoyo de los gobiernos locales, quien, en este caso, ha sido coherente con su constante interés por la protección de los espacios verdes de la ciudad. Consideramos que los resultados obtenidos son muy valiosos y sientan las bases para que investigadores que estén trabajando en esta línea (ecosistemas urbanos) puedan plantear posteriores investigaciones en insectos y otros grupos de organismos.
Declaración de ética: los autores declaran que todos están de acuerdo con esta publicación y que han hecho aportes que justifican su autoría; que no hay conflicto de interés de ningún tipo; y que han cumplido con todos los requisitos y procedimientos éticos y legales pertinentes. Todas las fuentes de financiamiento se detallan plena y claramente en la sección de agradecimientos. El respectivo documento legal firmado se encuentra en los archivos de la revista.
Ver material suplementario
0034-7744-rbt-73-01-e61729-suppl1.xlsx
