




 Espanhol (pdf)
 Artigo em XML
 Referências do artigo

 Tradução automática
 Enviar este artigo por email
 Citado por SciELO
 Similares em
SciELO
 uBio

 Permalink


Introducción
La familia Profundulidae Hoedeman & Bronner, 1951 (Van Der Laan et al., 2014), es un linaje de peces de agua dulce, incluidos dentro del orden Cyprinodontiformes (Killis, cachorritos y aliados) (Hertwig, 2008; Nelson et al., 2016; Parenti, 1981; Parenti, 1993). Esta familia de peces tiene una distribución geográfica muy limitada, que se extiende desde el sur de México a Centroamérica y es uno de los elementos distintivos de la fauna endémica de esta región (Miller, 1955; Morcillo et al., 2016; Parenti, 1981; Parenti, 1993).
Hasta hace poco, la familia Profundulidae estaba compuesta por un solo género, Profundulus, con dos subgéneros (Profundulus y Tlaloc) (Miller, 1955; Miller et al., 2005). Recientemente, los dos subgéneros fueron erigidos a nivel de géneros, basados en datos moleculares (Morcillo et al., 2016) y morfológicos-osteológicos (Domínguez-Cisneros et al., 2023). El género Tlaloc Álvarez y Carranza, 1951, comprende solamente cuatro especies; las cuales exhiben una distribución restringida, Tlaloc hildebrandi (Miller, 1955), endémica de Chiapas, México (Velázquez-Velázquez & Schmitter-Soto, 2004), Tlaloc labialis (Günther 1866), restringida al sur de México (Chiapas) y Guatemala (Miller et al., 2005), Tlaloc candalarius (Hubbs 1924), una especie cuasi-endémica, que solo se localiza en la frontera de México y Guatemala (Miller et al., 2005) y Tlaloc portillorum (Matamoros et al., 2012), endémica de Honduras en Centro América.
La osteología ha sido una fuente importante de caracteres morfológicos para proponer hipótesis de relaciones filogenéticas entre los profundúlidos y sus familias hermanas, dentro del orden de los Cyprinodontiformes (Costa, 1998; Costa, 2004; Ghedotti et al., 2005; Parenti, 1981; Parenti, 1993) y entre los géneros y algunas especies de la familia Profundulidae (Domínguez-Cisneros et al., 2023; González-Diaz et al., 2014; Uyeno & Miller, 1962). La sistemática de Profundulidae, es aún incompleta, con los géneros y sus especies pobremente definidos y muy poco se conoce acerca de su osteología (Morcillo et al., 2016); marcando una clara necesidad de mejorar la información sobre estudios morfológicos-osteológicos para este grupo de peces.
El esqueleto caudal, junto con el cráneo y la columna vertebral, son una de las fuentes de caracteres más importantes, utilizados en estudios filogenéticos en teleósteos (Arratia, 2008; Arratia, 2009). Particularmente el esqueleto caudal y la columna vertebral han sido fuente de estudio en diferentes grupos de peces, lo que ha demostrado el valor taxonómico, de estas estructuras, en el diagnóstico y separación de familias, géneros y hasta especies (Costa, 2012; Gracian-Negrete et al., 2012; Jawad & Jig, 2017; Rubio-Rodríguez et al., 2016). Por lo tanto, es importante explorar herramientas que puedan utilizarse como posibles fuentes de información y criterios para la identificación taxonómica de especies de este género, como lo es la osteología y la morfología comparativa. El objetivo de este estudio es proveer de una descripción detallada del complejo caudal y el número de vértebras de las especies del género Tlaloc y evaluar la utilidad de estos caracteres osteológicos en el diagnóstico y delimitación de las especies del género.
Material y métodos
Material examinado: Un total de 44 especímenes adultos de las cuatro especies del género Tlaloc fueron analizados: seis especímenes de Tlaloc hildebrandi, 11 de T. labialis, 18 de T. candalarius, y nueve de T. portillorum. El material utilizado procede de la colección de peces, del Museo de Zoología de la Universidad de Ciencias y Artes de Chiapas (MZ-UNICACH); los peces fueron fijados en una solución de formol al 10 % y posteriormente se conservaron en una solución de etanol al 70 %.
Los especímenes fueron procesados mediante la técnica de aclaramiento (diafanización) y tinción diferencial de tejidos óseos y cartílago, descrita por Dingerkus y Uhler (1977) y Taylor (1967). Los recuentos de vértebras comprenden la región abdominal y caudal, esta última incluye la primera vértebra unida al complejo caudal. La disección e identificación de los elementos caudales fue basado sobre la nomenclatura de los huesos, propuesto por Costa (1998), Gosline (1961) y Parenti (1981). El conteo y diferenciación de los radios caudales es con base en Arratia (2008), los cuales se distinguen en radios principales (segmentados y ramificados, más el primer radio sin ramificar situado en el margen de cada lóbulo) y radios procurrentes (el resto de los radios segmentados y no ramificados). Las fotografías de las estructuras caudales fueron tomadas con una cámara conectada al microscopio estereoscópico (zoom 5 : 1).
Las diferencias en los conteos de los radios caudales y el número de vértebras, entre las especies, fueron determinadas mediante un análisis de varianza de una vía; utilizando el paquete estadístico R (R Development Core Team, 2013).
Resultados
La estructura general del complejo caudal de las especies del género Tlaloc (Fig. 1), está compuesta por cuatro vértebras preurales (P2, P3, P4 y P5), fusionada a cada vértebra preural se encuentra un arco neural y un arco hemal, con su respectiva espina neural (n2-5) y hemal largas (h2-5); un centro compuesto (Cc), que se forma por la primera vértebra preural y los elementos de la placa hipural fusionada (Ph); un hueso parhipural (p) alargado y plano, que puede estar en contacto o no al Cc; un epural (e) de menor tamaño y más delgado que la espina neural 2 (n2); que puede estar en contacto o no con el estegural del Cc; y los radios caudales principales y radios procurrentes.
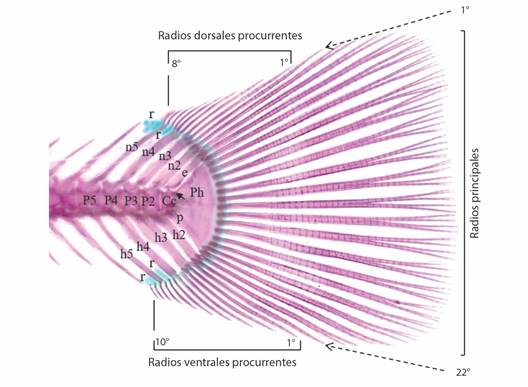
Fig. 1 Esquema del complejo caudal de Tlaloc hildebrandi. Vértebras preurales (P2-5); espinas hemales (h2-5); espinas neurales (n2-5); centro compuesto (Cc); epural (e); parhipural (p); placa hipural (Ph). La flecha señala la posición del estegural. / Fig. 1. Caudal complex of Tlaloc hildebrandi. Preural vertebrae (P2-5); hemal spines (h2-5); neural spines (n2-5); compound centrum (Cc); epural (e); parhypural (p); hypural plate (Ph). Arrow indicates stegural.
Vértebra pleural 1 y estructuras asociadas: La primera vértebra preural y los elementos posteriores del esqueleto caudal forman un centro compuesto y compacto (Cc), en el cual los límites del centrum ural, no son evidentes (Fig. 1). Adjunto al Cc, hay un pequeño estegural rudimentario con límites poco visibles, sobre la porción basal del margen dorsal de la placa hipural (Fig. 1); generalmente hay un proceso corto en forma de espina, sobre la porción lateral del estegural.
Hipurales: El esqueleto caudal de las especies del género Tlaloc, muestra un alto grado de fusión entre los elementos del hipural. La parte proximal de los hipurales, están fusionados al Cc, en el cual los límites entre los hipurales y el Cc son imperceptibles. Los hipurales inferiores (1 + 2) y los superiores (3 + 4) están fusionados y forman una placa en forma de abanico (por la curvatura del borde distal) en tres de las cuatro especies del género (T. portillorum, T. hildebrandi, T. candalarius) (Fig. 2A, Fig. 2C, Fig. 2D); mientras que en T. labialis la placa hipural es típicamente triangular (Fig. 2B). La placa hipural superior e inferior, está parcialmente fusionada, presenta un foramen (una ranura conspicua) en la parte medial anterior (ocasionalmente en la parte posterior) de la placa hipural, que divide la parte superior e inferior (Fig. 2A, Fig. 2B, Fig. 2C).
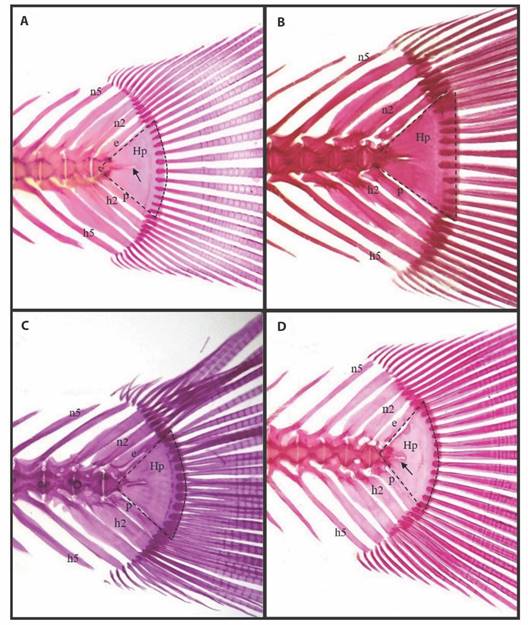
Fig. 2 Complejo caudal de las especies del género Tlaloc. A. T. candalarius, B. T. labialis, C. T. portillorum, D. T. hildebrandi. Abreviaturas: e, epural; h 2-5, espinas hemales del centro preural 2-5; Hp, placa hipural; p, parhipural; n 2-5, espinas neurales del centro preural 2-5. Las flechas señalan la ranura que divide la placa hipural. / Fig. 2. Caudal complex of the species of the genus Tlaloc. A. T. candalarius, B. T. labialis, C. T. portillorum, D. T. hildebrandi. Abbreviations: e, epural; h 2-5, hemal spines of preural centra 2-5; Hp, hypural plate; p, parhypural; n 2-5, neural spines of preural centra 2-5. Arrows indicates a middle gap.
Epural: Las especies de Tlaloc, tienen un solo hueso epural alargado (Fig. 2); el cual es un hueso en forma de cuchillo con un núcleo plano que se estrecha de manera abrupta en su porción ventral y una solapa delgada en la porción anteroventral, que puede estar cerca o en contacto con la espina neural del centro preural 2.
Parhipural: El parhipural (p) en las especies de Tlaloc es un hueso subrectangular, en el cual la porción distal es truncada, termina en un borde cartilaginoso que soporta algunos radios caudales (Fig. 2). La porción proximal del parhipural presenta una estructura conocida como hypurapophysis, que puede ser pequeña o estar muy desarrollada en forma de una espina. El parhipural puede hacer contacto o no con el Cc.
Vértebras pleurales (2-5): En el género Tlaloc, hay cinco vértebras pleurales que participan en el esqueleto caudal (P 2-5 + Cc). Estas vértebras se distinguen del resto de las vértebras de la columna vertebral, porque los extremos de las espinas neurales y hemales, son más largas y anchas que el resto de las espinas subsecuentes y pueden o no estar en contacto con los radios caudales (Fig. 1, Fig. 2). Las espinas, neural 2 y hemal 2, son más anchas que las espinas del centro preural 3 y estás a la vez son más anchas que las espinas del centro preural 4 (Fig. 2). La espina hemal 2 (h2) del centro preural 2 es ancha y de forma rectangular en T. portillorum (Fig. 2C); mientras que, en el resto de las especies, es delgada, y puede estar o no dividida (Fig. 2A, Fig. 2B, Fig. 2D). La espina neural 2 (n2) del centro preural 2 en T. portillorum es en forma de cuchillo con aserraciones en su borde anterior (Fig. 2C); mientras que, en el resto de las especies, no se presentan aserraciones (Fig. 2A, Fig. 2B, Fig. 2D).
Existen cartílagos radiales grandes (r) entre las espinas neurales y hemales de los centros preurales 4-5 (Fig. 1); por lo general, hay una serie de pequeños cartílagos accesorios adyacentes a los cartílagos radiales.
Radios caudales: La aleta caudal es una estructura compleja, derivada de la fusión la placa hipural y del centro ural, que sostienen los radios principales y procurrentes, formando un solo lóbulo (Fig. 1). Los radios principales se adhieren a los extremos distales de la placa hipural, el epural, el paripural y a las espinas neural 2 y hemal 2. Los radios procurrentes superiores e inferiores están en contacto con las espinas neurales y hemales, y a los cartílagos interhemales e interneurales de las espinas 3, 4 y 5 (Fig. 1).
Los elementos de la aleta caudal se resumen en la Tabla 1. Los radios principales varían de 18-21 en T. candalarius a 21-22 en T. hildebrandi. Los radios procurrentes (dorsales y ventrales) van de 7 a 9 en dos especies (T. portillorum y T. candalarius); mientras que en T. hildebrandi se presentó el mayor número de estos elementos caudales. El total de radios caudales fueron más numerosos en T. hildebrandi que en el resto de las especies; estas diferencias observadas fueron estadísticamente significativas (F = 10.58, p < 0.0001).
Tabla 1 Número de radios caudales principales y procurrentes en Tlaloc. / Table 1. Number of main and procurrent caudal rays in Tlaloc.
| n | Radios principales | Radios procurrentes | Radios totales | |||
| Dorsal | Ventral | |||||
| T. hildebrandi | 6 | 21-22 (22) | 8-10 (9) | 8-10 (9) | 38-41 | 39.5 ± 1.048 |
| T. portillorum | 7 | 20-22 (20) | 7-9 (7) | 7-9 | 33-37 (37) | 35.8 ± 1.345 |
| T. labialis | 7 | 20-22 (21) | 6-8 | 7-9 (8) | 34-40 (33) | 36.0 ± 0.707 |
| T. candalarius | 16 | 18-21 (20) | 7-9 (7) | 7-9 (7) | 32-38 (34) | 35.0 ± 2.112 |
Entre paréntesis se registran los valores modales; es el promedio de los radios totales, ± una desviación estándar. / The modal values are recorded in parentheses; is the average of the total rays, 1 ± Standard Deviation.
Columna vertebral: La columna vertebral, en las especies de Tlaloc está formada por una serie de vértebras abdominales (A) y vértebras caudales (C) (Fig. 3). Cada vértebra abdominal se compone por su parte dorsal de un arco y espina neural (Fig. 4A), mientras que por la parte ventral llevan costillas y huesos epipleurales (Fig. 3); la primera vértebra carece de costilla y solo lleva el hueso epipleural; los centros vertebrales abdominales 2-5 (ns 2-5) soportan espinas neurales expandidas; mientras que el resto de los centros vertebrales abdominales llevan arcos neurales en forma de espina (ns 6-16); la última vértebra abdominal lleva una costilla de menor tamaño que el resto (Fig. 3). Las vértebras caudales están formadas por un centro preural, las cuales presentan una postzigapophysis dorsal y ventral, con arcos y espinas neurales y hemales (Fig. 4B).
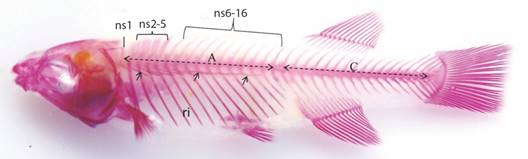
Fig. 3 Columna vertebral de las especies de Tlaloc. Se ilustran vértebras abdominales (A) y vértebras caudales (C) de T. candalarius. ns, espina neural (1-16); ri, costillas; las flechas señalan los huesos epipleurales. / Fig. 3. Backbone of species of Tlaloc. Abdominal vertebrae (A) and caudal vertebrae (C) of T. candalarius are illustrated. ns, neural spine (1-16); ri, ribs; arrows indicate epipleural bones.
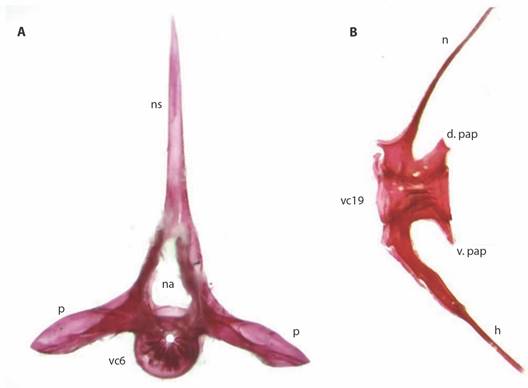
Fig. 4 Vértebras de T. labialis. A. Vértebra abdominal (vc6), B. Vértebra caudal (vc19). Abreviaciones: p, parapophysis; na, arco neural; n, espina neural; h, espina hemal; vc6, centro vertebral 6; vc 19, centro vertebral 19. / Fig. 4. T. labialis vertebrae. A. Abdominal vertebrae (vc6), B. caudal vertebrae (vc19). Abbreviations: p, parapophysis; na, neural arch; n, neural spine; h, haemal spine; vc6, vertebral centrum 6; vc19, vertebral centrum 19.
El número total de vértebras, incluyendo el centro vertebral (Cc), en las cuatro especies de Tlaloc varió de 33 a 38, de las cuales 15-17 fueron vértebras abdominales y 17-21 vértebras caudales (Tabla 2). T. portillorum presentó el menor número de vértebras totales (33), comparada con el resto de las especies (F = 137, p < 0.001). T. portillorum y T. candalarius mostraron los valores más bajos de vértebras caudales (17-18 y 17-19, respectivamente); mientras que en T. hildebrandi y T. labialis las vértebras caudales fueron más numerosas (20-21); estas diferencias observadas fueron estadísticamente significativas (F = 172.2, p < 0.001). Las vértebras abdominales fueron más numerosas en T. labialis (17) que el resto de las especies (F = 23.92, p < 0.001).
Tabla 2 Número of vértebras en las especies del género Tlaloc. / Table 2. Number of vertebrae in the species of the genus Tlaloc.
| Especies | n | Vértebras abdominales | Vértebras caudales | Vértebras totales | ||||||||||||||
| 15 | 16 | 17 | 17 | 18 | 19 | 20 | 21 | 33 | 34 | 35 | 36 | 37 | 38 | |||||
| T. portillorum | 9 | 6 | 3 | 15.3 (0.500) | 3 | 6 | 17.6 (0.500) | 9 | 33.0 | |||||||||
| T. hildebrandi | 6 | 3 | 3 | 15.5 (0.547) | 6 | 21 | 3 | 3 | 36.5 (0.548 | |||||||||
| T. labialis | 11 | 11 | 17 | 9 | 2 | 20.1 (0.404) | 9 | 2 | 37.2 (0.405) | |||||||||
| T. candalarius | 18 | 1 | 10 | 7 | 16.3 (0.594) | 1 | 16 | 1 | 18.8 (1.350) | 2 | 9 | 7 | 34.3 (0.669) | |||||
Entre paréntesis se registran los valores de la desviación estándar (1 ±). / In parentheses 1 ± Standard Deviation.
Discusión
La osteología del complejo caudal y los elementos de la columna vertebral de las cuatro especies del género Tlaloc, se describen y comparan por primera vez. Los Cyprinodontiformes se diagnostican inequívocamente por la presencia de un hueso epural único en forma de cuchilla y por los radios principales continuos en las placas hipurales superior e inferior de la aleta caudal (Costa, 2012). Las cuatro especies del género Tlaloc analizadas en el presente estudio, presentaron estas estructuras bien delimitadas, el hueso epural alargado y en forma de cuchillo y la presencia de numerosos radios principales arreglados de manera continua en la placa hipural fusionada.
Parenti (1981), consideró en la diagnosis y descripción del género Profundulus (Tlaloc + Profundulus) que la placa hipural está ligeramente dividida en la parte media. La placa hipural superior e inferior en las cuatro especies del género Tlaloc, se observó que está parcialmente fusionada y presenta una ranura conspicua en la parte medial anterior (ocasionalmente en la parte posterior) de la placa hipural, que divide la parte superior e inferior de la placa. Costa (2012), describió y comparó el complejo caudal en Cyprinodontiformes y señaló que las placas superiores e inferiores, de la familia Profundulidae están parcialmente fusionadas (parte anterior sin fusionar, parte posterior fusionada); este carácter se observó en las cuatro especies de Tlaloc.
En términos generales, la comparación del esqueleto caudal en las cuatro especies del género Tlaloc, reveló un patrón muy similar en la morfología de las especies; sin embargo, se detectaron algunos caracteres que pueden ser de utilidad para la discriminación de las especies del género; la placa hipural de forma típicamente triangular es un carácter que solamente se presentó en T. labialis, mientras que en el resto de las especies (T. candalarius, T. portillorum y T. hildebrandi), la placa hipural es en forma de abanico. Gosline (1963) caracterizó el esqueleto caudal de los Cyprinodontiformes por la presencia de una placa hipural en forma de abanico, formado por la fusión de la vértebra terminal e hipurales (Gosline, 1961).
Una condición única que ocurre en todos los Cyprinodontiformes es la presencia de una espina neural ancha del centro preural 2, la cual es más ancha que las espinas neurales anteriores (n 3-5) (Costa, 2012). La espina neural de la vértebra preural 2 (P2), en las cuatro especies del género Tlaloc es de forma típica como lo describe Costa (2012); sin embargo, esta estructura puede ser utilizada como un carácter informativo para la delimitación de especies, ya que en T. portillorum la espina neural 2 (n2) es en forma de cuchillo con presencia de aserraciones en su borde anterior, mientras que en el resto de las especies no se presentan.
El recuento de los radios de la aleta caudal es un carácter ampliamente utilizado en la descripción e identificación de teleósteos (McDowall, 2010). Arratia (2008), distingue los radios de la aleta caudal en radios principales y radios procurrentes. En las especies del género Tlaloc el conteo de los radios nos permitió discriminar a T. hildebrandi, del resto de las especies, por la presencia de un mayor número de radios caudales totales; mientras que los radios principales nos permiten separar a T. labialis de T. candalarius. Los radios principales han sido utilizados en los análisis comparativos de las especies del género Tlaloc (Domínguez-Cisneros et al., 2023; Matamoros et al., 2012), con resultados muy similares; sin embargo, el análisis diferenciado de los radios (principales y procurrentes), es un aporte novedoso en el presente trabajo, útil en la caracterización y delimitación de las especies del género Tlaloc.
La columna vertebral, ha sido considerada como una fuente de información para interpretar la sistemática y relaciones filogenéticas de los peces actinopterigios (Arratia & Schultze, 1992; Purrafee et al., 2020); asimismo, el cambio en el número vértebras es uno de los patrones más comunes de divergencia en la forma del cuerpo en los peces, la cual está asociada con el papel de la columna vertebral en la flexión del cuerpo durante la natación (Brainerd & Patek, 1998; Nowroozi et al., 2012). Existen variaciones en el número de vértebras registradas en las especies del género Tlaloc, en el presente estudio; lo anterior nos permitió separar a T. portillorum, por el menor número de vértebras totales con relación a T. hildebrandi y T. labialis; mientras que el conteo de vértebras caudales nos permite discriminar a T. labialis de T. candalarius. El recuento de las vértebras totales ha sido utilizado en la separación de especies del género Tlaloc (Domínguez-Cisneros et al., 2023; Miller et al., 2005); sin embargo, el análisis diferenciado de las vértebras (caudales y abdominales), se presentan como elementos nuevos, útiles en la caracterización y delimitación de las especies del género.
Los resultados son consistentes con los estudios moleculares de los peces profundúlidos (Calixto-Rojas et al., 2021; Domínguez-Cisneros, 2023; Morcillo et al., 2016); sin embargo, se ha cuestionado la validez taxonómica de T. candalarius con relación a T. labialis, su especie hermana; debido a la poca variación genética encontrada entre este complejo de especies (Calixto-Rojas et al., 2021; Domínguez-Cisneros, 2023); por lo que se ha sugerido sinonimizarlas.
Con base en los resultados del presente estudio, se sugiere mantener la validez de T. candalarius, ya que los elementos de la columna vertebral, como es el número de vértebras caudales y totales permiten discriminar a ambas especies; así mismo las características del complejo caudal, como son un mayor número de radios principales caudales contra un menor número de estos elementos, permiten separar a ambas especies; la placa hipural en forma triangular es un carácter que solamente se presentó en T. labialis; mientras que en T. candalarius es la forma típica de abanico. Costa (2012) describió variaciones respecto a la morfología y fusión de placa hipural, en los ciprinodontoides, y señaló la importancia de este carácter en la filogenia de los Cyprinodontiformes.
Basado en las observaciones morfológicas sobre los elementos de la columna vertebral y el complejo caudal en las especies del género Tlaloc, se encontraron algunos caracteres, tales como el número de vértebras caudales y totales, el número de radios principales de la aleta caudal, la forma de la placa hipural y la presencia aserraciones en la espina neural del centro preural 2, que pueden ser utilizados como caracteres disponibles para la identificación de los profundúlidos del género Tlaloc.
Declaración de ética: los autores declaran que todos están de acuerdo con esta publicación y que han hecho aportes que justifican su autoría; que no hay conflicto de interés de ningún tipo; y que han cumplido con todos los requisitos y procedimientos éticos y legales pertinentes. Todas las fuentes de financiamiento se detallan plena y claramente en la sección de agradecimientos. El respectivo documento legal firmado se encuentra en los archivos de la revista.

