




 Espanhol (pdf)
 Artigo em XML
 Referências do artigo

 Tradução automática
 Enviar este artigo por email
 Citado por SciELO
 Similares em
SciELO
 uBio

 Permalink


Introducción
La diversidad de peces de la cuenca del río Tuira y áreas adyacentes, ha sido estudiada desde finales del siglo XIX (Breder, 1925; Breder, 1927; Festa, 1909; Garcés & García, 2007; Loftin, 1965; Meek & Hildebrand, 1913). La mayoría de estos estudios se han centrado en la generación de inventarios, estimación de riqueza y diversidad de los peces de agua dulce allí encontrados. Sin embargo, para la adecuada gestión y manejo se requiere una mejor comprensión de la distribución de especies a nivel espacial, así como la relación de los distintos hábitats del humedal con las comunidades de peces.
La laguna de Matusagaratí está conformada por distintos tipos de hábitats y condiciones ambientales que se caracterizan por su alta variabilidad espacio-temporal (Carol et al., 2020), y la recepción de aportes hídricos de diversas fuentes, entre ellas, el pulso de inundación del río Tuira, lluvias, flujo de las mareas y riachuelos que drenan la cuenca de Filo del Tallo (Carol et al., 2022). A partir del conocimiento de la hidrología del humedal laguna de Matusagaratí es posible discernir al menos tres hábitats interconectados, pero lo suficientemente delimitados en su estructura como para identificarlos espacialmente (i) corredor fluvial del río Tuira, (ii) lagunetas temporales y permanentes dispersas en la planicie de inundación y (iii) riachuelos y quebradas provenientes de la serranía de Filo del Tallo que irrigan la planicie.
En este contexto, se plantea la hipótesis de que las características físicoquímicas e hidrológicas de los mesohábitats que conforman el sistema de humedales Laguna de Matusagaratí, determinan la estructura de las comunidades ícticas. Por ello se propuso determinar y comparar la estructura de los ensamblajes ícticos en los tres hábitats acuáticos discernibles entre el margen occidental del río Tuira y el humedal Laguna de Matusagaratí.
Materiales y métodos
Área de estudio: La cuenca del río Tuira cubre un área aproximada de 9 000 km2 y presenta una extensa llanura aluvial en la cuenca media y baja. Esta llanura de inundación contiene un complejo de herbazales inundables, lagunas permanentes y temporales que reciben las aguas de la lluvia y de pequeños riachuelos y quebradas que drenan de la cordillera de Filo del Tallo en su margen oriental. En su totalidad el humedal de Matusagaratí, que se desarrolla en la planicie inundable, cubre aproximadamente 560 km2 (Candanedo & Ibañez, 2020) y delimita el extremo norte de la región biogeográfica del Chocó, en la provincia de Darién, Panamá. El área de estudio se encuentra dentro de la región de clima tropical de sabana (Awi), que presenta un periodo seco (diciembre-abril) definido que puede prolongarse hasta por seis meses, con una precipitación anual menor a los 2 500 mm, y en donde la temperatura promedio fluctúa entre 21.6 a 24.0 ºC (MIAMBIENTE, 2016).
El área de muestreo incluyó el corredor fluvial del río Tuira, y lagunetas y riachuelos de la planicie inundable (Fig. 1). El área de estudio comprende 320 km2, lo que representa aproximadamente el 40 % de la superficie del complejo del humedal de Matusagaratí. En total se muestrearon 29 sitios, ocho de los cuales corresponden al hábitat del corredor fluvial del río Tuira, 15 a quebradas y riachuelos, y seis ubicados en lagunetas temporales distribuidas en la planicie inundable del humedal Laguna de Matusagaratí (Tabla 1) con diversas técnicas de muestreo por hábitat (Fig. 2).
Tabla 1 Sitios muestreados en el humedal Laguna de Matusagaratí, marzo 2022 a septiembre 2023. / Table 1. Sampled sites at Laguna de Matusagaratí wetland, March 2022 to September 2023.
| Sitio | Localidad | Hábitat | Lat. | Long. |
| 1 | Aserrío | Corredor fluvial | 7°44’29.14” N, | 77°8’28.23” W |
| 1 | Aserrío | 7°44’29.26” N, | 77°8’28.18” W | |
| 2 | Boca de El Real | 7°45’24.63” N | 77°6’26.02” W | |
| 2 | Boca de El Real | 7°45’25.03” N | 77°6’27.66” W | |
| 3 | Estero_río_Iglesias/Toletí | 7°52’51.59” N | 76°56’47.44” W | |
| 4 | Juanacatí | 7°43’52.62” N | 77°9’39.23” W | |
| 4 | Juanacatí | 7°43’55.25” N | 77°9’37.48” W | |
| 4 | Juanacatí | 7°43’53.42” N | 77°9’45.67” W | |
| 4 | Juanacatí | 7°43’54.84” N | 77°9’43.66” W | |
| 4 | Juanacatí | 8°27’43.90” N | 73°40’45.03” W | |
| 5 | Mamey | 7°46’38.10” N | 77°5’32.37” W | |
| 6 | Piriaque | 7°46’8.37” N | 77°8’1.15” W | |
| 6 | Piriaque | 7°46’10.50” N | 77°7’58.13” W | |
| 6 | Piriaque | 7°44’16.30” N | 77°9’24.44” W | |
| 7 | Real viejo | 7°44’ 17.67” N | 77°8’36.60” W | |
| 7 | Real viejo | 7°44’ 17.99” N | 77°8’35.55” W | |
| 8 | Sumacate | 7°47’29.53” N | 77°5’7.67” W | |
| 8 | Sumacate | 7°47’29.93” N | 77°5’7.64” W | |
| 8 | Sumacate | 7°47’34.60” N | 77°5’5.16” W | |
| 8 | Sumacate | 7°47’34.61” N | 77°5’5.21” W | |
| 9 | Laguneta Matusagaratí | Lagunetas | 7°52’43.54” N | 76°57’55.10” W |
| 10 | Laguneta_1 | 7°53’59.39” N | 76°55’34.60” W | |
| 11 | Laguneta_2 | 7°54’0.52” N | 76°55’26.86” W | |
| 12 | Laguneta_3 | 7°53’59.96” N | 76°55’30.90” W | |
| 13 | Laguneta_4 | 7°54’12.62” N | 76°57’6.18” W | |
| 14 | Laguneta con herbazales | 7°54’25.76” N | 76°56’14.55” W | |
| 15 | Afluente Tulivieja | Ríos y riachuelos de la planicie inundable | 7°52’29.95” N | 76°52’42.42” W |
| 16 | Aguas Calientes | 7°54’27.78” N | 76°56’6.14” W | |
| 17 | Aguas Calientes A | 7°54’28.69” N | 76°56’0.58” W | |
| 18 | Aguas Calientes B | 7°54’28.59” N | 76°56’0.72” W | |
| 19 | Aguas Calientes C | 7°54’28.03” N | 76°56’2.75” W | |
| 20 | Aguas Calientes_medio | 7°54’28.48” N | 76°56’4.54” W | |
| 21 | Quebrada Agustín_abajo | 7°52’36.05” N | 76°53’9.74” W | |
| 22 | Quebrada Agustín_arriba | 7°52’39.16” N | 76°52’47.95” W | |
| 23 | Quebrada Agustín_medio | 7°52’37.21” N | 76°52’59.10” W | |
| 24 | Quebrada Conejo | 7°52’35.59” N | 76°53’10.86” W | |
| 25 | Afluente_Quebrada Conejo | 7°52’36.84” N | 76°53’2.16” W | |
| 26 | Quebrada Tulivieja | 7°52’32.43” N | 76°53’41.67” W | |
| 27 | Río Arusa | 7°54’12.73” N | 76°56’44.81” W | |
| 28 | Río Iglesias | 7°55’4.42” N | 76°59’26.35” W | |
| 29 | Canales del Piriaque | 7°45’37.94” N | 77°7’44.23” W |
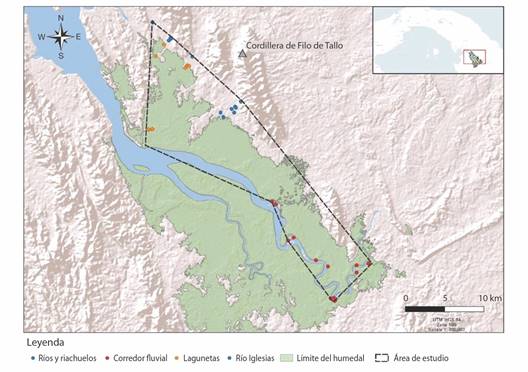
Fig. 1 Sitios muestreados por tipo de hábitat en el humedal Laguna de Matusagaratí (Fuente: modificado de Candanedo & Ibañez, 2020). / Fig. 1. Sample sites by habitat type at Laguna de Matusagaratí wetland (Source: mod. Candanedo & Ibañez, 2020).
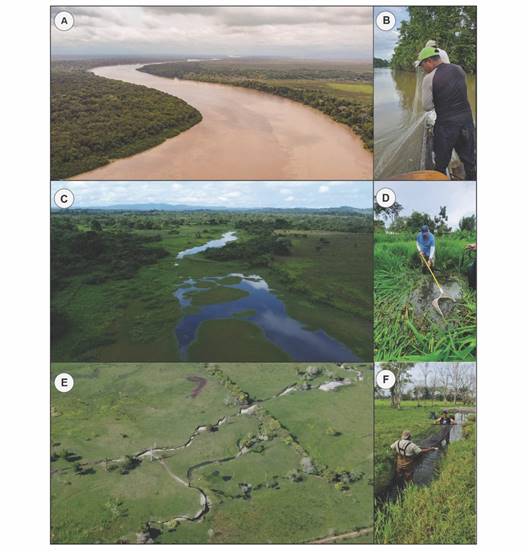
Fig. 2 Hábitats y técnicas de muestreo. A.-B. Corredor fluvial del río Tuira y método de muestreo con trasmallo, C.-D. Lagunetas y método de muestreo con red de mano, E.-F. Riachuelos y método de muestreo con chinchorro (fotos S. Valdés). / Fig. 2. Sampling techniques and habitats. A.-B. Tuira River corridor and trammel net sampling method, C.-D. Ponds and hand net sampling method, E.-F. Streams and hammock sampling method (photos S. Valdés).
Metodología de campo: Los muestreos se realizaron durante el periodo comprendido entre el 26 de marzo de 2022 al 18 septiembre de 2023, distribuidos de manera que estuvieran representadas las condiciones de los periodos de inundación y estiaje, según se presenta en la Tabla 2. En cada sitio se aplicó un muestreo multihábitat, utilizando artes de pesca adecuadas a cada biotopo (Deacon et al., 2017; Puerta-Piñero et al., 2014). En el cauce del río Tuira se usaron trasmallos (40 x 4.5 m, ojo de malla de 6 cm) durante periodos de 1 h y galandros o líneas de 100 anzuelos con carnada de anguila de barro troceada (Gobioides peruanus) durante periodos de 1 h. Las orillas del cauce fueron muestreadas con redes de mano, atarrayas (diámetro = 5 m, malla de 5 mm) y chichorros (4.0 x 1.20 m x 10.00 mm).
Tabla 2 Fecha condición climática, valor medio y desviación estándar de variables físicas y químicas durante la fase de colecta de datos en humedal Laguna de Matusagaratí, marzo 2022 a septiembre 2023. / Table 2. Date, climatic condition, physical and chemical variables mean value and standard deviation during the data collection phase at Laguna de Matusagaratí wetland, March 2022 to September 2023.
| Fecha | Año | Paisaje | Condiciones climáticas | pH | Sólidos disueltos totales | Temperatura (°C) | Conductividad (mS/cm) |
| 26-29/03 | 2022 | Corredor fluvial | seca | 7.35 ± 0.17 | 9 814 ± 324 | 27.5 ± 2.06 | 20.5 ± 2.00 |
| 27/03 | 2022 | Lagunetas | seca | 7.62 ± 0.00 | 1 938 ± 0.0 | 31.9 ± 0.00 | 3.87 ± 0.00 |
| 22-25/06 | 2022 | Corredor fluvial | lluviosa | 7.11 ± 0.44 | 92.27 ± 14 | 27.9 ± 1.81 | 0.18 ± 0.03 |
| 17-21/12 | 2022 | Riachuelos | lluviosa | 7.93 ± 0.53 | 151 ± 43 | 26.6 ± 1.08 | 0.30 ± 0.09 |
| 21-23/03 | 2023 | Corredor fluvial | seca | 7.76 ± 0.21 | 4 014 ± 4 202 | 31.6 ± 0.99 | 8.08 ± 8.40 |
| 13-15/07 | 2023 | Corredor fluvial | lluviosa | 7.55 ± 0.41 | 107 ± 67 | 29.4 ± 0.29 | 0.21 ± 0.14 |
| 15-18/09 | 2023 | Lagunetas | seca | 6.29 ± 0.17 | 62.58 ± 29 | 28.9 ± 0.22 | 0.12 ± 0.06 |
| 15-18/09 | 2023 | Riachuelos | seca | 7.77 ± 0.13 | 899 ± 76 | 28.3 ± 0.26 | 1.80 ± 0.83 |
Las variables de potencial de hidrógeno (pH), temperatura (°C) y sólidos disueltos totales (STD) fueron medidas con multiparámetro portátil, marca Hanna, modelo HI98194. Los pequeños riachuelos y lagunetas solo pudieron ser muestreados durante el inicio de la temporada lluviosa, se establecieron tramos de 100 m que fueron muestreados con el uso de redes de mano, chichorros y/o electropesca. Para la electropesca se utilizó un equipo marca Smith-Root, modelo Apex, aplicando una forma de onda senoidal de entre 100 a 250 V, ciclo de trabajo al 12 % y frecuencia de salida de 30 Hz para una potencia de salida entre 100 a 200 W. Las pozas de riachuelos y quebradas y las lagunetas fueron muestreadas con electropesca en áreas con profundidad menor a 30 cm y con redes de mano, atarrayas y chinchorros en zonas más profundas por periodos de 30 min.
Los peces capturados fueron identificados in situ con la ayuda de guías de campo (Autoridad de los Recursos Acuáticos de Panamá [ARAP], 2011; González, 2021) o aplicando las claves taxonómicas en el laboratorio (Bussing, 1987; Maldonado-Ocampo et al., 2012; Valdés-Díaz, 2020). Los especímenes fueron medidos, pesados y posteriormente devueltos al cauce o anestesiados con MS222, fijados en solución de formalina al 10 % para su identificación en laboratorio.
Análisis de datos: El análisis de diversidad de especies se realizó con el software R (R Core Team, 2023). La frecuencia relativa de especies por hábitat se calculó a partir del número de individuos de cada especie y su relación con el total de individuos registrados por hábitat utilizando el paquete Vegan (Oksanen, 2017), además se generaron las curvas de rarefacción y serie de Hill o diversidad real para cada comunidad a partir del paquete iNEXT (Chao et al., 2014; Hsieh et al., 2016).
El análisis del ensamblaje de la comunidad de peces se realizó aplicando el método de ordenación de escalamiento multidimensional no métrico (NMDS) utilizando el índice de similitud de Bray-Curtis. El análisis de similitudes de una vía (Anosim) se usó para determinar si los ensamblajes de peces fueron significativamente diferentes.
Se realizó un análisis de especies indicadoras mediante el método de Dufrêne y Legendre (1997). Para ello se utilizó el paquete ‘indicspecies’ de R (De Caceres & Jansen, 2023) el cual se sustenta en la abundancia de las especies en cada hábitat (fidelidad) y las veces que estas se encuentran en los diferentes hábitats evaluados (especificidad). Para ello se calcula el índice IndVal por especie para cada hábitat y se evalúa su significación estadística, este índice permitió identificar especies como indicadoras ecológicas potenciales en los hábitats del humedal evaluados (McGeoch et al., 2002).
Relación entre las variables ambientales y la ictiofauna: Para evaluar si las variables fisicoquímicas (TDS, pH, temperatura y conductividad) influyeron en la estructura de los ensamblajes, se hizo el análisis de redundancia (RDA) (Borcard et al., 2018) acompañado de un análisis de varianza (ANOVA) ajustado para el RDA, con el fin de evaluar la significación entre la frecuencia absoluta de las especies con las variables ambientales.
Para seleccionar las variables ambientales con una relación significativa con las frecuencias, se aplicó la selección hacia adelante con doble criterio de selección (Blanchet et al., 2008), la cual utiliza el conjunto completo de coordenadas principales del RDA. Las frecuencias totales fueron estandarizadas con el método de Hellinger (Legendre & Gallagher, 2001), y se aplicó transformación logarítmica de base 10 a las variables fisicoquímicas.
Para seleccionar las variables explicativas que más contribuyen a la ordenación se calculó el valor VIF (Factor de Inflación de la Varianza). Por último, se hizo un análisis de significación (p < 0.05) para cada variable mediante un ANOVA vinculado a una prueba de permutación (1 000) del RDA con la función Anova utilizando el paquete Vegan (Oksanen, 2017).
Resultados
Diversidad de peces del humedal de Laguna de Matusagaratí: Se colectó un total de 1 913 individuos pertenecientes a 50 especies de peces y 27 familias. El hábitat con mayor riqueza de especies fue el corredor fluvial del río Tuira con 35 especies observadas, seguido de los riachuelos de la planicie inundable con 23 especies, la menor riqueza se registró en las lagunas temporales del humedal de Laguna de Matusagaratí con nueve especies (Tabla 3).
Tabla 3 Abundancia, riqueza observada, y completitud del muestreo en cada hábitat del humedal Laguna de Matusagaratí, marzo 2022 a septiembre 2023. / Table 3. Abundance, observed richness and completeness of sampling in each habitat at Laguna de Matusagaratí wetland, March 2022 to September 2023.
| Comunidad | Abundancia | Riqueza observada | Completitud |
| Corredor fluvial | 537 | 35 | 0.9889 |
| Lagunetas | 136 | 9 | 0.9855 |
| Riachuelos | 1 238 | 23 | 0.9976 |
La curva de rarefacción indica que se alcanzó la asíntota en todas las comunidades ícticas con índice de completitud (Sample Completeness) de 0.98 a 0.99 (Tabla 3), sugiriendo que el muestreo fue representativo en todos los hábitats muestreados. Los principales índices de diversidad, expresados como diversidad real utilizando la serie de Hill se presentan en la Tabla 4.
Tabla 4 Principales índices de diversidad real (Serie de Hill) para los hábitats del humedal Laguna de Matusagaratí. / Table 4. Main real diversity índices (Hill Series) for the habitats at Laguna de Matusagaratí wetland.
| Comunidad | Diversidad | Observada | Estimación | DE | LCI 95 % | LCS95 % |
| Corredor fluvial | Riqueza | 35.00 | 38.59 | 11.25 | 35.00 | 60.64 |
| Corredor fluvial | Diversidad de Shannon | 13.16 | 13.67 | 0.86 | 11.99 | 15.35 |
| Corredor fluvial | Diversidad de Simpson | 6.76 | 6.83 | 0.60 | 5.66 | 8.01 |
| Lagunetas | Riqueza | 9.00 | 9.99 | 1.26 | 9.00 | 12.46 |
| Lagunetas | Diversidad de Shannon | 2.66 | 2.76 | 0.34 | 2.09 | 3.43 |
| Lagunetas | Diversidad Simpson | 1.66 | 1.66 | 0.16 | 1.34 | 1.98 |
| Ríos y riachuelos | Riqueza | 23.00 | 27.50 | 4.78 | 23.00 | 36.87 |
| Ríos y riachuelos | Diversidad de Shannon | 9.25 | 9.35 | 0.31 | 8.74 | 9.97 |
| Ríos y riachuelos | Diversidad de Simpson | 6.23 | 6.25 | 0.26 | 5.75 | 6.76 |
DE: Desviación Estándar, LCI: Límite de confianza inferior a 95 %, LCS: Límite de confianza superior a 95 %. / DE: Standard Deviation, LCI: Confidence limit less than 95 %, LCS: Confidence limit greater than 95 %.
La mayor riqueza (q0) y diversidad de especies frecuentes (q1) y abundantes (q2) se registró en el corredor fluvial del río Tuira (Fig. 3). Los intervalos de confianza de las curvas de interpolación y extrapolación no se traslapan lo que sugiere que existen diferencias significativas en la riqueza de peces en cada comunidad, con excepción de igual número de especies dominantes en la comunidad del corredor fluvial del río Tuira y los riachuelos de la planicie inundable.
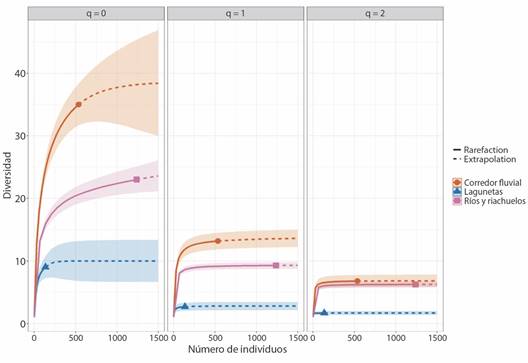
Fig. 3 Diversidad de orden q0 (riqueza de especies), q1 (número efectivo de especies) y q2 (especies dominantes) en los hábitats del humedal Laguna de Matusagaratí. / Fig. 3. Diversity of order q0 (richness of species), q1 (effective number of species) and q2 (dominant species) in the habitats at Laguna de Matusagaratí wetland.
La riqueza del corredor fluvial del río Tuira se estimó en 39 ± 11 especies, condición que se aproxima a la riqueza observada de 35 especies. De éstas, seis son especies muy frecuentes o dominantes. La comunidad menos diversa está presente en las lagunetas temporales dispersas en la planicie de inundación del río Tuira, con una estimación de 10 especies y una de ellas dominante. La comunidad íctica de los riachuelos que drenan a la planicie inundable estuvo conformada por 23 especies, no obstante, se estima su riqueza en 27 ± 4 especies, con seis especies igual de frecuentes o dominantes (Tabla 4).
Frecuencia relativa de especies y familias en función del hábitat: Los peces Astyanax panamensis (Characidae) y Poecilia caucana (Poeciliidae) fueron los más frecuentes, y cuando se analiza el conjunto de datos representan el 20 y 19 % de las recolectas, respectivamente, totalizando aproximadamente el 39 % de las capturas. Las familias con mayor diversidad taxonómica fueron: Ariidae y Characidae con siete y seis especies cada una. Las familias Auchenipteridae, Sternopygidae y Eleotridae estuvieron representadas por dos especies cada una y las otras 16 familias estuvieron representadas por una sola especie cada una (Fig. 4). El análisis de diversidad en función del hábitat permitió identificar patrones de riqueza y frecuencia relativa de especies. El corredor fluvial del río Tuira presentó la mayor diversidad filogenética con 21 familias, de las cuales fueron dominantes Auchenipteridae, Ariidae y Sternopygidae, donde la especie Ageneiosus pardalis representó más del 35 % de las capturas, seguido de Cathorops tuyra y Sternopygus aequilabiatus con cerca del 10 % cada una.
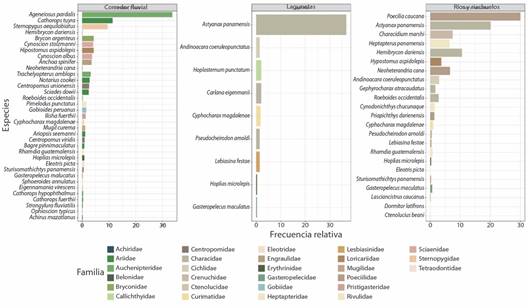
Fig. 4 Frecuencia relativa de especies distribuidas por comunidad y familia del humedal Laguna de Matusagaratí, marzo 2022 a septiembre 2023. / Fig. 4. Relative frequency of species distributed by community and family at Laguna de Matusagaratí wetland, March 2022 to September 2023.
La comunidad de las lagunetas temporales de la planicie inundable estuvo conformada por especies pertenecientes a siete familias, con dominancia de la sardina Astyanax panamensis y presencia de los carácidos Carlana eigenmanni y Pseudocheirodon arnoldi. La ictiofauna de los riachuelos y quebradas que irrigan la planicie inundable del humedal Laguna de Matusagaratí se compone de 23 especies distribuidas en 13 familias, de las cuales Characidae contiene la mayor diversidad con cinco especies, de estas Astyanax panamensis y Hemibrycon dariensis fueron las especies más frecuentes de esta familia en este hábitat. La familia Poeciliidae estuvo representada por tres especies de las cuales Poecilia caucana constituye el 30 % del total de las capturas en este hábitat, seguida de Neoheterandria cana con aproximadamente 7 % de la frecuencia relativa de captura.
Estructura de las comunidades: El análisis NMDS soporta la identificación de tres ensamblajes: (1) comunidad de peces del corredor fluvial del río Tuira, (2) comunidad de peces de los riachuelos de la planicie de inundación y (3) comunidad de peces de las lagunetas, indicando que la diferencia entre estos grupos es aceptable (stress = 0.06). Los resultados del análisis ANOSIM indican que las diferencias en la composición de los ensamblajes determinados por NMDS fueron significativas (R = 0.554, p = 0.0001), el ensamblaje del corredor fluvial del río Tuira presentó diferencias muy evidentes respecto a los dos restantes (Fig. 5).
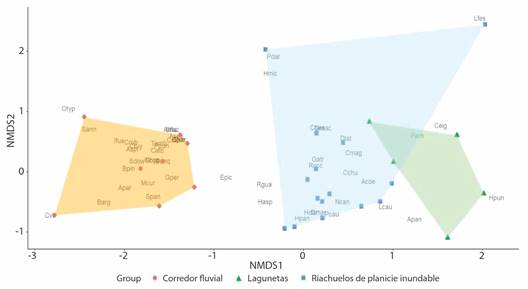
Fig. 5 Análisis NMDS a partir de una matriz de similitud del coeficiente Bray-Curtis del ensamblaje de peces del humedal Laguna de Matusagaratí, marzo 2022 a septiembre 2023. / Fig. 5. NMDS análisis from a similarity matrix of the Bray-Curtis coefficient of the fish assemblage at Laguna de Matusagaratí wetland, March 2022 to September 2023.
De las 50 especies observadas durante este estudio, 37 estuvieron asociadas de forma exclusiva a un solo hábitat y tres (Hoplias microlepis, Gasteropelecus maculatus y Cyphocharax magdalenae) formaron parte de las tres comunidades estudiadas). El análisis de especies indicadoras, cuyos resultados se presentan en la Tabla 5, determinó la influencia y significancia de las especies Ageneiosus pardalis y Brycon argenteus (IndVal = 0.935) como las principales contribuyentes a las diferencias entre el ensamble del corredor fluvial del río Tuira y las otras dos comunidades. Otras especies cuya presencia influyen en la caracterización del ensamble del río Tuira fueron Anchoa spinifer, Cathorops tuyra, Centropomus unionensis, Cynoscion albus, Ilisha fuerthii, Mugil curema, Sternopygus aequilabiatus, Cynoscion stolzmanni y Trachelyopterus amblops (IndVal > 0.60).
Tabla 5 Especies indicadoras de los hábitats de corredor fluvial del río Tuira, lagunetas y riachuelos de planicie del humedal Laguna de Matusagaratí. Valores de Indicación (IndVal) estadísticamente significativos se presentan en negrita. / Table 5. Indicator species of habitats from Tuira River corridor, lagoons and streams from plain at Laguna de Matusagaratí wetland. Statistically significant Indication Values (IndVal) are presented in bold.
| Especies indicadoras | Corredor Fluvial | Lagunetas | Ríos y riachuelos |
| Ageneiosus pardalis | 0.935 | 0.000 | 0.000 |
| Brycon argenteus | 0.935 | 0.000 | 0.000 |
| Anchoa spinifer | 0.866 | 0.000 | 0.000 |
| Cathorops tuyra | 0.866 | 0.000 | 0.000 |
| Centropomus unionensis | 0.791 | 0.000 | 0.000 |
| Cynoscion albus | 0.707 | 0.000 | 0.000 |
| Ilisha fuerthii | 0.707 | 0.000 | 0.000 |
| Mugil curema | 0.707 | 0.000 | 0.000 |
| Sternopygus aequilabiatus | 0.707 | 0.000 | 0.000 |
| Cynoscion stolzmanni | 0.612 | 0.000 | 0.000 |
| Trachelyopterus amblops | 0.612 | 0.000 | 0.000 |
| Carlana eigenmanni | 0.000 | 0.577 | 0.000 |
| Hemibrycon dariensis | 0.045 | 0.000 | 0.810 |
| Characidium marshi | 0.000 | 0.000 | 0.775 |
| Heptapterus panamensis | 0.000 | 0.000 | 0.730 |
| Neoheterandria cana | 0.053 | 0.000 | 0.683 |
La especie Carlana eigenmanni fue la especie que más aportó a las diferencias entre el ensamble de las lagunetas y los otros hábitats muestreados (IndVal = 0.577). Las diferencias entre el ensamblaje de peces de los riachuelos de la planicie inundable estuvieron influenciadas de manera significativa por las especies Hemibrycon dariensis (IndVal = 0.81), Characidium marshi, Heptapterus panamensis y Neoheterandria cana (IndVal > 0.60).
Los peces Astyanax panamensis (IndVal = 0.926, p = 0.002) y Andinoacara coeruleopunctatus (IndVal = 0.724, p = 0.035) estuvieron asociadas a los hábitats de lagunas y riachuelos de la planicie inundable. Esta asociación se explica por la conectividad hidrológica temporal entre hábitats y el carácter generalista y oportunista de ambas especies. Por otra parte, la especie Hypostomus aspidolepis estuvo asociada a las comunidades del corredor fluvial del río Tuira y a los riachuelos de la planicie inundable (Corredor fluvial + Planicie inundable IndVal = 0.725, p = 0.046). El resto de las especies no presentaron valores significativos de fidelidad ni especificidad al hábitat.
Ensamblajes de especies y variables ambientales: El ANOVA aplicado al RDA determinó que todas las variables ambientales documentadas influyeron en la estructura de los ensamblajes. Sin embargo, el método de selección hacia adelante y el cálculo del valor VIF definieron que el total de sólidos disueltos fue la variable con mayor R2 y significancia definida por las permutaciones.
El modelo RDA más parsimonioso de variables ambientales y ensamblajes de especies de peces se presenta en la Fig. 6. Los sólidos disueltos totales reflejan condiciones hidrológicas particulares de cada hábitat, siendo más frecuentes valores altos de sólidos disueltos en el corredor fluvial del río Tuira explicado por la entrada de la cuña salina, aunque en las lagunetas y algunos arroyos los sólidos disueltos pueden alcanzar valores cercanos a 1 000 mg/l-1, principalmente durante la temporada seca, es de esperar que estos valores disminuyan estacionalmente debido al incremento de la precipitación.
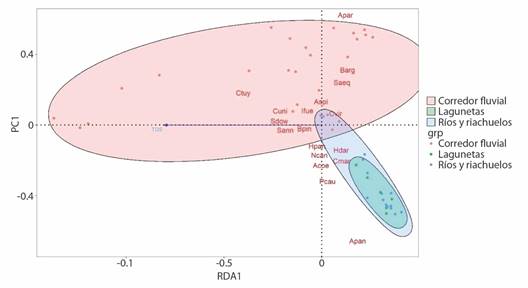
Fig. 6 Análisis RDA con las variables fisicoquímicas con mayor relación al ensamblaje de especies ícticas del humedal Laguna de Matusagaratí, marzo 2022 a septiembre 2023. / Fig. 6. RDA analysis with the physicochemical variables most closely related to the fish species assembly at Laguna de Matusagaratí wetland, March 2022 to September 2023.
Discusión
El humedal Laguna de Matusagaratí está conformado por un mosaico de hábitats interconectados por los flujos hidrológicos de aguas dulces provenientes de la lluvia, de los riachuelos que nacen en Filo del Tallo y aguas salobres resultado de la influencia mareal en el río Tuira. La variación en las condiciones hídricas, crean ambientes para el desarrollo de comunidades ícticas diferentes.
El análisis NMDS permitió distinguir tres ensambles ícticos del humedal Laguna de Matusagaratí: El ensamble del corredor fluvial del río Tuira, el de los riachuelos que drenan al humedal y de las lagunetas temporales de la planicie de inundación. Sin embargo, los eventos de muestreo de septiembre de 2023 coincidieron con un periodo de sequía atribuido a la ocurrencia de la fase negativa del fenómeno del El Niño durante los años 2022 al 2023 (Deng et al., 2023; Villarreal-Valdes, 2022), por lo que es probable que la fragmentación del hábitat por falta de conectividad hidráulica entre las lagunetas y los riachuelos expliquen las existencia de dos comunidades distintas que bajo condiciones de alta precipitación podrían comportarse como una sola.
La mayor diversidad íctica fue observada en el cauce del río Tuira, posiblemente relacionada con una mayor heterogeneidad y complejidad que se explica por la dinámica del agua en el río Tuira, determinada por la escorrentía del exceso de lluvia y la intrusión de la marea desde el estuario, causando variaciones en la salinidad a lo largo del río (Carol et al., 2022).
La comunidad de peces del corredor fluvial del río Tuira se compone principalmente de especies periféricas y secundarias que se distribuyen en un gradiente de salinidad generado por las mareas (Breder, 1927; Myers, 1949), las especies periféricas que más aportaron a diferenciar esta comunidad fueron Mugil curema, Centropomus unionensis, Cynoscion albus, Anchoa spinifer y Cathorops tuyra, todas asociadas a aguas salobres, no obstante, las especies primarias Ageneiosus pardalis, Sternopygus aequilabiatus y Brycon argenteus fueron las que mayor contribución en términos de fidelidad y especificidad al hábitat del corredor fluvial.
En contraste con el hábitat del corredor fluvial de río Tuira, la baja diversidad de las lagunetas podría estar determinado por su carácter léntico, con fondos poco profundos y lodosos, presencia de macrófitas flotantes y enraizadas y baja cobertura de la vegetación riparia, y la presencia de potreros que llegan hasta el mismo borde de las lagunetas. Condiciones similares a las observadas en las lagunetas de la planicie inundable de Matusagaratí han sido registradas en Colombia, en donde es usual encontrar ensamblajes de poca diversidad íctica, dominados por especies nectónicas y oportunistas (Ospina et al., 2021). La comunidad íctica asociada a las lagunetas temporales del humedal Laguna de Matusagaratí estuvo dominada por Astyanax panamensis. El género Astyanax es conocido por su carácter generalista y oportunista, capaz de colonizar hábitats alterados con condiciones subóptimas para otras especies (Mise et al., 2013).
Las variaciones espacio-temporales de los parámetros físico-químicos en humedales están determinados por las temporadas climáticas, forma y profundidad del sistema, así como por la amplitud de la marea en humedales costeros (Aguirre-León et al., 2020; Snedden et al., 2013). El hecho que el periodo de muestreo coincidiera con el episodio 2020-2023 del fenómeno de El Niño pudo incidir en las diferencias observadas entre los riachuelos y lagunetas incrementando los sólidos disueltos por una elevada tasa de evaporación sin aportes de los cursos de agua para su dilución.
La influencia de aguas marinas en el corredor fluvial del Tuira, caracterizadas por un elevado contenido de sólidos disueltos totales (SDT), favoreció la presencia de especies eurihalinas incrementando la abundancia y riqueza de este hábitat. En contraste, durante el periodo de lluvias el desplazamiento de la cuña salina hacia la costa favorece la ocurrencia de especies estenohalinas como Ageneiosus pardalis y Sternopygus aequilabiatus en las mismas zonas, creando un efecto de desplazamiento espacio-temporal de las comunidades ícticas.
Los ensambles observados en los riachuelos que irrigan la planicie inundable del humedal mantienen una diversidad que se ubica en medio de los extremos de alta riqueza del río Tuira y la baja diversidad de las lagunas. En estos riachuelos se encuentran especies bentónicas adaptadas a corrientes como Characidum marshii, Heptapterus panamensis y Lasiancistrus caucanus y especies que habitan la columna de agua como Hemibrycon dariensis, Poecilia caucana y Gephyrocharax atracaudatus.
El análisis NMDS presenta un traslape entre el ensamble íctico de las lagunetas y los riachuelos que se explica por la conectividad lateral y longitudinal de las lagunas permanentes y temporales con los cursos de agua del humedal y la presencia de especies en común como Astyanax panamensis, Andinoacara coeruleopunctatus, Pseudocheirodon arnoldi, Gasteropelecus maculatus, Hoplias microlepis, Lebiasina festae y Cyphocharax magdalenae que hacen uso de ambos hábitats. Según González (2008), eventos migratorios en juveniles de Astyanax panamensis y Cyphocharax magdalenae durante el periodo de transición de estación lluviosa a estación seca, por lo que las lagunetas desempeñarían un papel clave en la dispersión de poblaciones y recolonización de los cauces durante la estación lluviosa (Incagnone et al., 2015).
La presencia de Eleotris picta, Hemibrycon dariensis, Rhamdia guatemalensis, Sturisomathichtys panamensis, Roeboides occidentalis e Hypostomus aspidolepis en las comunidades de peces del corredor fluvial del río Tuira y los riachuelos de la planicie inundable, sugiere que podría existir un corredor ecológico lateral para estas especies entre ambos hábitats. Debido a que H. aspidolepis es considerado un pez de importancia pesquera en Panamá (Baigún & Valbo-Jorgensen, 2023), la comprensión de los requerimientos ecológicos de esta especie es relevante para efectos de su manejo y conservación por lo que la identificación de posibles corredores ecológicos dentro de su rango de distribución es importante. Especies del género Hypostomus han demostrado tolerancia a condiciones variables de hábitat dentro de su rango de distribución (De Souza, 2011) soportando incluso condiciones estuarinas (Loftin, 1965), además existe evidencia de migración lateral de peces de la familia Loricariidae en Brasil (Garutti, 2000). Sin embargo, no se han reportado procesos de migración lateral en Hypostomus aspidolepis en Panamá.
La presencia de especies como Hoplosternum punctatum, Ageneiosus caucanus y Pimelodus punctatus cuyo límite de distribución norte se ubica dentro del humedal, es muestra del aporte de la biota de la ecorregión del Chocó a la ictiofauna de Panamá. En conjunto, el humedal Laguna de Matusagaratí, alberga una muestra importante y única de especies distribuidas en un mosaico compuesto por diversos hábitats, algunos de ellos frágiles por su condición estacional, la interacción entre estos hábitats y su conectividad determinan la resiliencia del ecosistema ante eventos climáticos extremos o disturbios antropogénicos (Barletta et al., 2010; Bonhomme et al., 2021).
Los resultados obtenidos podrían tener implicaciones importantes para la conservación de estos ecosistemas al evidenciar que la estructura del ensamblaje íctico de cada hábitat dentro del humedal Laguna de Matusagaratí difiere, y que su diversidad está sujeta a la influencia de las variables ambientales como los SDT. Es posible que variables ecohidrológicas fuera del alcance de esta investigación contribuyan a la diferenciación de las comunidades del humedal Laguna de Matusagaratí, en consecuencia, futuras evaluaciones del humedal podrían incorporar otros elementos para la comparación de la ecología y dinámica de las comunidades de peces del humedal sobre todo ante los efectos del cambio climático y afectaciones antropogénicas a las que está sometido el humedal laguna de Matusagaratí.
Declaración de ética: Los autores declaran que todos están de acuerdo con esta publicación y que han hecho aportes que justifican su autoría, que no hay conflicto de interés de ningún tipo, y que han cumplido con todos los requisitos y procedimientos éticos y legales pertinentes. Todas las fuentes de financiamiento se detallan plena y claramente en la sección de agradecimientos. El respectivo documento legal firmado se encuentra en los archivos de la revista.

