




 Espanhol (pdf)
 Artigo em XML
 Referências do artigo

 Tradução automática
 Enviar este artigo por email
 Citado por SciELO
 Similares em
SciELO
 uBio

 Permalink


Introducción
Los bosques montanos con frecuencia están envueltos por nubes y neblina, ocupan el 0.4 % de la tierra y se encuentran entre los 1 500 - 3 000 m.s.n.m. (Kohler et al., 2014). Por su estructura y características estos bosques megadiversos albergan el 20 % de plantas y 16 % de vertebrados a nivel mundial, además de considerarse centros de endemismo (Guerra et al., 2020; Mijango-Ramos et al., 2020; Ray et al., 2006) y hot spots de biodiversidad (Myers et al., 2000). Los bosques montanos cumplen un rol vital en la captura, almacenamiento, liberación y provisión del agua en forma de lluvia o neblina (Rodríguez-Quiel et al., 2019). Sin embargo, son ecosistemas vulnerables que se encuentran altamente amenazados debido al cambio climático, el crecimiento demográfico (Godínez, 2021), el uso no sostenible del recurso provocado por la deforestación, la implantación de ganadería y agricultura que pone en riesgo la existencia de la flora, la fauna y los servicios ecosistémicos de estas zonas de vida (Sánchez-Ramos & Dirzo, 2014). En Panamá, los bosques montanos tienen una cobertura total de 2 265 500 ha, sin embargo, solo 566 400 ha han sido declaradas áreas protegidas (Brown & Kapelle, 2001; MiAmbiente, 2017; Mijango-Ramos et al., 2020).
A nivel general los bosques montanos poseen una gran diversidad de epífitas (incluyendo briófitas y líquenes) distribuidos en diferentes sustratos, mostrando una alta diversidad aproximadamente a los 2 000 m.s.n.m. (Benítez et al., 2012, Benítez et al., 2015; Brown & Kapelle, 2001; Rodríguez-Quiel et al., 2019; Wolf 1993). Los líquenes son un componente importante en la biodiversidad biológica del trópico (Ramírez-Morán et al., 2016), entre ellos los macrolíquenes (Benítez et al., 2012; Holz & Gradstein, 2005).
Los macrolíquenes epífitos son un grupo importante en los ecosistemas forestales y tienen una amplia distribución geográfica. Según Honneger (2008) los macrolíquenes incluyen los biotipos foliosos y fruticulosos, son fácilmente observables, con estructuras vegetativas complejas y un talo estratificado internamente (p. 76). Estos organismos tienen relevancia como indicadores ecológicos debido a que son sensibles a los cambios ambientales (Hurtado et al., 2020), por lo tanto, son utilizados para documentar el estado de conservación de los remanentes de los bosques afectados por la deforestación y diversas variables microclimáticas (Benítez et al., 2012; Cáceres et al., 2007; Herrera-Campos et al., 2014; Simijaca et al., 2018).
En los bosques montanos tropicales los líquenes no están distribuidos aleatoriamente sobre los árboles, sino que presentan una estratificación vertical donde cada zona está influenciada por diversos factores microclimáticos y por las características del árbol hospedador (Cornelissen & Ter-Steege, 1989; Herrera-Campos et al., 2014; Komposch & Hafellner; 2000; Rosabal et al., 2012; Simijaca, 2018) como su edad, altura y diámetro, la morfología, textura (suaves, duras, lisas o agrietadas) y pH de la corteza (Barreno & Pérez-Ortega, 2003; Sánchez-Girón et al., 2023). Este último aspecto impide hacer generalizaciones sobre patrones de distribución, por consiguiente, es importante conocer cómo varían los macrolíquenes entre áreas con diferentes condiciones ambientales.
En Panamá los estudios sobre macrolíquenes son limitados y la mayoría se han focalizado en temas relacionados con la fisiología de ciertas especies como las relaciones hídricas y el intercambio de CO2 (Lange et al., 1994; Lange et al., 2000; Lange et al., 2004; Zotz et al., 2003). Otros trabajos realizados abordan la sistemática de grupos específicos, por ejemplo, Cladoniaceae (Abbayes, 1949), Graphidaceae (Van de Boom & Sipman, 2013), Physciaceae (Van de Boom et al., 2013), Pyrenulaceae (Etayo, 1997; Etayo & Aptroot, 2005) y Thelotremataceae (Hale, 1978). También se han efectuado estudios florísticos en regiones específicas, como en Coiba (Etayo 1997), bosques pluviales montanos (Büdel et al., 2000), Bahía Honda (Etayo & Aptroot, 2005), cumbre del Volcán Barú (Zotz, 2017) y evaluaciones de diversidad en distintas regiones (Piepenbring, 2007; Breuss, 2008; van den Boom et al., 2017; Etayo & Aptroot, 2017).
Debido a las cambiantes condiciones ambientales inducidas por el calentamiento global y por la presión que ejerce el hombre sobre las áreas protegidas y remanentes de bosques, se hace necesario estudiar las respuestas de las comunidades de macrolíquenes a los diversos cambios ambientales. Los macrolíquenes son organismos típicos de los bosques montanos, donde se pueden encontrar creciendo en ambientes sombreados y también en sitios con alta incidencia de luz; por esto, es crucial conocer la distribución de estos organismos y así comprender los efectos de los cambios ambientales sobre la diversidad presente. El presente trabajo tiene como propósito determinar la riqueza y composición de los macrolíquenes cortícolas presentes en bosques montanos y remanentes de bosques montanos dominados principalmente por Comarostaphylis arbutoides Lindl. (Ericaceae) y Quercus spp. (Fagaceae) y su relación con diversos factores microclimáticos en tres zonas con diferente grado de intensidad lumínica y densidad de vegetación arbórea. Se parte de la hipótesis de que los cambios en la estructura de bosque y microclima condicionan la diversidad de macrolíquenes epífitos.
Materiales y métodos
Área de estudio: El área de estudio se localiza en la comunidad de Paso Ancho (8°48’55.7” N 082°34’41.8” W, 1 980 - 2 110 m.s.n.m.), Parque Nacional Volcán Barú (PNVB), en la Provincia Chiriquí, República de Panamá. El PNVB es una zona protegida con alto endemismo (plantas vasculares, helechos, reptiles, aves, anfibios y mamíferos), que está estrechamente relacionado con la vegetación de los bosques montanos de la parte sur de la cordillera de Talamanca (Rodríguez et al., 2011). En el camino de ascenso a la cima del volcán, en la ladera sur del parque, desde su zona de amortiguamiento hacia la zona boscosa se pueden identificar un claro gradiente de intensidad lumínica y densidad de vegetación arbórea, el cual fue utilizado para establecer tres zonas de muestreo (Fig. 1).
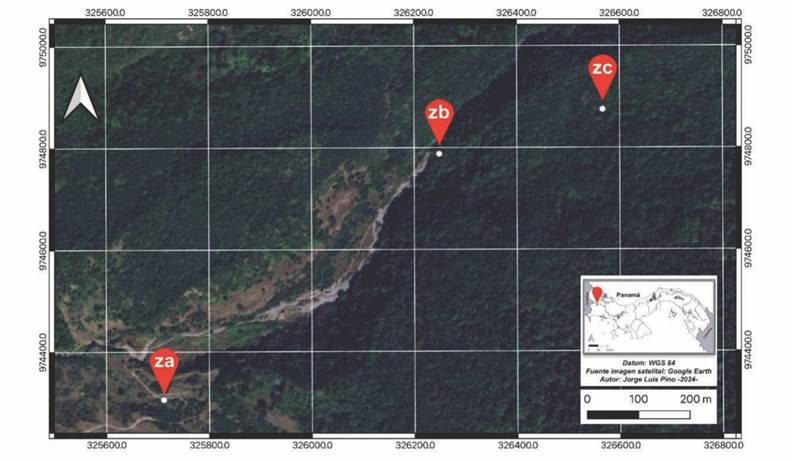
Fig. 1 Área de estudio y zonas de muestreo en el Parque Nacional Volcán Barú, Chiriquí, Panamá. / Fig. 1. Study area and sampling zones in Baru Volcano National Park, Chiriquí, Panama.
La sabana (ZA) presenta un rango de elevación entre 1 877 - 1 928 m.s.n.m., la vegetación está dominada por elementos de las familias Agavaceae, Asteraceae, Ericaceae, Myrtaceae y Poaceae y, los arbustos y árboles se encuentran dispersos. La zona de transición (ZB) presenta un rango de elevación entre 1 931 - 1 987 m.s.n.m., es un punto de cambio o transición de la sabana al bosque en donde predominan miembros de las familias Clusiaceae, Fagaceae y Poaceae. La zona de bosque (ZC) se encuentra entre 2 034-2 055 m.s.n.m, las especies de plantas dominantes son Chusquea sp. (Poaceae), Quercus benthamii A. DC. (1864) y Quercus salicifolia Née (1801) y Quercus corrugata Hook (1841, Fagaceae).
Selección de árbol hospedador: Seleccionamos dos tipos de árboles hospedadores con base en las observaciones sobre la vegetación arbórea dominante en cada zona: Comarostaphylis arbutoides Lindl. (1843, Ericaceae), un arbusto o árbol de 1 a 20 m de alto, erecto, muy ramificado, perennifolio, con corteza exfoliante en laminillas irregulares (González-Elizondo et al., 2015). También se consideraron representantes de Quercus spp. (Fagaceae), principalmente, Q. salicifolia, Q. benthamii, Q. corrugata, los cuales predominan en el área de estudio. Todas estas especies de Quercus poseen un hábito de crecimiento arbóreo de hasta 50 m, su corteza es lisa (joven), lenticelada, rugosa y fisurada (maduro/envejece), hojas alternas con lámina coriácea (Hammel et al., 2010; Sánchez-Girón et al., 2023). En los bosques montanos de la Cordillera de Talamanca C. arbutoides y las especies de Quercus son árboles dominantes y se distribuyen en rangos de elevación entre 1 800 y 3 000 m.s.n.m. (González-Elizondo et al., 2015; Hammel et al., 2010; Kühdorf et al., 2014).
Diseño experimental e identificación de especies
Obtención de datos ambientales y estructural del bosque: En cada zona se seleccionaron 20 árboles (10 individuos de C. arbutoides y 10 individuos de Quercus spp. DAP > 10 cm). En cada árbol hospedador se calculó la entrada de luz con un densiómetro esférico cóncavo en dirección de los puntos cardinales (N, S, E y O) y a un metro de distancia del tronco. Se establecieron cuadrantes de 20 x 30 cm, ubicados a 1.30 m del suelo en dirección norte y sur de la corteza de los árboles, donde se registró la ocurrencia de especies de macrolíquenes (Benítez et al., 2012). Posteriormente, las muestras presentes en el cuadrante fueron removidas de la corteza y trasladadas al laboratorio del Herbario de la Universidad Autónoma de Chiriquí (UCH) para su posterior identificación taxonómica.
En el laboratorio las muestras recolectadas se secaron en un horno a 65 °C por 48 horas, para evitar el exceso de humedad y el crecimiento de mohos en las muestras. Posteriormente se colocaron en un congelador a -10 °C por 72 horas para eliminar insectos o ácaros dañinos. Previo a la identificación se observaron y documentaron estructuras macroscópicas (apotecios, isidios, soredios, entre otros) y microscópicas (ascos, ascosporas) de los líquenes y cambios de coloración a través de reacciones químicas, información que se utilizó posteriormente para categorizar taxonómicamente cada espécimen. Para la identificación se utilizaron claves taxonómicas de especies neotropicales tales como Ahti (2000), Sipman (2005), Coca & Sanín (2010), entre otras. Las categorías taxonómicas presentadas están basadas en el Index Fungorum (2020). Las recolectas se hicieron entre los meses de febrero y mayo de 2017. Las muestras de líquenes fueron depositadas en la colección de referencia del Herbario UCH de la Universidad Autónoma de Chiriquí.
Análisis de los datos: Para analizar los efectos de zona (ZA, ZB y ZC), entrada de luz, DAP y especie del hospedador sobre la riqueza de especies se realizó un modelo lineal generalizado (GLM por sus siglas en inglés, familia de distribución Poisson), ya que se trataba de datos de conteo y no se distribuían normalmente.
La composición de las comunidades se visualizó mediante un análisis de escalamiento multidimensional no métrico (NMDS por sus siglas en inglés) con una medida de similitud euclídeana. Para analizar los efectos de especie del hospedador, zona, intensidad lumínica y DAP sobre la composición de especies se realizó una correlación entre los dos primeros ejes ajustados con la función “envfit” del paquete “vegan” (Oksanen et al., 2013). Todas estas pruebas se ejecutaron con el programa estadístico R versión 3.1.2 (R-Core Team, 2019).
Resultados
Se recolectaron un total de 247 especímenes de macrolíquenes cortícolas, los cuales corresponden a 47 especies, 14 géneros, siete familias y tres órdenes (MST 1, MSF 1, MSF 2).
La zona con mayor número de especies fue la sabana (ZA) con 37, seguido de la zona de transición (ZB) con 29 y finalmente la zona de bosque (ZC) con 20. Comarostaphylis arbutoides albergó en la ZA 28 especies en total, 22 en la ZB y 18 en la ZC, mientras para los hospedadores de Quercus spp. fueron registradas 26 especies en la ZA, 13 en la ZB y 7 en la ZC (Tabla 1).
Tabla 1 Riqueza de macrolíquenes en función de las especies de hospedador por zonas de estudio en el Parque Nacional Volcán Barú, Chiriquí, Panamá. / Table 1. Macrolichen richness as a function of host species by study areas in Baru Volcano National Park, Chiriquí, Panamá.
| Zona | Comarostaphylis arbutoides | Quercus sp. | Total |
| Zona A | 28 | 26 | 37 |
| Zona B | 22 | 13 | 29 |
| Zona C | 18 | 7 | 20 |
Comarostaphylis arbutoides presentó una mayor riqueza de especies con 41 (Everniastrum cirrhatum (Fr.) Hale, Hypotrachyna bogotensis (Vain.) Hale, Coccocarpia palmicola (Spreng.) Arv. & D.J. Galloway, Tabla 1), mientras que, Quercus spp. presentó menor riqueza de especies con 33 (Hypotrachyna costaricensis (Nyl.) Hale, Parmotrema praesorediosum (Nyl.) Hale, Heterodermia japonica (M. Satô) Swinscow & Krog, Tabla 1). El análisis GLM señala que la especie de forófito y las zonas de muestreo en las que se encontraban influyeron sobre la riqueza de las especies de macrolíquenes (Tabla 2, SMF 1, SMF 2). Por otra parte, los factores DAP y luz no presentaron relevancia al explicar la distribución de las especies (Tabla 2).
Tabla 2 Análisis de varianza para modelo lineal generalizado (GLM) explicando el efecto de los factores ambientales y característica del hospedador sobre la riqueza de especies de macrolíquenes epífitos en el Parque Nacional Volcán Barú, Chiriquí, Panamá. / Table 2. Analysis of variance for generalized linear model (GLM) explaining the effect of environmental factors and host characteristics on species richness of epiphytic macrolichen in Baru Volcano National Park, Chiriquí, Panama.
| Factores incluidos | LR Chisq | Df | Valor -p |
| Especie de forófito | 35.71 | 1 | <0.001 |
| Zona | 16.06 | 2 | <0.001 |
| DAP | 1.39 | 1 | 0.239 |
| Luz | 1.35 | 1 | 0.245 |
Acrónimos: DAP: diámetro a la altura del pecho; LR Chisq: Valor de Chi-cuadrado de Person para una distribución familiar de Poisson; Df: grados de libertad; Valor -p: valor de significancia. / Acronyms: DBH: diameter at breast height; LR Chisq: Person’s Chi-squared value for a Poisson family distribution; Df: degree of freedom; p-value: level of significance.
El análisis NMDS muestra una sobreposición entre las comunidades de macrolíquenes epífitos presentes en las zonas de muestreo (Fig. 2A) y también al considerar las especies de forófito (Fig. 2B). Esta sobreposición indica similitud entre zonas y especies de forófito. El NMDS ajustado con los variables ambientales y estructurales del bosque señala que la variable luz explica la mayor variabilidad en la composición de las comunidades de macrolíquenes epífitos con el 30 % de varianza explicada, seguido del DAP con el 13 % (Tabla 3). Las variables ‘especie del hospedador’ y ‘zona’ tienen valores de 11 y 15 % de la varianza explicada, respectivamente (Tabla 3).
Tabla 3 Coeficientes de correlación (r2) de los factores ambientales y estructurales ajustados a los dos primeros ejes de la ordenación NMDS de la composición de macrolíquenes en función de las zonas y las especies de forófito Comarostaphylis arbutoides y Quercus spp. en Paso Ancho, Parque Nacional Volcán Barú, Panamá (ver también Fig. 2). / Table 3. Squared correlation coefficients (r2) of environmental and structural factors fitted on the first two axes of the NMDS ordination of macrolichen composition as a function of zones and phorophyte species Comarostaphylis arbutoides and Quercus spp. in Baru Volcano National Park, Panama (see also Fig. 2).
| Factores | NMDS1 | NMDS2 | r2 | p-valor |
| Especie hospedadora | 0.1095 | < 0.001 | ||
| Comarostaphylis arbutoides | 0.0109 | 0.3018 | ||
| Quercus sp. | -0.0109 | 0.3018 | ||
| Zona | 0.1440 | 0.002 | ||
| ZA | -0.4689 | -0.0286 | ||
| ZB | 0.1797 | -0.1211 | ||
| ZC | 0.2892 | 0.0925 | ||
| DAP | 0.2686 | 0.9633 | 0.1260 | 0.017 |
| Luz | -0.8938 | 0.4485 | 0.3018 | < 0.001 |
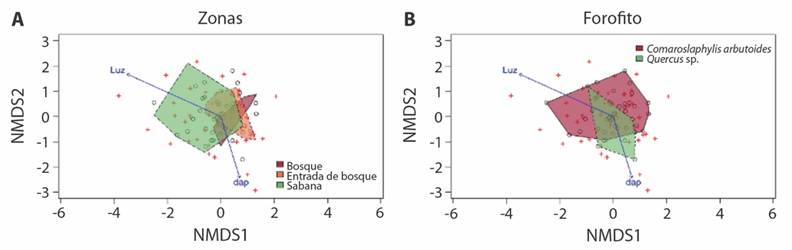
Fig. 2 Análisis de escalamiento multidimensional no métrico (NMDS) de la composición de las comunidades de macrolíquenes epífitos en función de las zonas (A.) y las especies de forófito Comarostaphylis arbutoides y Quercus spp. (B.) en el Parque Nacional Volcán Barú. Panamá. / Fig. 2. Nonmetric multidimensional scaling analysis (NMDS) of the composition of epiphyte macrolichen communities according to zones (A.) and phorophyte species Comarostaphylis arbutoides and Quercus spp. (B.) in Baru Volcano National Park. Panama.
Discusión
Nuestros resultados señalaron que la familia con mayor riqueza de especies fue Parmeliaceae, seguida de Lobariaceae, Physciaceae y Collemataceae (MST1). Estas familias de líquenes no sólo son típicas de los bosques montanos del PNVB, sino que también han sido reportadas de otros bosques como los bosques chaqueños de Argentina (Estrabou, 2007), Ecuador (Benítez et al., 2012), México (Holz & Gradstein, 2005), y los bosques altoandinos y subandinos en Colombia (Aguirre, 2008; Ramírez-Morán et al., 2016; Simijaca et al., 2018; Zárate-Arias et al., 2019) y en Nueva Guinea (Sipman & Aptroot, 2006).
Los líquenes nos pueden indicar el estado de conservación de un bosque, por lo que son utilizados como indicadores ecológicos (Rivas-Plata et al., 2008). Ramírez-Morán et al. (2016) y Simijaca et al. (2018) sugieren que los géneros Cladonia, Coccocarpia, Erioderma Everniastrum, Heterodermia, Hypotrachyna, Leptogium, Lobariella, Parmotrema, Sticta y Usnea pueden ser utilizados como bioindicadores de un bosque conservado. Especialmente el género Usnea debido a que son sensibles a la contaminación atmosférica, por lo que las especies desaparecen en las áreas urbanas e industrializadas (Araujo, 2016).
Sin embargo, se requieren mayores estudios que brinden información sobre las especies indicadoras debido a que Rivas-Plata et al. (2008) y Simijaca et al. (2018) sugieren que especies de Cladonia, Hypotrachyna y Parmotrema habitan bosques intervenidos. Los macrolíquenes encontrados en el área de estudio pueden ser interpretados principalmente como especies de bosques conservados posiblemente esto se debe a la poca intervención antropogénica que presenta el sitio.
La riqueza de macrolíquenes epífitos varían de acuerdo con las zonas de muestreo, además la riqueza guarda estrecha relación con el microclima, principalmente la disponibilidad de luz y rasgos del árbol hospedador, que pueden influir en la distribución, riqueza y abundancia de los líquenes epífitos (McCune et al., 1997). Por otra parte, la mayoría de las especies liquénicas tiene afinidad con el sustrato (Resl et al., 2018) y aún sobre el sustrato de preferencia son muy específicos en su microhábitat (Will-Wolf et al., 2002).
Las tres zonas de muestreo seleccionadas tienen efectos directos sobre la riqueza de macrolíquenes epífitos. La zona de sabana presentó la mayor riqueza de especies fotófilas, donde las condiciones del sotobosque son similares a la del dosel. Esto concuerda con lo mencionado por Benítez et al. (2012), en el caso de los bosques montanos de Ecuador donde se encontró que los bosques alterados poseen mayor riqueza de especies adaptadas a condiciones de alta luminosidad. Contrariamente, la zona de bosque tiene un mayor número de especies de cianolíquenes, considerados epífitos de sombra, además de comunidades de briofitos adaptadas a mayores niveles de humedad (Gil-Novoa & Morales-Puentes, 2014, Holz et al., 2002).
Además, estudios realizados en robles demuestran que la riqueza de líquenes aumenta hacia el dosel y las especies fotófilas dominan los estratos superiores (Simijaca et al., 2018), mientras que en la base y tronco del forófito es dominado por especies de sombra y las comunidades de briofitos (Gil-Novoa & Morales-Puentes, 2014; Holz et al., 2002).
Por otra parte, la composición de las comunidades de macrolíquenes se vio influenciada por los niveles de apertura del dosel, la intensidad lumínica presente y la densidad de vegetación arbórea en las distintas zonas muestreadas (sabana, transición y bosque), así como por los atributos de los árboles hospedadores considerados. Dicha influencia se relaciona con que las comunidades de líquenes no solo difieren en función de las diferentes especies de árboles sobre los que crecen, sino también debido a las características del hospedador y a la edad del bosque (Boonpragob & Polyiam, 2007; Hernández-Gallego et al., 1998; Pérez-Quintero & Watteijne, 2009). Factores como la textura, grado de desprendimiento, presencia de ornamentos y en particular el pH de la corteza de los forófitos, no fueron consideradas en el presente estudio, pero algunos autores sugieren que son propiedades de los sustratos determinantes para la presencia de macrolíquenes (Cáceres et al., 2007; Estrabou et al., 2005; Rodríguez et al., 2009).
Las comunidades de macrolíquenes en C. arbutoides son diferentes a las encontradas en Quercus spp., esto se debe a que en su mayoría los macrolíquenes encontrados son organismos fotófilos. Los macrolíquenes se establecen en el árbol hospedador que presentan un follaje menos denso (Estrabou & García, 1995), como es el caso de C. arbutoides que son árboles muy ramificados donde el tronco recibe más luz (Everniastrum cirrhatum, Hypotrachyna bogotensis, Hypotrachyna imbricatula, Usnea spp., MST 1, MSF 1, MSF 2). Por otro lado, los macrolíquenes de sombra dominaron sobre los hospedadores de Quercus. (Leptogium azureum, L. denticulatum, Heterodermia japonica, MST 1, MSF 1, MSF 2), lo que puede estar relacionado con la presencia de adaptaciones fisiológicas para habitar en sitios con elevada y constante humedad relativa, sombra y baja intensidad lumínica (Soto et al., 2012; Rincón-Espitia et al., 2011; Benítez et al., 2012). Gil-Novoa & Morales (2014) y Holz et al. (2002), describen a los robles como árboles de gran tamaño (hasta 70 m de alto) y de dosel denso lo que impide una penetración de luz directa al tronco, proporcionando microhábitats sombríos y húmedos. Consecuentemente el sotobosque de los robledales generalmente está dominado por especies de sombra y densas capas de briofitos (Kappelle et al., 1995).
Los bosques montanos del PNVB son sitios con una gran diversidad de macrolíquenes cortícolas, y dichas comunidades son influenciadas por el tipo de bosque de bosque en el que habitan, por la incidencia lumínica y por los rasgos del árbol hospedador. Los macrolíquenes epífitos son excelentes indicadores de cambios ambientales, por lo que pueden ser utilizados como especies modelo para evaluar la conservación de los bosques tropicales.
Declaración de ética: los autores declaran que todos están de acuerdo con esta publicación y que han hecho aportes que justifican su autoría; que no hay conflicto de interés de ningún tipo; y que han cumplido con todos los requisitos y procedimientos éticos y legales pertinentes. Todas las fuentes de financiamiento se detallan plena y claramente en la sección de agradecimientos. El respectivo documento legal firmado se encuentra en los archivos de la revista.
Accesibilidad de datos: los datos en los cuales están basados el presente trabajo estarán disponibles en el repositorio Zenodo (Vissuetti & Rodríguez-Quiel, 2024).
Ver material suplementario
0034-7744-rbt-73-01-e55305-suppl1
