




 Spanish (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
 Cited by SciELO
 Similars in
SciELO
 uBio

 Permalink

Comúnmente se ha considerado que la característica más notoria de los invertebrados bentónicos (meiofauna, macrofauna y megafauna) de zonas profundas es la pequeña talla exhibida por la mayoría de especies, en comparación con su contraparte de aguas someras (Gage & Tyler, 1991; Warwick & Clarke, 1996; Rex et al., 2006). Este patrón fue detectado inicialmente en expediciones del siglo XIX (Rex & Etter, 1998), pero estudios realizados en diferentes partes del planeta reportan resultados contradictoríos (Polloni, Haedrich, Rowe, & Clifford, 1979; Pfannkuche, 1985; Lampitt, Billet & Rice, 1986; Jensen, 1988; Tietje, Deming, Rowe, Macko, & Wilke, 1989). Los modelos teóricos de talla óptima formulados por Sebens (1982; 1987), basados en experimentación con anémonas, predicen un decrecimiento del tamaño de los invertebrados marinos con la profundidad, debido a la disminución de alimento hacia zonas profundas del océano (Sanders & Hessler, 1969; Parsons, Takahashi, & Hargrave, 1977; Hoey, Degraer, & Vincx, 2004). Contrario a dichos modelos, otros autores (Peters, 1983; Mahaut, Sibuet, & Shirayama, 1995; Rex & Etter, 1998; Rex, Etter, Clain, & Hill, 1999, Berkenbusch, Probert, & Nodder, 2011) sugieren que la menor disponibilidad de alimento con la profundidad, pueden favorecer tamaños grandes, ya que organismos de mayor talla son metabólicamente más eficientes por unidad de masa (Childress & Thuesen, 1993; Olabarria & Thurson, 2003; Rex et al., 2006).
La temperatura también tiene un papel importante en la determinación de las tallas. Pequeñas variaciones de temperatura entre hábitats pueden causar grandes diferencias en el tamaño corporal, en las tasas de crecimiento y en la distribución de frecuencia de tallas de las poblaciones. La talla de muchos poiquilotermos puede incrementarse experimentalmente manteniéndolos a bajas temperaturas. Además, los animales tienden a ser de mayor tamaño en las porciones más frías de su ámbito geográfico, posiblemente como una adaptación para conservar energía (Sebens, 1987).
En macroecología existe un creciente interés en la relación entre la talla, la riqueza de especies y la abundancia de individuos, pero la naturaleza e implicaciones de esta relación no han sido suficientemente estudiadas (Blackburn & Gaston, 1994; Warwick & Clarck, 1996; Durden, Bett, Jones, Huvenne, & Ruhl., 2015). Para muchos animales terrestres existe una relación inversa entre abundancia y talla (May, 1988). Igualmente ocurre en zonas marinas someras, pero en zonas profundas del océano dicho patrón no es claro (Abele, 1974; Danovaro, Snelgrove, & Tyler, 2014; Hardy, Smith & Thurnherr, 2015). En términos generales, la relación entre talla y riqueza es mejor conocida en ambientes terrestres que en marinos (May, 1988; Webb, 2012).
La presente investigación se centró en la respuesta adaptativa de la talla de la megafauna bentónica frente a la riqueza de especies, a la abundancia de individuos y a otros factores en el gradiente de profundidad, ya que la información sobre estos tópicos es considerada insuficiente (Warwick & Clarke, 1996; Rex & Etter, 1998; Leduc, Pilditch, & Nodder, 2016). Además, la mayoría de investigaciones en esta temática se han realizado en regiones subtropicales (Mcclain, Rex, & Etter, 2009) y el comportamiento de las variables (como la temperatura) que influyen sobre el tamaño de estos organismos en ambientes tropicales podrían generar tendencias diferentes a las registradas en aguas subtropicales. El único antecedente existente para el área de estudio (Caribe colombiano entre 20 y 550 m de profundidad) indica que los crustáceos de los géneros Agononida, Munida y Munidopsis son más grandes a mayores profundidades (Fierro, 2004).
De acuerdo a lo anterior, este estudio tuvo como propósito determinar la influencia de variables bióticas (densidad intraespecífica, densidad interespecífica, número de especies o riqueza) y ambientales (profundidad, temperatura, latitud y longitud) que plausiblemente pueden afectar el tamaño corporal de la megafauna epibentónica de fondos blandos tropicales en el Caribe colombiano. Para el cumplimiento de estos objetivos, se seleccionaron especies con una amplia distribución batimétrica y geográfica en el área de estudio, y, por medio de modelos aditivos generalizados (GAM, por sus siglas en inglés), se establecieron las tendencias de cambio de tamaño de los organismos en relación con las variables biológicas y ambientales escogidas.
Material y métodos
El área de estudio abarca los fondos blandos del mar Caribe colombiano entre 10 y 500 m de profundidad, desde la zona fronteriza con Panamá hasta el área limítrofe con Venezuela (Fig. 1). Dentro de esta área hay arrecifes coralinos y rocosos, praderas marinas y algales, y fondos blandos heterogéneos que constituyen el ecosistema más extenso (Invemar, 2002a). El Caribe colombiano puede ser dividido en dos categorías oceanográficas principales: la zona sur, desde el golfo de Urabá hasta la desembocadura del río Magdalena, que cuenta con atributos típicos de mares tropicales; y la zona norte, desde unos pocos kilómetros al este del río Magdalena hasta La Guajira (Fig. 1), que se caracteriza por condiciones oceanográficas similares a las de aguas subtropicales, con focos de surgencia, que la convierten en la zona más productiva del Caribe colombiano (Álvarez-León, Aguilera-Quiñones, AndradeAmaya, & Novak, 1995).
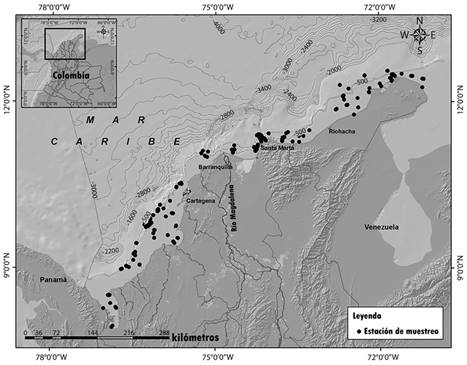
Fig. 1 Área de estudio con los sitios de recolecta de los ejemplares. Fig. 1. Location of the study area showing the sampling sites.
La megafauna bentónica fue recolectada durante los años 1998, 2001 y 2005 en tres cruceros de investigación realizados por el Instituto de Investigaciones Marinas y Costeras, Invemar (Invemar, 2000, 2002b; Invemar & Corpoguajira, 2006). Debido a que los muestreos fueron realizados en diferentes años, se asumió que los tamaños de los organismos no son afectados considerablemente por la variación estacional o interanual. Las muestras se recolectaron con una red demersal tipo semiglobo, con una relinga superior de 7.70 m e inferior de 9.50 m, y longitud total de 12.7 m (cuerpo de la red incluidas las alas: 9.10 m y el copo: 3.60 m). Los arrastres se realizaron durante 10 minutos, a tres nudos de velocidad (1.85 kilómetros por hora), en las isobatas de 10, 20, 50, 70, 150, 300 y 500 m.
Con base en el Sistema de Información sobre Biodiversidad Marina (SIBM) del Invemar, se seleccionaron las especies mejor representadas (con amplia distribución geográfica y batimétrica) en el área de estudio: los moluscos Eudolium crosseanum, Cosmioconcha nitens (clase Gastropoda) y Nuculana acuta (clase Bivalvia); los equinodermos Astropecten alligator (clase Asteroidea), Brissopsis atlantica y Brissopsis elongata (clase Echinoidea); y los crustáceos decápodos Anasimus latus, Chasmocarcinus cylindricus y Achelous spinicarpus. A los gasterópodos se les determinó el alto y ancho de la concha; a los bivalvos el largo y alto de las valvas (Sturm, Pearce, & Valdés, 2007); a los asteroideos el radio mayor y menor, y a los echinoideos el largo y ancho de la testa (Marcus, 1983). A los crustáceos decápodos se midió la longitud y el ancho del caparazón (Escobar-Briones & Alvarez, 2002). Las medidas finalmente usadas en el análisis se reseñan en el cuadro 1. Para realizar este estudio se determinaron las dimensiones de 7 000 ejemplares de las nueve especies estudiadas: E. Crosseanum (146), C. nitens (285), N. acuta (2507), A. alligator (428), B. atlantica (308), B. elongata (113), A. latus (249), C. cylindricus (1149), A. spinicarpus (1815).
La densidad interespecífica e intraespecífica por área barrida se calculó con las matrices de abundancia de cada campaña de muestreo. La densidad interespecífica es el número total de ejemplares de todas las especies presentes en cada estación de muestreo y la intraespecífica indica únicamente la densidad de cada especie objeto de estudio. El área barrida se halló multiplicando la distancia recorrida en el tiempo efectivo de arrastre (10 minutos), por la abertura horizontal de la boca de la red (relinga superior de 7.7 m por 0.6 m de apertura; éste último corresponde al porcentaje teórico que asume una efectividad de apertura de la boca del 60 %) de acuerdo a Okonski y Martín (1977). Así se obtuvo la densidad por hectárea de las especies objeto de estudio (intraespecífica) y de todas las especies (interespecífica). La riqueza se estimó como el número total de especies registrado por arrastre. La profundidad, la temperatura y las coordenadas de los sitios de muestreo se obtuvieron a partir del SIBM del Invemar.
Para detectar tendencias de cambio en la talla de los individuos a nivel de especie, e inferir la influencia de las variables, se emplearon modelos aditivos generalizados (GAM, por sus siglas en inglés), con la talla como variable respuesta (las mediciones usadas en el análisis se indican en el cuadro 1) y como variables predictivas, profundidad, temperatura, densidad intraespecífica, densidad interespecífica, riqueza, latitud y longitud. Los GAM se realizaron por medio del programa R 2.12.2. Esta técnica se empleó ya que no requiere supuestos de estadística paramétrica, los cuales no se cumplieron para los datos de este estudio.
Un GAM es una extensión de los modelos lineales, pero permite que las funciones lineales de las variables predictivas sean remplazadas por funciones de “suavizamiento”, y no necesita supuestos de las formas funcionales (Venables & Dichmont, 2004) de modo que:
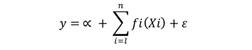
Donde y es la variable respuesta, Xi son las variables predictivas, α es una constante y ε es el error. Los ƒi son estimados usando suavizadores. En este trabajo se utilizó un suavizador tipo spline (s) para estimar estas funciones no paramétricas. El procedimiento diagnóstico del GAM contempló el valor de significancia (p), el criterio de información Akaike (AIC) en la selección del mejor modelo y el porcentaje de devianza explicada por el modelo.
Resultados
Astropecten alligator (Paxillosida: Astropectinidae)
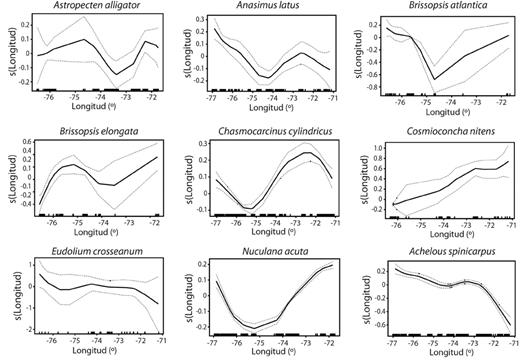
Se encontraron asociaciones significativas en todos los casos entre la talla de los ejemplares y las variables predictivas (Cuadro 1 y Cuadro 2). De acuerdo a los valores de devianza y del AIC, las variables que mejor explicaron los cambios en tamaño fueron la densidad intraespecífica y la temperatura (Cuadro 1 y Cuadro 2). Las dimensiones de A. alligator disminuyeron alrededor de una riqueza de 60 especies (Fig. 2). La talla disminuyó hasta una densidad intraespecífica cercana a 50 individuos por hectárea, luego aumentó y se mantuvo relativamente estable entre los 100 y 150 individuos/ha (Fig. 3). Las tallas variaron con respecto a la densidad interespecífica, pero con tendencia general a disminuir con el aumento de la misma (Fig. 4). Hubo una inclinación al incremento en tallas con la profundidad (Fig. 5) y una tendencia de aumento con la disminución de la temperatura (Fig. 6). Los tamaños no mostraron grandes cambios en el gradiente latitudinal y los mayores valores se presentaron en los extremos del mismo; pero longitudinalmente, si se presentó una notoria disminución de la tallas entre 74°W y 73°W (Fig. 7 y Fig. 8).
Cuadro 1 Resultados de la modelación GAM entre el tamaño de los ejemplares (mm) y las variables predictivas biológicas
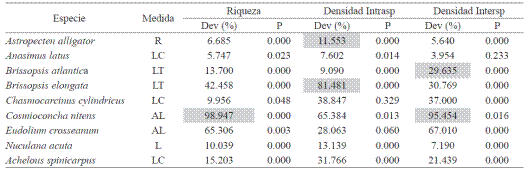
La(s) celda(s) resaltada(s) es una de las dos (o las dos) que mostro mayor asociación con la variación de las tallas de las diferentes especies. Dev: desviación explicada por el modelo. R: radio mayor. LC: largo de caparazón. LT: largo de la testa.
AL: altura de la concha. L: largo de las valvas.
Cells in grey show the variable(s) that better explain the variation in length for each species.
Cuadro 2 Resultados de la modelación GAM entre el tamaño de los ejemplares (mm) y las variables predictivas ambientales
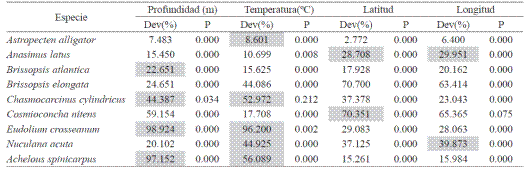
La(s) celda(s) resaltada(s) es una de las dos (o las dos) que mostro mayor asociación con la variación de las tallas de las diferentes especies. Medidas tomadas a los individuos en el cuadro 1.
Cells in grey show the variable(s) that better explain the variation in length for each species. Measurements and acronyms as in table 1.
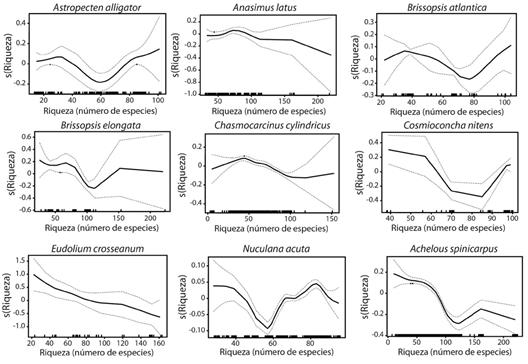
Fig. 2 GAM model results with spline smoother (s), showing the functional relationships between body size and richness (number of species). The solid lines indicate the fitted model and the dashed lines are 95 % confidence intervals.
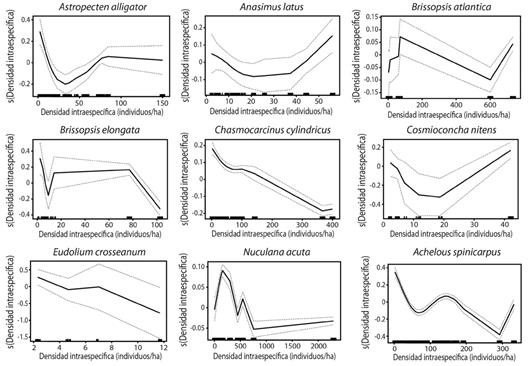
Fig. 3 GAM model results with spline smoother (s), showing the functional relationships between body size and intraspecific density. The solid lines indicate the fitted model and the dashed lines are 95 % confidence intervals.
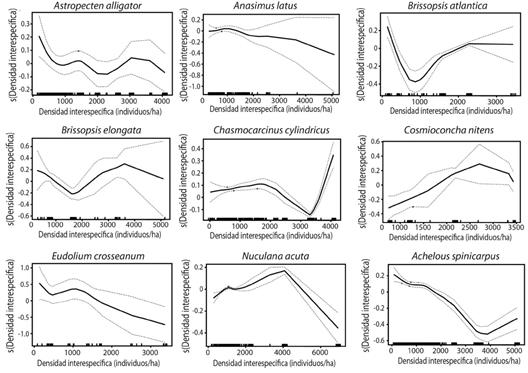
Fig. 4 GAM model results with spline smoother (s), showing the functional relationships between body size and interspecific density. The solid lines indicate the fitted model and the dashed lines are 95 % confidence intervals.
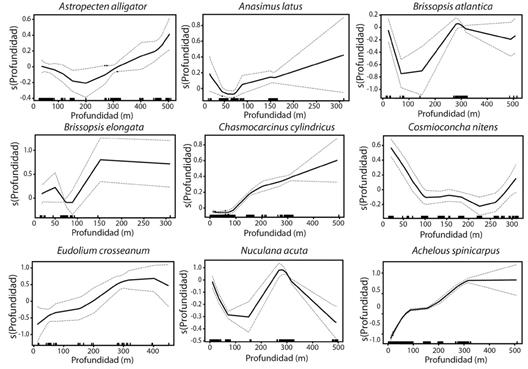
Fig. 5 GAM model results with spline smoother (s), showing the functional relationships between body size and depth. The solid lines indicate the fitted model and the dashed lines are 95 % confidence intervals.
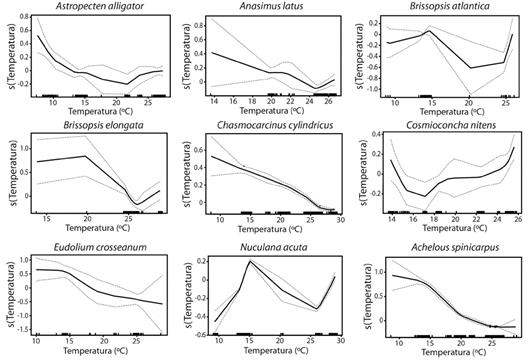
Fig. 6 GAM model results with spline smoother (s), showing the functional relationships between body size and temperature.The solid lines indicate the fitted model and the dashed lines are 95 % confidence intervals.
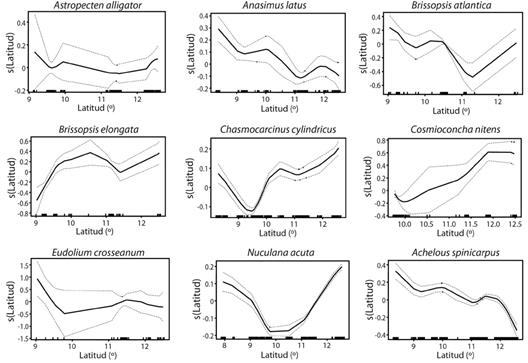
Fig. 7 GAM model results with spline smoother (s), showing the functional relationships between body size and latitude. The solid lines indicate the fitted model and the dashed lines are 95 % confidence intervals.
Anasimus latus (Decapoda: Inachoididae)
Se presentaron relaciones significativas entre todas las variables predictivas y el tamaño de la especie, excepto por la densidad interespecífica (Cuadro 1 y Cuadro 2). De estas, las que mejor explicaron los cambios de talla fueron la latitud y la longitud (Cuadro 2). La talla de la especie parece mermar con el incremento en la riqueza de especies (Fig. 2). Los tamaños disminuyeron con respecto a la densidad intraespecífica entre 10 y 40 individuos/ha, y aumentaron nuevamente de 40 individuos/ ha en adelante (Fig. 3). Si bien no se presentó una relación significativa entre el tamaño de la especie y la densidad interespecífica (Cuadro 1), se observó una relación inversa entre ambos, ya que al aumentar el número de individuos/ha, el tamaño de los ejemplares tendió a disminuir (Fig. 4). Las dimensiones de A. latus tendieron a incrementarse con la profundidad, entre 50 y 300 m (Fig. 5) y con la disminución de la temperatura (Fig. 6). Con la latitud se observó un decrecimiento de los tamaños más o menos continuo (con algunos altibajos), desde antes de los 9°N hasta los 12°N (Fig. 7). Con la longitud se vio una disminución continua de las tallas entre 77°W y 74°W, para luego aumentar de los 74°W a los 72°W (Fig. 8).
Brissopsis atlantica (Spatangoida: Brissidae)
Todas las relaciones entre las variables predictivas y la talla de la especie resultaron significativas (Cuadro 1 y Cuadro 2); los modelos que mejor explicaron las variaciones de tamaño de los ejemplares examinados fueron la densidad interespecífica y la profundidad (Cuadro 1 y Cuadro 2). La relación con la riqueza de especies tuvo un leve aumento de tallas de 20 a 40 especies, diminución de 40 a 80 especies y un nuevo incremento de tamaño de 80 a 100 especies (Fig. 2). En cuanto a la densidad intraespecífica, entre 0 y 100 individuos/ha se vio un incremento de dimensiones, después una disminución hasta 600 individuos/ha, para aumentar nuevamente después de los 600 individuos/ha (Fig. 3). Respecto a la densidad interespecífica, hubo una notoria disminución en las tallas de B. atlantica entre 0 y 1 000 individuos/ha, luego aumentaron los tamaños entre 1 000 y 2 000 individuos/ha, y entre 2 000 y 3 000 individuos/ha se mantuvieron estables (Fig. 4). Con la profundidad se observó una disminución de las dimensiones de cero a 100 m, luego un aumento de 100 a 300 m seguida de una disminución no tan pronunciada hasta los 500 m, terminando en tamaños similares a los del inicio del gradiente batimétrico (Fig. 5). En términos generales, la relación entre las dimensiones de B. atlantica y la temperatura fue inversa (aumento de tamaños con la disminución de la temperatura), pero alrededor de los 25 °C se dio un aumento de tallas (Fig. 6). En el gradiente latitudinal hubo una disminución de tamaño más o menos constante desde los 9°N hasta cerca de los 11° N, aumentando nuevamente hasta más de los 12°N (Fig. 7). Longitudinalmente, se observó una marcada disminución de los tamaños de B. atlantica entre 75°W y 74°W (Fig. 8).
Brissopsis elongata (Spatangoida: Brissidae)
Todas las asociaciones entre las variables predictivas y las dimensiones de esta especie fueron significativas (Cuadro 1 y Cuadro 2), y los modelos que mejor explicaron los resultados obtenidos fueron la densidad intraespecífica y la latitud (Cuadro 2). La relación entre la talla y la riqueza parece ser inversa (Fig. 2). Respecto a la densidad intraespecífica, se vio en términos generales una merma en los tamaños con el incremento de individuos/ ha, principalmente entre 80 y 100 individuos/ ha (Fig. 3). La relación entre la talla y la densidad interespecífica no fue clara (Fig. 4). Los tamaños de B. elongata mostraron tendencias generales de aumento con el incremento de profundidad y disminución de temperatura (Fig. 5 y Fig. 6). Se presentó una tendencia al aumento en la talla de los ejemplares en el gradiente latitudinal, pero con una disminución entre 11°N y 12°N (Fig. 7). Respecto a la longitud, las dimensiones de B. elongata tuvieron un incremento pronunciado desde menos de 76°W hasta 75°W, y disminuyeron desde esta última hasta menos de 73°W, para aumentar nuevamente después de 73°W (Fig. 8).
Chasmocarcinus cylindricus (Decapoda: Chasmocarcinidae)
Las variables predictivas que presentaron una relación significativa con el comportamiento de los tamaños de la especie fueron: la profundidad, la densidad interespecífica, la riqueza (aunque con un valor marginal), la latitud y la longitud (Cuadro 1 y Cuadro 2). Las variables que mejor explicaron los cambios de talla fueron la temperatura y la profundidad Cuadro 2). La asociación entre las tallas y la riqueza tuvo un aumento de 0 a 50 especies, seguida por una disminución hasta las 100 especies, donde hubo un leve incremento de las dimensiones hasta llegar a 150 especies (Fig. 2). La relación entre el tamaño de los organismos y la densidad intraespecífica fue inversa, visualizándose una disminución de las dimensiones de C. cylindricus al aumentar la cantidad de individuos/ha (Fig. 3). En cuanto a la densidad interespecífica, se vio un leve pero progresivo aumento entre 0 y 2 000 individuos/ha, luego disminuyó considerablemente después de los 3 000 individuos/ha, para finalmente haber un abrupto aumento de tamaños hacia los 4 000 individuos/ha (Fig. 4). Se presentó una clara tendencia de aumento de las tallas de los individuos con el incremento de la profundidad (Fig. 5) y la disminución temperatura (Fig. 6). Latitudinalmente se reflejó un detrimento en los tamaños de C. cylindricus aproximadamente entre 8°N y 9°N, para después tener un notorio aumento hacia los 12°N (Fig. 7), resultado que es consecuente con el aumento de talla con la profundidad, ya que en el Caribe colombiano la latitud aumenta más o menos perpendicularmente con la línea de costa. Longitudinalmente, la talla de la especie disminuyó de 77°W a 75°W, luego aumentó marcadamente de 75°W a 72°W, y disminuyó nuevamente hasta los 71°W (Fig. 8).
Cosmioconcha nitens (Neogastropoda: Columbellidae)
Esta especie presentó asociaciones significativas con todas las variables predictivas analizadas, excepto con la longitud (Cuadro 1 y Cuadro 2). De estas, las que mejor explicaron la variación de los tamaños hallados fueron la riqueza de especies y la densidad interespecífica (Cuadro 1). La primera tuvo una relación inversa con la talla de los ejemplares hasta las 80 especies, de 80 a 100 especies aumentaron las dimensiones nuevamente (Fig. 2). Con la segunda se observó un aumento de tamaños entre 1 000 y 3 000 individuos/ha y luego una disminución de 3 000 a 3 500 (individuos/ha, Fig. 4). Hubo una tendencia a la disminución de las dimensiones de C. nitens con la profundidad en casi todo el ámbito batimétrico abarcado (0 a 300 m, Fig. 5). Los tamaños decrecieron con la temperatura entre 14 °C y 18 °C, y después aumentaron de 18 °C a 26 °C (Fig. 6). La talla de la especie disminuyó con la densidad intraespecífica entre 0 y 20 individuos/ha; y de 20 a 40 individuos/ha aumentó (Fig. 3). Geográficamente, se observó un claro incremento de tamaños, latitudinalmente de 10°N a 12.5°N, y longitudinalmente, de 76°W a 71°W (Fig. 7 y Fig. 8).
Eudolium crosseanum (Littorinimorpha: Tonnidae)
Todas las variables predictivas tuvieron asociaciones significativas con los cambios en tamaño de E. crosseanum, con excepción de la densidad intraespecífica (Cuadro 1 y Cuadro 2). Las variables que mejor explicaron las variaciones de talla de la especie en el Caribe colombiano, fueron la profundidad y la temperatura (Cuadro 2). En cuanto a la asociación entre la riqueza de especies y el tamaño de los organismos, se vio una disminución de tallas con el incremento del número de especies (Fig. 2). Tanto la densidad intraespecífica como la interespecífica tuvieron una relación inversa con las dimensiones de E. crosseanum, ya que a medida que aumentaba el número de individuos por hectárea, disminuía la talla de los especímenes (Fig. 3 y Fig. 4). Se vio una clara tendencia al aumento del tamaño de la especie con la profundidad, y consecuentemente las mayores tallas se registraron en sitios con menores temperaturas (en un gradiente de 10°C a 25 °C, Fig. 5 y Fig. 6). Geográficamente, el tamaño de E. crosseanum disminuyó de 9°N a 10°N de latitud, luego aumentó de 10°N hasta cerca de los 12°N, y disminuyó nuevamente (Fig. 7). Longitudinalmente, sus tallas no variaron considerablemente; las mayores dimensiones se encontraron antes de los 76°W y las menores después de los 72°W (Fig. 8).
Nuculana acuta (Nuculida: Nuculidae)
Las tallas de la especie se asociaron significativamente con todas las variables predictivas, y de estas, las variables que más explicaron las variaciones de tamaño fueron la temperatura y la longitud (Cuadro 1 y Cuadro 2). La relación entre la riqueza de especies y las dimensiones de este bivalvo indicaron una disminución de tamaños entre el rango de 40 y 60 especies (Fig. 2). La asociación entre la densidad intraespecífica y las tallas de N. acuta mostró una tendencia general de decrecimiento de tamaños con la abundancia de individuos/ha (Fig. 3). Con la densidad interespecífica se dio un incremento de tallas hasta los 4 000 individuos/ha; de 4 000 a 6 000 individuos/ha los tamaños decrecieron hasta ser menores que las dimensiones registradas con los valores más bajos de densidad (Fig. 4). En el perfil batimétrico, se vio un decrecimiento de tamaños de cero a cerca de 200 m, luego un aumento de 200 a 300 m, terminado con una decrecimiento de 300 a 500 m (Fig. 5). En el gradiente de temperatura, se presentó un decrecimiento de tallas de 30 °C a 25 °C, después un incremento de 25 °C a 15 °C y finalmente, las dimensiones disminuyeron marcadamente de 15 °C a 10 °C (Fig. 6). Latitudinalmente, se evidenció una marcada disminución de tamaños hacia los 10°N (Fig. 7). Longitudinalmente, se observaron las menores dimensiones entre los 76°W y 74°W y un aumento después de 74°W, hasta alcanzar las mayores tallas hacia los 72°W (Fig. 8).
Achelous spinicarpus (Decapoda: Portunidae)
Las siete variables predictivas empleadas en este estudio presentaron una relación significativa con los tamaños de la especie, y las variables que mejor explicaron las tendencias de cambio fueron la profundidad y la temperatura (Cuadro 1 y Cuadro 2). Las dimensiones de A. spinicarpus tendieron a disminuir con el incremento de la riqueza de especies (Fig. 2). En cuanto a las densidades intraespecífica e interespecífica, hubo una tendencia general a la disminución de los tamaños con el incremento del número de individuos/ha, pero las tallas aumentaron hacia los mayores valores en ambas variables (Fig. 3 y Fig. 4). Se encontró un claro aumento del tamaño de los ejemplares de A. spinicarpus en el perfil batimétrico (entre 0 y 500 m, Fig. 5). En el gradiente térmico también se observa una notoria tendencia al aumento de las dimensiones de estos cangrejos de temperaturas altas a bajas (de 30 °C a 10 °C, Fig. 6). Las variaciones de las tallas con respecto a la latitud y la longitud, indican una disminución paulatina de los tamaños del sur-oeste a nor-este del Caribe colombiano (Fig. 7 y Fig. 8).
Discusión
Los resultados demuestran que seis especies (Astropecten alligator, Anasimus latus, Brissopsis elongata, Chasmocarcinus cylindricus, Eudolium crosseanum, Achelous spinicarpus) incrementaron su tamaño corporal con el aumento de la profundidad del lecho marino y la disminución de la temperatura. Esto es contrario a lo que ha sido considerado como la característica más sobresaliente de los invertebrados (meiofauna, macrofauna y megafauna bentónica) en el ámbito batimétrico, que es la disminución en tamaño a medida que aumenta la profundidad (Thiel, 1975; Soetaert & Heip, 1989; Gage & Tyler, 1991; Warwick & Clarke, 1996; Rex et al., 1999; Olabarria & Thurson, 2003; Rex et al., 2006; Soetaert et al., 2009; van der Grient & Rogers, 2015) y tampoco refleja lo planteado en el modelo teórico de talla óptima, que predice igualmente menor tamaño de los organismos con el incremento de profundidad (Sebens, 1982; 1987). Dicho modelo se basa en la interacción entre ingestión, costo y excedente. La talla óptima se alcanza al presentarse la mayor diferencia entre ingestión y costo, quedando así más energía para reproducción y/o crecimiento. Cuando toda la energía excedente es invertida en crecimiento, se alcanza la talla máxima. Los modelos de talla óptima para invertebrados marinos indican una disminución del tamaño corporal con la profundidad (Sebens, 1982; 1987) debido a la disminución de la oferta de alimento hacia zonas profundas (Sanders & Hessler, 1969; Parsons et al., 1977; Lampitt et al., 1986; Hoey et al., 2004); esto reduciría la ingestión y aumentaría el costo de las funciones de alimentación con la profundidad, quedando menos energía para crecimiento.
Contrario a lo anterior, la disminución de alimento disponible con la profundidad podría inducir tamaños grandes, postulando que organismos de mayor talla son metabólicamente más eficientes por unidad de masa. Así, el costo energético para mantener una biomasa dada sería menor que el requerido por organismos pequeños para mantener la misma biomasa; por lo anterior, ejemplares de mayores dimensiones pueden maximizar el aprovechamiento de los escasos nutrientes en zonas profundas (Peters, 1983; Mahaut et al., 1995; Rex & Etter, 1998; Rex et al., 1999). Acorde a lo mostrado para las seis especies mencionadas, los resultados aquí dan soporte a esta última hipótesis, aunque no se puede desconocer que en el ámbito batimétrico de este estudio (10 a 500 m) los aportes continentales de nutrientes pueden ser importantes, como la contribución del río Magdalena y el transporte eólico de nutrientes del desierto al mar en La Guajira. Estos casos se discuten en detalle más adelante.
Aspectos adicionales que pueden promover tamaños grandes incluyen menor vulnerabilidad a la depredación y abarcar áreas más extensas para conseguir alimento accediendo a más ítems alimentarios, lo que les proporciona una ventaja competitiva sobre organismos más pequeños (Woodward et al., 2005). El aumento de masa corporal es una adaptación ante la depredación, especialmente importante para especies epifaunales de movimiento lento (Gage & Tayler, 1991). Probablemente la tendencia al incremento de tallas de Astropecten alligator, Brissopsis elongata y Eudolium crosseanum esté relacionada con la estrategia adaptativa mencionada, ya que se caracterizan por su limitada movilidad (e.g., Zulliger & Lessios, 2010).
La tendencia más marcada de incremento de talla con el aumento de profundidad y disminución de temperatura, fue exhibida por los crustáceos Chasmocarcinus cylindricus y Achelous spinicarpus. Algunos crustáceos oportunistas que consiguen alimento escarbando en el sedimento desarrollan grandes tamaños en zonas profundas, como una estrategia alimentaria relacionada con la necesidad de lograr alta movilidad para localizar fuentes de comida, que son más dispersas a mayores profundidades (Gage & Tayler, 1991; Hoey et al., 2004). Hay que resaltar que, de todas las especies seleccionadas para este estudio, los crustáceos Brachyura se destacan por ser los organismos que cuentan con mayor capacidad de desplazamiento.
De acuerdo a los resultados, la tempera tura puede ejercer un efecto importante en la determinación de las dimensiones de los invertebrados estudiados, ya que para seis especies (Astropecten alligator, Anasimus latus, Brissopsis elongata, Chasmocarcinus cylindricus, Eudolium crosseanum y Achelous spinicarpus) fue una de las variables predictivas que mejor explicó los cambios de tamaño observados. La temperatura tiene un rol crucial en la determinación de las tallas de los invertebrados marinos (y de los organismos poiquilotermos en general), ya que la tasa metabólica varía con la temperatura. Así, un aumento de 10 °C dobla el “costo” metabólico (ley de Van Hoff), quedando menos energía disponible para que los individuos crezcan y se reproduzcan (Sebens, 1987). Teniendo en cuenta que todas las especies que mostraron un incremento de las dimensiones corporales con la disminución de la temperatura, se distribuyeron en ámbitos batimétricos que superaron 10 °C de diferencia entre zonas someras (alrededor de los 10 m de profundidad) y profundas (hasta 500 m), es posible que el aumento de tamaños se deba (al menos parcialmente) a la merma del “costo” metabólico por la disminución de temperatura en zonas más profundas, quedando así más energía disponible para que estos organismos crezcan.
Dichos resultados son afines con los de otros estudios, ya que inclusive variaciones mínimas en temperatura entre hábitats, pueden propiciar notorias diferencias en los tamaños máximos observados, tasas de crecimiento y distribución de frecuencia de tallas de las poblaciones de invertebrados marinos (Atkinson & Sibly, 1997). Se ha documentado que el tamaño de muchos poiquilotermos puede ser incrementado experimentalmente sometiendo a los ejemplares a bajas temperaturas. O’Dea, Rodriguez & Romero (2007) estimaron que una disminución de tan solo 1 °C, tanto en condiciones controladas como en el medio natural, puede causar un aumento del 5 % del tamaño del briozoo Cupuladria exfragminis. En diferentes ambientes terrestres y marinos, se ha encontrado que los animales tienden a ser de mayor talla en los hábitats más fríos o en las partes más frías de su ámbito geográfico, probablemente como una adaptación para la retención de calor y conservación de la energía, patrón que ha sido llamado por algunos autores “la regla temperatura-talla” (en inglés the temperature size rule) (Gage & Tayler, 1991; Atkinson, 1994; Angilletta & Dunham, 2003).
A diferencia de las especies mencionadas hasta aquí, el molusco Cosmioconcha nitens exhibió una tendencia general hacia la disminución de la talla con la profundidad (hasta aproximadamente 250 m, aunque de 250 a 300 m los tamaños aumentaron nuevamente), y no mostró un patrón de cambio de talla claro con la temperatura. Es posible que esta variación de tamaño esté relacionada con una estrategia alimentaria, ya que en otros moluscos como los del género Microgloma, la aparente tendencia hacia la miniaturización ha sido atribuida a una intensa selección natural para responder a la escasez de partículas de alimento en los sedimentos de mar profundo, permitiéndole al animal una selección más minuciosa de partículas de mayor valor nutricional. Debido a que estos individuos son macrófagos, tienen la capacidad de “evaluar” cada partícula potencial de alimento antes de ingerirla (Gage & Tyler, 1991).
Las dos especies restantes, Brissopsis atlantica y Nuculana acuta no mostraron un patrón de variación de tamaño muy claro con respecto a los gradientes de temperatura y profundidad (aunque B. atlantica mostró cierta tendencia a aumentar su talla con el aumento de profundidad y disminución de temperatura). Este resultado puede deberse a que otras variables diferentes a la profundidad y la temperatura pueden estar influyendo en la determinación de la talla de estas especies. De hecho, la densidad interespecífica fue la variable que mejor explicó los cambios de dimensiones de B. atlantica, y la longitud resultó ser la segunda variable predictiva más importante para N. acuta. Las relaciones de las dimensiones corporales con dichas variables se discuten más adelante.
Cinco especies mostraron, en términos generales, una tendencia a la disminución de sus tamaños con el incremento de la densi dad intraespecífica (Brissopsis atlantica, Chasmocarcinus cylindricus, Eudolium crosseanum, Achelous spinicarpus y Nuculana acuta), y tres (Anasimus latus, E. crosseanum y A. spinicarpus) con el aumento de la densidad interespecífica; en el resto de las especies no se vieron tendencias definidas con respecto a estas dos variables. En muchos ecosistemas terrestres y dulceacuícolas se ha registrado que con el aumento de la abundancia de individuos se encuentran más ejemplares pequeños que grandes (May, 1988; Reuman & Cohen, 2004; Woodward et al., 2005). Generalmente, en zonas marinas someras, también se presenta una relación inversa entre talla y densidad. Por ejemplo, los asteroideos de aguas poco profundas alcanzan tamaños mucho más grandes en poblaciones con baja densidad, por una menor competencia por presas (Paine, 1976). Otro molusco, Acmaea scabra también presenta patrones de talla similares a los anteriores, con respecto a la densidad (Sutherland, 1970). Como los mencionados, existe un número importante de estudios sobre diferentes grupos de invertebrados marinos de aguas someras, en los que se registra una relación inversa entre la talla de los ejemplares y los niveles de densidad (Sebens, 1987).
A pesar de lo anterior, en los resultados de este trabajo no se ve reflejada contundentemente la relación inversa entre densidad y talla postulada, pero esto es consecuente con los hallazgos de estudios de mar profundo que indican que a diferencia de lo que se observa en zonas someras, hacia aguas profundas, la relación entre talla y densidad no es muy evidente, a pesar de que se presenta una notoria disminución de la densidad de individuos bentónicos con la profundidad (debido a la disminución en la oferta de alimento hacia zonas profundas) (Abele, 1974; Tietjen et al., 1989). Se ha observado que las tallas promedio de los individuos pueden decrecer, aumentar, o no cambiar, a pesar de la disminución paulatina de la abundancia de organismos en el perfil batimétrico (Rex & Etter, 1998).
Tampoco se observó una relación muy clara entre la riqueza (número de especies) y las dimensiones corporales de las especies estudiadas. Tres de ellas (Anasimus latus, Eudolium croseanum y Achelous spinicarpus) mostraron una tendencia a la disminución del tamaño de los ejemplares con el incremento del número de especies acompañantes. La relación entre la talla y la riqueza ha sido más estudiada en ambientes terrestres que en marinos. Según May (1988), en general, los animales terrestres muestran una relación inversa entre la talla y la riqueza, principalmente por el agotamiento de recursos que se puede dar, al aumentar la cantidad de especies presentes en una misma área.
Por otra parte, Rex y Etter (1998) en su estudio sobre gasterópodos de mar profundo al oeste del Atlántico Norte, encontraron que el aumento en tamaño de los ejemplares con la profundidad, era acompañado por una disminución en la riqueza, y sugieren que la baja oferta de alimento en zonas profundas, no permite la coexistencia de muchas especies grandes. Lo anterior es consecuente con lo encontrado en el presente estudio, ya que las tres especies que mostraron una relación inversa entre la talla y la riqueza, también presentaron un aumento de envergadura corporal con el incremento de la profundidad, así que, probablemente, la disminución en la disponibilidad de nutrientes hacia zonas profundas impide que muchas especies grandes convivan. Además, la teoría alométrica indica que los organismos más grandes generan una mayor demanda energética total en el ambiente que los organismos pequeños (McMahon, 1973), y la hipótesis de “la riqueza de especies dependiente de la energía” dice que el número de especies que puede coexistir en una zona, está limitada por la disponibilidad de energía. No obstante, no se puede desconocer que otros factores que no se incluyeron en este estudio, como la heterogeneidad espacial, también pueden influir en la riqueza de especies (Tecchio et al., 2011).
Al analizar el comportamiento de las dimensiones corporales de las especies estudiadas en el ámbito geográfico, se hizo evidente una marcada disminución de tallas en la mitad del Caribe colombiano, que se observó prin cipalmente en Astropecten alligator, Anasimus latus, Brissopsis atlantica, B. elongata, Chasmocarcinus cylindricus y Nuculana acuta. Esta disminución de tamaños se presentó específicamente hacia la desembocadura del río Magdalena. Este río produce grandes cambios físico-químicos en el ambiente marino, que pueden estar relacionados con las menores tallas de los invertebrados estudiados en su área de influencia.
El río Magdalena tiene un caudal promedio de 650 m3.s-1, y el efecto de ese gran volumen de agua sobre la salinidad es importante (Márquez, 1982). Además cerca de la desembocadura, se presentan fuertes corrientes (turbiditas), inestabilidad del fondo y gran transporte de sedimentos (aproximadamente una tonelada por segundo) (Arcos-1, ISA & CIOH, 2000), lo que puede impedir o limitar el establecimiento y normal desarrollo de algunas especies de invertebrados. La pluma del Magdalena acarrea aproximadamente 125 millones de m3 de sedimentos al año, razón por la cual, las aguas del sector permanecen turbias (Molina, Pelgrain, Suzunaga, & Giraldo, 1996). A pesar de que el Magdalena es considerado una fuente de fertilización de las aguas marinas de la región (Blanco, 1988), debido a la turbidez que provoca, el área de influencia de su desembocadura es la zona con menos productividad primaria planctónica de toda la costa norte de Sur América (Márquez, 1982), y esta puede ser la principal causa de que las menores dimensiones corporales de las especies estudiadas, se hayan presentado en este sector, ya que normalmente, el tamaño alcanzado por los organismos bentónicos, depende de los nutrientes que son generados en la superficie por los productores primarios, y que luego son transportados hacia el fondo marino.
Por otra parte, hacia el norte de la desembocadura del río Magdalena se detectó un marcado aumento de tamaños (74° - 71°W y 11° - 13°N) en siete de las nueve especies estudiadas (Astropecten alligator, Anasimus latus, Brissopsis atlantica, B. elongata, Chasmocarcinus cylindricus, Cosmioconcha nitens, Nuculana acuta), lo que puede estar relacionado con los eventos de surgencia que se presentan en la parte norte del Caribe colombiano. Con base en análisis históricos de corrientes, temperaturas superficiales y profundidades de la termoclina, se ha definido que el área de surgencia significativa se extiende desde Punta Gallinas (71°39’ W), a lo largo de la costa hasta los 75°W (Bula, 1977, Andrade & Barton 2005). En esta área, se produce el ascenso vertical de masas de aguas profundas, frías y ricas en nutrientes, propiciando una mayor productividad planctónica superficial (Álvarez-León et al., 1995). En diferentes áreas con eventos de surgencia alrededor del planeta, se ha documentado que la productividad superficial conduce a incrementar la abundancia y biomasa de los organismos bentónicos (Gage & Tayler, 1991; Lavaleye, Duineveld, Berghuis, Kok, & Witbaard, 2002). Este mismo comportamiento, se presenta en el norte del Caribe colombiano, ya que diferentes autores indican que la surgencia da lugar a capturas de más peso individual total, mayor talla y mejor estado de bienestar de los organismos capturados (Álvarez-León et al., 1995; CrialesHernández, García, & Wolf, 2006).
De acuerdo con los resultados del presente estudio, los tamaños de los organismos bentónicos asociados a fondos sedimentarios en el Caribe colombiano, parecen ser determinados en gran medida por la disminución de la temperatura en el perfil batimétrico, posiblemente como una estrategia adaptativa para la maximización de la energía. Otros factores físicos y bióticos, tales como la influencia de fuertes descargas continentales, diferencias en productividad primaria entre áreas y eventos de surgencia, también parecen influenciar la talla de estos organismos, principalmente en zonas someras. Futuros estudios en ambientes tropicales podrían explorar cómo varía el tamaño del megabentos a mayores profundidades (más de 500 m) donde la temperatura es relativamente invariable (Andrade & Barton, 2005) y por ende otros factores pueden ser más determinantes.
La evidencia presentada en relación a la tendencia al aumento de tallas con la profundidad e inversa con la temperatura es contraria a lo indicado por los modelos teóricos de talla óptima que predicen un decrecimiento del tamaño de los organismos con el incremento de la profundidad, debido a la disminución de nutrientes hacia zonas profundas del océano. El aumento de tamaño observado en este estudio favorece más las hipótesis que postulan tamaños corporales grandes en la megafauna profunda como una estrategia adaptativa para la optimización del gasto energético, como ocurre con muchos organismos en las porciones más frías de su ámbito de distribución. Futuros estudios en el Caribe deberían examinar variaciones en la talla de la megafauna bentónica en zonas más profundas que las abarcadas por este estudio, donde la temperatura es más estable, por lo cual, otros factores pueden ser de mayor importancia para determinar el tamaño de los organismos.

