


 Spanish (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
 Cited by SciELO
 Similars in
SciELO
 uBio

 Permalink

En la dinámica de poblaciones, la comprensión y caracterización del crecimiento individual es de suma importancia porque este proceso, junto con la supervivencia, determina la magnitud del recurso. Del mismo modo, al obtener un conocimiento detallado sobre el patrón de crecimiento de una especie se logrará estimaciones más precisas sobre el tamaño de la población y su disponibilidad para la explotación (Arreguín, Sánchez, & Defeo, 1991; Castillo, Eslava, & González, 2011). Otro aspecto fundamental es la mortalidad que está relacionada con las dos principales causas a las que están expuestos los peces a lo largo de su vida: la mortalidad natural cuya acción es causada por depredación, enfermedad y vejez, y la mortalidad por pesca originada, por la acción del hombre (Csirke, 1980).
La familia Balistidae comprende unas 40 especies en todo el mundo, 10 de ellas se conocen en aguas colombianas, resaltando Canthidermis maculata y Melichthys niger por estar presentes en el Caribe y el Pacífico (Acero, Mejía, & Santos-Acevedo, 2002). También en las islas occidentales del archipiélago canario, España, algunas de estas especies tropicales son de importancia comercial, principalmente Canthidermis sufflamen y Decapterus macarellus (Brito, 2008). Por otro lado, en la isla de Trinidad situada 1 160 km de la costa brasileña se han reportado mortalidades masivas hasta de 99 %, posiblemente, vinculadas a la proliferación de algas tóxicas, cambios bruscos en la temperatura, ingreso de masas de agua dulce de los ríos o flujos causados por el exceso de lluvia a zonas costeras arrecifales característicos de esta zona (Pinheiro, Gasparini, & Joyeux, 2010).
En el estado Nueva Esparta, Venezuela, C. sufflamen es una especie relativamente abundante y de bajo precio, por lo que tiene una alta demanda en el mercado local (González, 2015, com. pers.). El tamaño de la flota artesanal de El Tirano durante la temporada de pesca 2012, estuvo constituida por 83 embarcaciones con motor fuera de borda llamados “peñeros” de 6 a 9 m de eslora, con las cuales se obtuvo una captura total de 786 110 kg. C. sufflamen ocupó el tercer lugar de la captura total con nasa, arte de pesca tipo trampa con un total de 84 638 kg (González, Eslava, Guevara, Díaz & Rodríguez, 2017, en prensa). Sin embargo, no se conocen estudios sobre crecimiento y mortalidad, información de índole periódica indispensable en la evaluación y toma de decisiones en la administración pesquera. Por tal razón, se decidió realizar esta investigación, con el fin de contribuir al conocimiento de la dinámica poblacional de este recurso para su aprovechamiento de manera sustentable.
Materiales y métodos
Los ejemplares de C. sufflamen fueron capturados con nasa, arte de pesca tipo trampa utilizada por la comunidad de pescadores de El Tirano que faenan en los archipiélagos Los Frailes y Los Testigos. Los Frailes está ubicado al noreste de la isla de Margarita del estado Nueva Esparta (11º11’30” N - 63º42’00” W) (Fig. 1). Los Testigos, ubicado en el sector nororiental del Mar Caribe venezolano a una latitud 11º20’47” - 11º24’46” N & 63º02’34” - 63º08’21” W formando parte de las Dependencias Federales de Venezuela (Villa, 1967; Cervigón, 1995). Por su situación geográfica, ambos archipiélagos juegan un papel preponderante en los planes estratégicos de Venezuela, que genera al país una Zona Económica Exclusiva rica en recursos pesqueros, turísticos y ecológicos (Ciro & Zambrano, 2007).
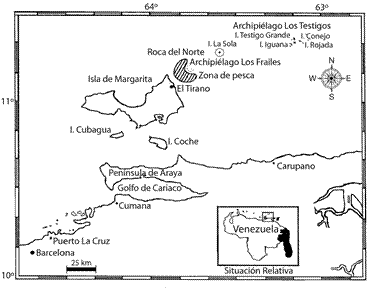
Fig. 1 The Fishing zone from Los Frailes and Los Testigos Archipelagos, Venezuela. Modification of González, Eslava and Guevara (2001).
Los muestreos se realizaron semanalmente en la playa de El Tirano, de mayo 2012 a abril de 2013, obteniéndose un mínimo de 200 y un máximo de 383 individuos por mes, incluyendo los meses de lluvia que son de mayo a septiembre. A cada ejemplar se le tomó la longitud total (L) en centímetros, el peso total (P) en gramos con una balanza marca Royal Universal con capacidad de 5 kg y apreciación de 1 g y la identificación del sexo se realizó mediante la observación macroscópica de las gónadas (Billings & Munro, 1974). Para determinar diferencias significativas entre la longitud media por sexo, se realizó la prueba de t-student (Zar, 2009). Se estableció la relación longitud-peso mediante la ecuación propuesta por Ricker (1975): P = a*Lb donde P es el peso total sin eviscerar en g, L es la longitud total en cm, “a” es la intersección con el eje de las ordenadas y “b” es la pendiente de la curva. Se probó la hipótesis del crecimiento isométrico mediante una prueba ts (Walpole, Myers, Myers, & Ye, 2007) con un nivel de significancia de α = 0.05; teniendo como hipótesis Ho: b = 3 y Ha: b ≠ 3, los resultados de esta prueba fueron usados para determinar el tipo crecimiento: isométrico (b = 3), alométrico minorante (b < 3) o alométrico mayorante (b > 3).
La estimación del crecimiento se basó en las distribuciones mensuales de frecuencia de longitudes con un rango de 2 cm, para ello se usó el software FiSAT (Gayanilo, Sparre, & Pauly, 1996). En primer lugar, se determinó una longitud asintótica (L∞) preliminar aplicando el método de Powell (1979) y Wetherall (1986), que permitió estimar el coeficiente de crecimiento (k) a través de la rutina ELEFAN I, la misma que se ajustó a la función de von Bertalanffy (1938) por un método no paramétrico, a través de interacciones, donde la curva óptima que cruza el mayor número de picos posibles es seleccionada por una bondad de ajuste que se determina por el coeficiente de la suma de las modas disponibles entre la suma de modas explicadas (de León, 2005). Para la optimización de los parámetros de L∞ y de k, se empleó el procedimiento de Gulland y Holt (1959) asociado en la misma rutina, la cual se realizó previo análisis de la progresión modal utilizando la descomposición de frecuencia de longitudes según el método de Bhattacharya (1967). Luego, se calculó to de acuerdo a la formula anotada por Pauly (1979): log10(-to) = - 0.3922 - 0.2752*log10L∞ - 1.038*log10k, donde to es la edad hipotética a la cual la longitud es cero, L∞ es la longitud asintótica promedio máxima y k, es la constante de crecimiento o coeficiente de curvatura. Para determinar la edad límite o longevidad de un pez, se utilizó la ecuación de Taylor (1958): A0.95 = to + 2.996 / k, donde A0.95 es la edad límite teórica o tiempo requerido para que el pez alcance el 95 % de su longitud máxima (L∞). El peso asintótico de determinó mediante la ecuación anotada por Csirke (1980): P∞ = a*L∞b donde P∞ es el peso asintótico o peso máximo. Una vez calculados los parámetros L∞, P∞, k y to, se procedió a establecer las curvas de crecimiento en longitud y peso, según el modelo de von Bertalanffy (1938): L = L∞[1 - e-k(t-to)]; P = P∞[1 - e-k(t-to)]b porque se pueden incorporar fácilmente a modelos de evaluación de poblaciones (Gulland, 1971a). Se estableció el índice de crecimiento phi prima (Ø′) de acuerdo a la fórmula establecida por Pauly & Munro (1984): Ø′ = log10k + 2 log10L∞.
La mortalidad total Z se calculó utilizando el método de la curva de captura linearizada (Pauly, 1983): lnC(L1,L2) / Δt(L1,L2) = c - Z*t(L1 + L2 / 2). La mortalidad natural M se evaluó mediante la ecuación de Pauly (1980): log10 (M) = - 0.0066 - 0.279*log10L∞ + 0.6543*log10k + 0.4634*log10T, para una temperatura superficial media del agua de T = 27ºC de los archipiélagos Los Frailes y Los Testigos, obtenida del Centro Internacional para la Investigación del Fenómeno de El Niño (CIIFEN). La mortalidad por pesca F se calculó aplicando la ecuación citada por Sparre y Venema (1997) F = Z - M, y la tasa de explotación E según la ecuación propuesta por Gulland (1971b) E = F / Z.
Resultados
Se examinó un total de 3 595 individuos con longitudes comprendidas entre 13 cm y 58 cm (Media = 30.58 cm ± 4.54) y pesos que oscilaron entre 53 g y 2 180 g (Media = 413.5 g ± 156.38), observándose la menor y mayor longitud en el mes de enero 2013 (Cuadro 1). No se encontraron diferencias estadísticamente significativas para la longitud entre hembras y machos (ts = 0.96; p > 0.05), por lo que se trataron los sexos combinados, para la determinación de crecimiento y mortalidad. Las longitudes con mayor frecuencia estuvieron comprendidas entre los 29 cm y 33 cm (Fig. 2), siendo la de 30 cm la más abundante durante los meses de julio, agosto y noviembre (Fig. 3).
Cuadro 1 Ejemplares recolectados de Canthidermis sufflamen durante mayo 2012-abril 2013 en los archipiélagos Los Frailes y Los Testigos, Venezuela
| - | - | - | Longitud (cm) | - | - | Peso (g) | - |
|---|---|---|---|---|---|---|---|
| Mes/año | n | Min - Max | Media | DE± | Min - Max | Media | DE± |
| May-12 | 210 | 24 - 38 | 30 | 2.83 | 196 - 700 | 365 | 96.3 |
| Jun-12 | 313 | 16 - 45 | 29 | 3.73 | 66 - 1 187 | 370 | 123.24 |
| Jul-12 | 370 | 19 - 49 | 30 | 3.83 | 118 - 1 228 | 400 | 123.49 |
| Ago-12 | 383 | 14 - 45 | 30 | 3.74 | 53 - 1 168 | 401 | 127.36 |
| Sep-12 | 323 | 16 - 45 | 29 | 5.7 | 64 - 1 000 | 387 | 171.8 |
| Oct-12 | 282 | 21 - 51 | 30 | 4.42 | 149 - 1 624 | 414 | 164.23 |
| Nov-12 | 382 | 18 - 55 | 30 | 5.01 | 71 - 1 369 | 399 | 161.79 |
| Dic-12 | 315 | 19 - 44 | 31 | 4.46 | 113 - 885 | 447 | 174.88 |
| Ene-13 | 204 | 13 - 58 | 30 | 5.7 | 56 - 2 180 | 411 | 226.79 |
| Feb-13 | 222 | 25 - 53 | 36 | 5.45 | 219 - 1 568 | 547 | 214.26 |
| Mar-13 | 351 | 22 - 48 | 31 | 4.07 | 168 - 946 | 396 | 117.97 |
| Abr-13 | 240 | 18 - 45 | 31 | 5.62 | 89 - 1 118 | 425 | 174.26 |
| TOTAL | 3 595 | - | 30.58 | 4.54 | - | 413.5 | 156.36 |
n = número ejemplares examinados; Min = valor mínimo; Max = valor máximo; Media = valor medio; DE = desviación estándar.
n = number of specimens examined; Min = minimum value; Max = maximum value; Media = mean value; DE = standard deviation.
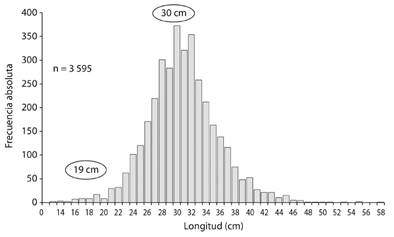
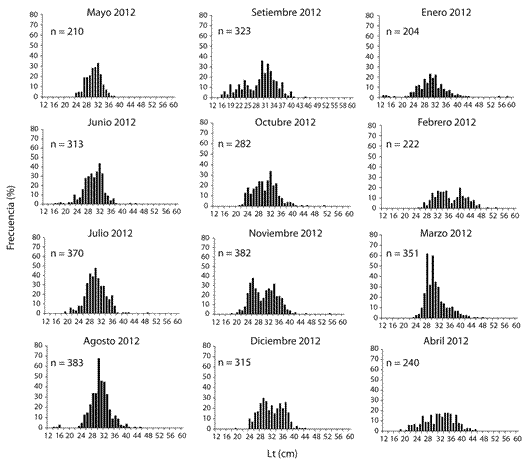
Fig. 3 Frequency distribution of monthly lengths of Canthidermis sufflamen during May 2012-April 2013.
Crecimiento: La relación longitud-peso quedó establecida como P = 0.167*L2.26 siendo la intercepción a = 0.167 y la pendiente b = 2.26 significativamente diferente a 3 (ts = 43.81; p < 0.05) (Fig. 4). La primera estimación de L∞ = 61.69 cm fue utilizada como dato de entrada en la superficie de respuesta en el ELEFAN I para la estimación del coeficiente de curvatura, que luego de varias corridas se obtuvo un k = 0.36 / año. Posteriormente, se aplicó la rutina de (Gulland & Holt, 1959) la cual proporcionó valores adicionales de L∞ (49.15 cm) y k (2.329 / año), que fueron descartados debido a que no correspondieron a las características biológicas de la especie. El to = -0.654 años y k = 0.36 / año calculados permitió determinar la edad máxima teórica (A0.95) en 8 años. Con los valores de las constantes de la relación longitud-peso y L∞ se estimó el P∞ = 1 868.402 g. La curva de crecimiento en longitud describió una curva de tipo exponencial, acelerado en el primer año de vida, alcanzando aproximadamente, el 44 % de su longitud asintótica, y luego disminuyó lentamente hasta lograr la longitud máxima teórica (Fig. 5A). Mientras que la curva de crecimiento en peso delineó una curva de tipo sigmoideo, donde el primer año de vida tuvo un crecimiento lento, para luego crecer de forma exponencial y así finalmente, conseguir su peso asintótico (Fig. 5B). El índice de crecimiento phi prima fue Ø′ = 3.14.
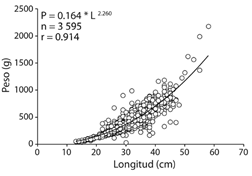
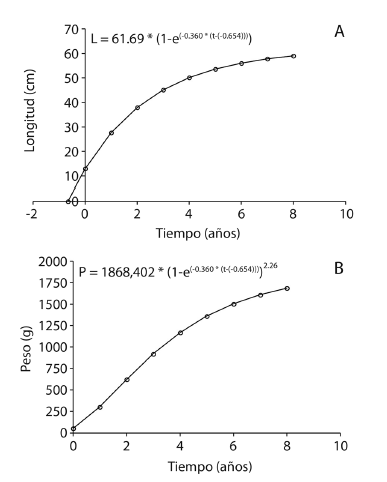
Fig. 5 (A) Growth curve in length of Canthidermis sufflamen, according to the von Bertalanffy model (1938). (B) Growth curve in weight of Canthidermis sufflamen, according to the von Bertalanffy model (1938).
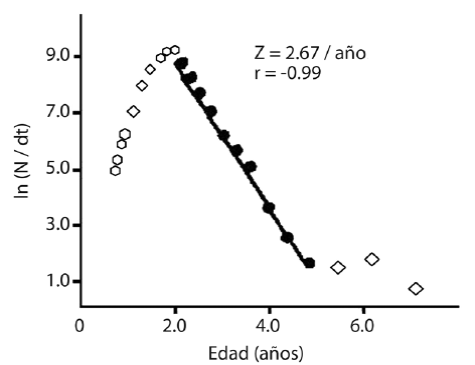
Mortalidad: La mortalidad natural M establecida para Canthidermis sufflamen fue de 0.73 / año y la mortalidad total Z de 2.67 / año (Fig. 6), con las cuales se pudo determinar la mortalidad por pesca F = 1.93 / año, y la tasa de explotación E = 0.72 / año.
Discusión
La ausencia de ejemplares pequeños en los muestreos pudo deberse, a dos probables causas: a) la selectividad del arte de pesca utilizado (nasa) que controla la retención y fuga de los peces, debido a que la entrada o embudo regula el tamaño máximo y la malla de revestimiento limita la talla mínima retenida (Pope, Margetts, Hamley, & Akyuz, 1983; Slack-Smith, 2001), y b) la disponibilidad del recurso en el área de pesca, porque los juveniles se encuentran en zonas de crecimiento hasta el desarrollo de las gónadas, momento en que se reclutan al stock de adultos, es decir, probablemente exista una segregación espacial en este organismo (Lindeman, 1989). Las mediciones máximas de longitud y peso examinadas en enero (58 cm y 2 180 g) difieren a los reportados por (Lieske & Myers, 1994) en el Atlántico (65 cm y 6 100 g).
La relación longitud-peso evidenció un crecimiento alométrico minorante (b < 3) lo que significa que el pez es menos pesado para la longitud que tiene (Ehrhardt, 1981; Pauly, 1993; Zúñiga, 2009). Los valores de las constantes pueden variar entre las especies y estar relacionado con el tamaño de la muestra, época del año, alimentación, estado de madurez, factores ambientales y con el rápido crecimiento en las primeras etapas de vida, donde cada una de ellas puede presentar una determinada relación entre la longitud y el peso (Tresierra & Culquichicón, 1993; Gómez, Guzmán, & Chacón, 2002). Generalmente, las poblaciones de peces de menor tamaño utilizan la energía para crecer rápido con el objetivo de alcanzar pronto la madurez sexual y así evitar la extinción de la especie, debido a la alta explotación pesquera en una zona determinada (do Santos, Pessanha, da Costa, & Araújo, 2004).
La falta de tallas pequeñas e individuos adultos podría ser la causa principal de subestimación del parámetro de k y sobreestimación de L∞, debido a la correlación que existe entre los parámetros de crecimiento del modelo de von Bertalanffy (Cubillos, Aguayo, Neira, Sanhueza, & Castillo-Jordán, 2009; Zúñiga, 2009). Las estimaciones de la longitud asintótica y el coeficiente de curvatura permitieron inferir que es un pez de crecimiento discretamente bajo, de acuerdo con los parámetros del ciclo de vida para poblaciones de peces reportados por Musick (1999). El valor negativo obtenido de to indica que los individuos pequeños crecen más rápidamente (de manera exponencial) que los adultos. Una información de parámetros biológicos de larvas podrían ayudar a realizar una mejor estimación de to, parámetro asociado biológicamente con la eclosión del huevo, que técnicamente se refiere al origen de la curva o la edad teórica del organismo a la cual tiene una longitud igual a cero (Prince, Lee, & Conser, 1987). Si no se tiene una buena representación del grupo de edad 0, se puede sobre-estimar L∞ y sub-estimar k y to (Cota, 2008). Las variaciones de los parámetros de crecimiento pueden deberse a diferencias en el hábitat y sus características ambientales particulares, como la temperatura superficial del mar (Charnov & Gillooly, 2004) y el fotoperiodo, las cuales pueden variar estacionalmente y estar correlacionadas con la presión de los depredadores, cambios en la disponibilidad, abundancia y calidad del alimento (ciclos de producción del mar), factores intrínsecos de la especie (Carpenter, 2002), así como los regímenes de explotación a los que están sometidos (Bravo, 2007). Con respecto a las curvas de crecimiento individual en longitud y peso, Kaufmann (1981) y Maroñas (2006) explicaron que al comienzo el crecimiento es rápido, luego decrece suavemente, repitiéndose las pautas año a año porque depende del resultado de dos fuerzas opuestas, anabolismo y catabolismo (Zavatteri, 2010) lo que concuerda con el comportamiento en las curvas de crecimiento de C. sufflamen. No obstante el crecimiento en peso se va acelerando luego, hasta desarrollar una velocidad máxima cuando el pez ha alcanzado un peso que es aproximadamente 1 / 3 de su peso máximo (Ricker, 1975; Csirke, 1980), lo que para C. sufflamen fue 623 g.
Las mortalidades estimadas fueron altas (M = 0.73 / año, F = 1.93 / año y Z = 2.67 / año). La mortalidad natural M, posiblemente, esté relacionada con la cantidad de depredadores y competidores existentes cuya abundancia está influenciada por la pesca (Sparre & Venema, 1997), y, por otro lado, la estrategia de crecimiento durante las primeras etapas de vida, que permite a los individuos modificar la mortalidad natural (Tordecilla-Petro, SánchezBanda, & Olaya-Nieto, 2005). En segundo lugar, la mortalidad por pesca F exhorta explorar el efecto de la pesca sobre la población de peces, asignando un coeficiente de proporcionalidad para las muertes debido a la pesca (Sparre & Venema, 1997), y de esta manera poder distinguir con claridad entre esta mortalidad y aquellas causadas por otros factores. Ello significa que cada vez que un pez sobreviva a la mortalidad por pesca, tendrá que sobrevivir también a la mortalidad natural y viceversa, para llegar con vida al final de cada período, así de este modo se establece una competencia entre la mortalidad por pesca y otras causas de mortalidad (Csirke, 1980). En el caso de la mortalidad total Z explica un fuerte impacto de la pesca, cuyo efecto directo puede causar cambios en la abundancia, en relación a un ecosistema en equilibrio, y también en la estructura de tallas, con una reducción en las tallas máximas (Sparre & Venema, 1997). Según Gulland (1971b), la tasa de explotación E = 0.5 / año es el valor óptimo de una pesquería, por lo que se infiere que C. sufflamen está siendo sobre explotada debido a la alta valoración estimada de la tasa de explotación (E = 0.72 / año). Por consiguiente, se sugiere regular la pesquería, reduciendo la tasa de mortalidad por pesca, teniendo en cuenta que es la tercera especie importante en cuanto a sus volúmenes de captura de la flota artesanal de El Tirano, según lo reportado por González et al. (2017)
Se concluye que C. sufflamen no evidencia dimorfismo sexual con respecto a la longitud y presenta un crecimiento lento con una alta tasa de explotación, lo cual demuestra que la especie está sobre explotada por la pesca artesanal de El Tirano; por lo que se sugiere continuar con los estudios de la dinámica de poblaciones para evaluar la pesquería con fines de manejo.

