




 Espanhol (pdf)
 Artigo em XML
 Referências do artigo

 Tradução automática
 Enviar este artigo por email
 Citado por SciELO
 Similares em
SciELO
 uBio

 Permalink

El incremento en las emisiones de CO2 durante el último siglo, ha producido cambios en los océanos, produciendo aumento de la temperatura y disminución del pH en ellos (Intergovernmental Panel on Climate Change, 2007). En el caso particular del mar Caribe, Chollett, Mumby, Müller-Karger, y Hu (2012), reportan que la temperatura ha aumentado 1.41 °C durante el último siglo (de 0.19 °C a 0.27 °C por decenio), alcanzando una temperatura media de 28 °C. Por otra parte, Magaña Rueda, Graizbord, Buenfil Friedman y Gómez Mendoza (2009) sugieren que la temperatura en esta región podría ascender hasta los 31 °C hacia el año 2100.
Modelaciones de acidificación señalan que el pH de los océanos podría descender de 8.1 (media actual) a 7.6 hacia el año 2100 (Caldeira & Wickett, 2003; Orr et al., 2005). De acuerdo con Gledhill, Wanninkhof, Millero y Eakin (2008), se calcula que la presión parcial de CO2 (pCO2) en el Caribe ha aumentado + 2.2 µatm. año-1 durante el último siglo, produciendo una disminución de 0.05 unidades de pH.
Cambios en estos parámetros afectan directamente la dinámica de las poblaciones, especialmente a organismos calcificadores, los cuales son más vulnerables durante su fase larvaria (Sale et al., 2010).
Roller y Strickle (1989), observaron que al aumentar la temperatura (de 20 a 30 °C) se presenta un incremento en las tasas de desarrollo, crecimiento y mortalidad para Thais haemastoma canaliculata, por otra parte, Watson, Southgate, Tyler, y Peck (2009), mencionan que larvas de Saccostrea glomerata expuestas a reducción de pH (de -0.1 a -0.2 unidades) presentan disminución en sus tasas de crecimiento y desarrollo, así como una esqueletogénesis anormal.
Strombus gigas (Linnaeus, 1758) es un organismo con distribución metapoblacional en el Caribe, presenta un estadio larval, cuya cinética de desarrollo ha sido estudiada en condiciones normales de temperatura (28 - 29 °C), por lo que no se conoce el efecto que el incremento de temperatura y la disminución del pH ejercen durante su etapa larval. En este sentido, la finalidad del presente estudio fue evaluar el efecto del incremento de la temperatura y la acidificación en la eclosión, desarrollo, crecimiento, mortalidad y calcificación de la concha durante su fase larvaria.
Materiales y Métodos
Cultivo larval:
Se recolectó un segmento de masa ovígera de S. gigas recién desovada en Quintana Roo (20°19’00”N - 87°21’25” W, agosto 2015), la cual fue transportada para su cultivo a la estación Marina del Cinvestav-IPN (Telchac, Yucatán, 21°20’28” N - 89°18’25” W). La incubación de embriones y el cultivo larval se realizaron de agosto a octubre 2015, empleando la condición 28 °C - pH 8.1 como control y tres tratamientos de temperatura y pH (T1 = 28 °C - pH 7.6, T2 = 31 °C - pH 8.1, T3 = 31 °C - pH 7.6.), por triplicado. Los niveles de temperatura y pH utilizados se establecieron de acuerdo a las condiciones actuales y las proyecciones hacia 2100 para la región Norte del Caribe Mexicano (Caldeira & Wickett, 2003; Chollett et al., 2012; Magaña Rueda et al., 2009). La temperatura se controló utilizando calentadores para acuarios. El pH de los tratamientos se reguló mediante burbujeo, suministrando CO2 cada 4 hr. Temperatura y pH se monitorearon con un potenciómetro Oakton Mod. pH 5+.
En cada unidad de cultivo se colocó un segmento de masa ovígera de 15 cm de longitud (± 106 huevos por cm lineal). Se registró el tiempo a la eclosión (hr) para cada tratamiento. A partir de la eclosión, las larvas fueron distribuidas manualmente a unidades de cultivo de 5 L a razón de 160 larvas.L-1.
La alimentación se realizó por las mañanas (frecuencia: 24 hr), suministrando una mezcla de microalgas (Nannochloropsis oculata, Isochrysis galbana, Chaetoceros mulleri, Pavlovav sp. y Navicula sp.), a una concentración total de 1 000 cel.mL-1 por unidad de cultivo (200 cel.mL-1 de cada microalga por ración diaria).
Se realizaron recambios totales cada 5 días empleando agua de mar filtrada mediante filtros de polipropileno (5 µm) y esterilizada con UV. Se utilizaron mallas de 180 µm para la retención de las larvas.
Eclosión, desarrollo, crecimiento y mortalidad:
Se registró el tiempo inicial y final de eclosión para cada tratamiento, posteriormente, se contabilizó el número de huevos no eclosionados por segmento de masa ovígera. El porcentaje de eclosión se calculó de la siguiente manera:
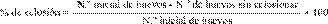
A fin de evaluar el desarrollo, cada 24 ICC50. El desarrollo se observó de acuerdo a hr usando una pipeta Pasteur se extrajeron 30 Brito-Manzano, Aldana-Aranda, de la Cruzlarvas por tratamiento, las cuales se observaron Lázaro, y Estrada-Botello (2006), los indica(in vivo) a través un microscopio óptico LEICA dores fueron: número de lóbulos del velum, número de espiras de la concha, corazón funcional (larval y adulto), opérculo, branquias (Fig. 1 A) y conducta nado-reptante. El crecimiento (N = 30 larvas por edad/tratamiento) y mortalidad fueron evaluados en larvas de 0, 10, 20 y 30 días. Se midió la longitud sifonal (µm) de la concha (Fig. 1 B) utilizando el software Leica LAS Interactive Measurements (resolución 10x). La mortalidad fue calculada a partir de las conchas vacías obtenidas durante los recambios de agua. El porcentaje de mortalidad se obtuvo con la siguiente fórmula:
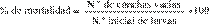
Calcificación:
Se determinó la proporción en peso de Calcio (% wt) para larvas de 30 días (N = 3 larvas por tratamiento), se eligió esta edad dado que la teleoconcha se forma entre los 30 y 35 días (Enriquez-Díaz, Volland, Chavez-Villegas, Aldana-Aranda, & Gros, 2015). Para la cuantificación se utilizó Microscopia Electrónica de Barrido empleando el Análisis de Espectroscopía de Energía Dispersiva “EDX” (Microscopio PHILIPS ESEM-XL30). La medición se hizo en cuatro zonas de la concha siguiendo la longitud sifonal (Fig. 1B). Además, se utilizó Microscopía RAMAN (Microscopio WITEC ALPHA 300, Láser 488nm), empleando las distancias raman (cm-1) propuestas por Nehrke, Poigner, Wilhelms-Dick, Brey, & Abele (2012) para la identificación y cuantificación de aragonita (206, 705 y 1 085 cm-1) y calcita (282, 711 y 1 085 cm-1) (N = 3 - 5 larvas por tratamiento). El efecto de fluorescencia registrado en las muestras se eliminó mediante el software CrystalSleuth-RRUFF Project. La intensidad RAMAN se calculó con el software OriginPro 8, y se reportó en unidades arbitrarias (a.u.).
Se utilizó el software Infostat versión estudiantil, para calcular media y desviación estándar, así como realizar prueba de normalidad (Shapiro-Wilks), de homocedasticidad (Kolmogorov) y análisis de Kruskal-Wallis (P (α0.05)) para eclosión, crecimiento, mortalidad y calcificación (EDX) entre tratamientos de temperatura y pH.
Resultados
Eclosión:
Se presentó a partir del día cinco de incubación, iniciando en larvas de 31 °C a partir de las 110 hr posteriores al desove, y las 118 hr para los tratamientos de 28 °C. La duración de la eclosión fue de 18 hr para 31 °C y de 30 hr para 28 °C (Fig. 2A). En general, se registró ~90 % de eclosión, con excepción del T2 (31 °C - pH 8.1) donde se obtuvo un 96.67 ± 1.39 % de larvas eclosionadas (Fig. 2B). No hubo variación significativa en la proporción de larvas eclosionadas entre tratamientos (H (g.l. 3) = 6.38, P (α0.05) = 0.0943), pero si en el tiempo de eclosión (H (g.l. 3) = 8.31, P (α0.05) < 0.0001).
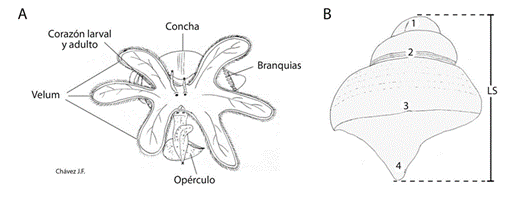
Fig. 1 Original diagrams of S. gigas larvae (28 days old), showing: A) Organs used to evaluate larval development; B) Areas used to measure siphonal length (LS) and to perform Calcium measurements by EDX analysis. 1 = apex in the first shell whorl, 2 = ornamentations of the second shell whorl, 3 = body shell outside ornamentations, 4 = siphonal channel.
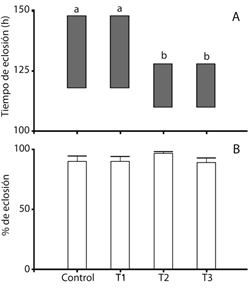
Fig. 2 Observations of hatchery process (A: range, B: percentage) of the S. gigas larvae for the temperature (°C) and pH treatments. Control = 28 °C - pH 8.1, T1 = 28 °C - pH 7.6, T2 = 31 °C - pH 8.1, T3 = 31 °C - pH 7.6. a-b: groups obtained from average comparisons by KruskalWallis analysis (α 0.05).
Desarrollo larvario:
La cinética de desarrollo del velum fue mayor para larvas de 31 °C - 8.1pH (T2), donde la reducción de lóbulos velares (indicador del inicio de la metamorfosis) comenzó a parir del día 38, mientras que en el control (28 °C - pH 8.1) se observó a partir del día 41. La concha mostró menor desarrollo en larvas del T1 (28 °C - pH 7.6), las cuales no desarrollaron 4.5 espiras, característica observada en el resto de los tratamientos. La elongación del opérculo, la aparición del corazón adulto funcional, el desarrollo de las branquias e inicio de la conducta nado-reptante, se presentó en menor tiempo y mayor proporción en los tratamientos de 31 °C (Cuadro 1).
Cuadro 1 Día de cultivo y avance (%) en de aparición de órganos (velum, concha, corazón, opérculo y branquias) y conducta nado-reptante en larvas de S. gigas para los tratamientos temperatura y pH
| Característica | Grado de desarrollo | Control | T1 | T2 | T3 | ||||
|---|---|---|---|---|---|---|---|---|---|
| Día | % | Día | % | Día | % | Día | % | ||
| Velum (N° de lóbulos) | Un par | 0 | 100.0 | 0 | 100.0 | 0 | 100.0 | 0 | 100.0 |
| - | Dos pares | 2 | 100.0 | 2 | 100.0 | 1 | 86.7 | 2 | 100.0 |
| - | Tres pares | 6 | 93.6 | 5 | 83.0 | 3 | 76.7 | 4 | 70.0 |
| - | Reducción | 41 | 23.3 | 41 | 23.3 | 38 | 10.0 | 40 | 10.0 |
| Concha (N° de espiras) | 1.5 | 0 | 100.0 | 0 | 100.0 | 0 | 100.0 | 0 | 100.0 |
| - | 2.0 | 2 | 100.0 | 2 | 36.7 | 2 | 100.0 | 2 | 100.0 |
| - | 3.0 | 13 | 6.7 | 13 | 40.0 | 6 | 20.0 | 6 | 10.0 |
| - | 4.0 | 30 | 3.3 | 30 | 3.3 | 28 | 20.0 | 28 | 10.0 |
| - | 4.5 | 37 | 33.3 | - | - | 33 | 26.7 | 36 | 6.7 |
| Corazón funcional | Larval + adulto | 2 | 40.0 | 3 | 56.7 | 2 | 100.0 | 2 | 100.0 |
| Opérculo | Elongación | 13 | 10.0 | 14 | 13.3 | 15 | 36.7 | 11 | 10.0 |
| - | Forma final | 33 | 13.3 | 30 | 23.3 | 28 | 20.0 | 28 | 13.3 |
| Branquias | Presencia | 39 | 53.3 | 36 | 23.3 | 34 | 30.0 | 37 | 23.3 |
| Conducta nado-reptante | Presencia | 40 | 36.7 | 37 | 6.7 | 35 | 53.3 | 36 | 43.3 |
- : Característica no desarrollada. Control = 28 °C - pH 8.1, T1 = 28 °C - pH 7.6, T2 = 31 °C - pH 8.1, T3 = 31 °C - pH 7.6.
- : Feature not developed. Control = 28 °C - pH 8.1, T1 = 28 °C - pH 7.6, T2 = 31 °C - pH 8.1, T3 = 31 °C - pH 7.6.
Crecimiento:
Las larvas presentaron tallas de 230 ± 4.12 µm (28 °C - pH 7.6) a 313.27 ± 11.34 µm (31 °C - pH 8.1) durante la eclosión. Se registró un crecimiento similar entre el control y los tratamientos hacia el día 10 (L.S. = ~650 µm), hacia el día 20, larvas de los tratamientos 31 °C fueron más grandes (28 °C = ~710 µm y 31 °C = ~820 µm), mismo patrón se registró durante todo el desarrollo, alcanzando las mayores tallas en los tratamientos de 31 °C (pH 7.6 = 1 031.50 ± 11.03 µm; pH 8.1 = 1 054.50 ± 11.13 µm) (Fig. 3). El análisis de Kruskal-Wallis mostró variación significativa en el crecimiento entre tratamientos (H (g.l. 3) = 26.19, P (α0.05) < 0.0001).
Mortalidad:
Se registró de 0.59 ± 0.19 % a 3.01 ± 0.25 % de mortalidad durante el día 10 (Fig. 4A), incrementando de 1.38 ± 0.54 % a 5.67 ± 1.16 % hacia el día 20 (Fig. 4B). Se presentó un pico de mortalidad el día 30 para todos los tratamientos (de 19.13 % a 67.38), mostrando mayores registros en el T3 con 58.42 ± 12.03 % (Fig. 4C). El mayor porcentaje de mortalidad acumulada fue en los tratamientos de 31 °C (pH 8.1 = 65.64 ± 8.49 % y pH 7.6 = 65.10 ± 15.49 %). La mortalidad no mostró variación significativa entre tratamientos (H (g.l. 3) = 5.41, P (α0.05) = 0.1441), mientras que en el análisis por edad, se observó variación solo para las observaciones realizadas durante el día 20 (H (g.l. 3) = 8.74, P (α0.05) = 0.0324).
Calcificación:
EDX:
La proporción de Calcio (% wt) fue similar entre tratamientos ~35 % wt, siendo mayor en el control con 37.29 ± 16.81 % wt (Fig. 5). No se presentó variación significativa para la proporción de Calcio entre tratamientos (H (g.l. 3) = 0.57, P (α0.05) = 0.9038
Raman:
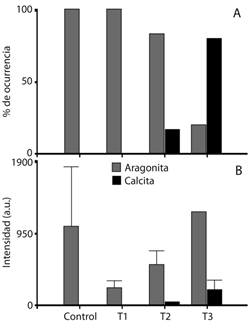
Se detectaron tres picos para ara gonita (206, 705 y 1 085 cm-1) y Calcita (282, 711 y 1 085 cm-1) (Fig. 6). El pico de 1 085 cm-1 mostró mayor intensidad en 31 °C (pH 7.6 = 3 338.77 ± 1 046.86 a.u. y pH 8.1 = 1 259.15 ± 608.35 a.u.). El segundo pico (de 705 a 711 cm-1) registró más intensidad en pH 7.6 (28 °C = 259.15 ± 121.02 a.u. y 31 °C = 606.50 ± 111.80 a.u.). Se detectó aragonita en todos los tratamientos, con mayor ocurrencia en 28 °C (100 %, independientemente del pH). La intensidad de aragonita (206 cm-1) fue mayor en pH 8.1 (Control: 1 039.54 ± 780.26 a.u. y 31 °C: 1 228.87 ± 0.00 a.u.) (Fig. 7). Se registró calcita (282 cm-1) solo en larvas cultivadas a 31 °C (pH 8.1 = 80 %; pH 7.6 = 17 %), la intensidad de este carbonato fue mayor en pH 8.1 (206.04 ± 122.33 a.u.) (Fig. 7).
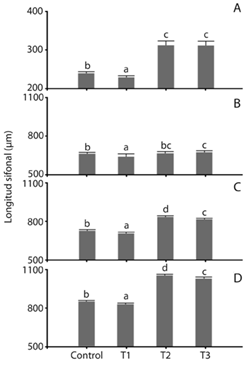
Fig. 3 Growth of the S. gigas larvae for temperature (°C) and pH treatments. Larval age = A: 0 days-old (d.o.)/ Hatchery, B: 10 d.o., C: 20 d.o., and D: 30 d.o.; Control = 28 °C - pH 8.1, T1 = 28 °C - pH 7.6, T2 = 31 °C - pH 8.1, T3 = 31 °C - pH 7.6. a-d: groups obtained from average comparisons by Kruskal-Wallis analysis (α 0.05).
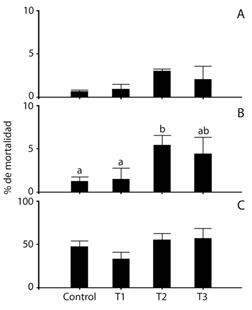
Fig. 4 Percentage of mortality for S. gigas larvae, calculated from the water changes for the temperature and pH treatments. Larval age = A: 10 days-old (d.o.), B: 20 d.o., and C: 30 d.o.; Control = 28 °C - pH 8.1, T1 = 28 °C - pH 7.6, T2 = 31 °C - pH 8.1, T3 = 31 °C - pH 7.6. a-d: groups obtained from average comparisons by KruskalWallis analysis (α 0.05).
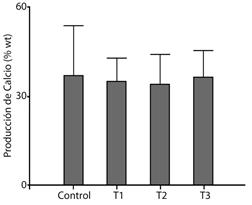
Fig. 5 Average calcification of S. gigas larval shell (30 days old) obtained by Energy-Dispersive X-ray Analysis (EDX). % wt = percent in weight; n = 3 larvae per treatment. Control = 28 °C - pH 8.1, T1 = 28 °C - pH 7.6, T2 = 31 °C - pH 8.1, T3 = 31 °C - pH 7.6.
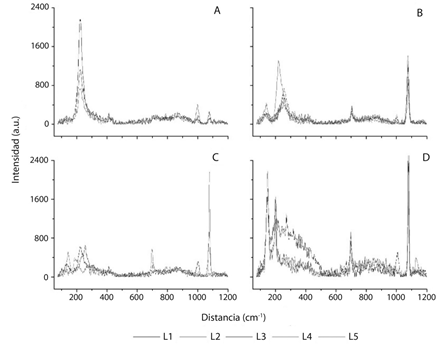
Fig. 6 Calcification in S. gigas larval shell (30 days old) measured by RAMAN Spectroscopy, n = 3-5 larvae per treatment. A: 28 °C - pH 8.1 (Control); B: 31 °C - pH 8.1; C: 28 °C - pH 7.6; y D: 31 °C - pH 7.6; a.u.: arbitrary units; L 1-5: Larvae 1-5.
Discusión
El calentamiento y acidificación del océano podrían tener efectos severos en organismos calcificadores (Gazeau et al., 2007). Las larvas de organismos marinos, al ser más vulnerables a cambios ambientales, son empleadas como indicador del efecto del incremento de la temperatura y reducción del pH a través del estudio de las tasas de eclosión, desarrollo, crecimiento, mortalidad y calcificación en larvas de invertebrados (Sale et al., 2010; Talmage & Gobler, 2009; Ushakova, 2003).
En general, los estudios de cambio climático se han desarrollado con especies de ambientes fríos a templados dentro de las cuales destacan Haliotis sp. y Mytilus sp. (Gaylord et al., 2011; Gazeau et al., 2010, 2011; Miller, Reynolds, Sobrino, & Riedel, 2009; Sunday, Crim, Harley, & Hart, 2011), siendo escasas las investigaciones con moluscos de ambientes tropicales.
Al evaluar la tasa de eclosión Parker, Ross, y O’Connor (2010), en tratamientos combinados de temperatura (18, 22, 26 y 30 °C) y pH (8.2, 8.0, 7.9 y 7.8), para Saccostrea glomerata y C. gigas, obtuvieron 100 % de larva D en condiciones normales (26 °C - pH 8.2); sin embargo, observaron menor proporción de larvas al disminuir la temperatura y el pH (18 °C - pH 7.8: C. gigas = 35 % y S. glomerata = 58 %). Por otra parte, Gazeau et al. (2011) reportan menor porcentaje de eclosión para embriones de C. gigas al disminuir el pH de 8.03 a 7.41 (de 95 a 20 %). En el caso de S. gigas, la tasa de eclosión no se vio influenciada por ningún parámetro, sin embargo, se puede determinar que el tiempo de incubación se reduce, al incrementar la temperatura, independientemente del pH.
Aldana, Lucas, Brulé, Salguero, y Rendon (1989) reportan el crecimiento para Strombus costatus en función de la temperatura, y registraron tallas de 812 µm en 28 °C y 685 µm en 24 °C (para larvas de 31 días). En cuanto a la acidificación, se reportaron menores tasas de crecimiento para larvas de Mercenaria mercenaria, Argopecten irradians y C. virginica cultivadas en pH 7.5 (Talmage & Gobler, 2009), en el presente estudio observamos que si la temperatura se mantiene constante (28 °C) y el pH disminuye, el crecimiento de S. gigas es menor, en contraparte, al aumentar la temperatura, el efecto del pH es contrarrestado, los que beneficia el crecimiento del organismo.
Se conoce que el incremento de la temperatura y la disminución del pH tienen un efecto negativo en las tasas de mortalidad larval de moluscos. Aldana Aranda et al. (1989) registraron mortalidades de 83 a 90 % para S. costatus ante incrementos de temperatura (de 24 a 28 °C, respectivamente). En cuanto a la acidificación, Talmage y Glober (2009, 2010) observaron que a menor pH (7.5) la mortalidad diaria incrementa para M. mercenaria (de 1.8 a 6.7 %) y A. irradians, (de 3.8 a 7.8 %). Resultados similares fueron presentados por Kurihara, Kato, e Ishimatsu (2007) y Gazeau et al. (2011) para C. gigas, donde la mortalidad aumentó de 20 a 90 % al reducirse el pH (de 8.1 a 7.6, respectivamente). Los resultados de este estudio mostraron un mayor porcentaje de mortalidad hacia el día 20 de desarrollo, observando que las larvas cultivadas a 31 °C fueron más afectadas a nivel fisiológico por la temperatura.
La acidificación del medio marino produce baja saturación de aragonita y calcita, lo cual afecta directamente a organismos calcificadores al reducirse la tasa de incorporación de calcio en sus concha (Talmage & Gobler, 2009). Kurihara et al. (2007) y Gazeau et al. (2011), señalaron que la tasa de calcificación en larvas de C. gigas disminuye de 72 a 30 % ante menor pH (de 8.1 a 7.4, respectivamente); contrariamente, en este estudio se observó que la proporción de calcio en el estadio planctónico de S. gigas, no mostró variación en ninguna condición experimental.
Weiss, Tuross, Addadi, y Weiner (2002) informaron que en estadios iniciales, la concha de M. mercenaria y C. gigas se compone de carbonato de calcio amorfo, sustituyéndose por aragonita al final de la vida larvaria. Auzoux-Bordenave et al. (2010) presentaron una revisión para siete especies de moluscos, entre ellas Ostrea edulis y Pinctada fucata, en la que señalaron que la protoconcha se compone por aragonita y trazas de carbonato amorfo, mientras que la teleoconcha por calcita. En este estudio, las conchas de las larvas de 30 días (premetamórficas) de todos los tratamientos, presentaron aragonita, mientras que calcita solo se observó en organismos cultivados a 31 °C. Ambos polimorfos de carbonato de calcio mostraron menores registros en función del pH.
Se sabe que el incremento de temperatura puede aumentar los efectos negativos de la acidificación del océano, cuando pasan el umbral de tolerancia térmica, ya que puede alterar la membrana celular y modificar la homeóstasis ácido-base; también puede influir en la actividad de las proteínas implicadas en la regulación ácido-base (O’Donnell, Hammond, & Hofmann, 2008; Padilla-Gamiño, Kelly, Evans, & Hofmann, 2013; Pörtner, 2010). De acuerdo con Le Moullac et al. (2016), las larvas pueden adaptarse a condiciones de acidificación, siendo la temperatura el principal estresor en el desarrollo larvario. En este estudio se observó que S. gigas podría adaptarse al calentamiento y acidificación de los océanos, sin embargo, los procesos de biomineralización de la concha fueron afectados, razón por la cual las conchas de S. gigas mostraron mayor proporción de aragonita (carbonato presente en las fases tempranas del desarrollo larvario), retardándose así el proceso de formación de calcita. Aunque la aragonita es el polimorfo de carbonato de calcio menos estable, su presencia en todos los tratamientos podría atribuirse a la dureza de este carbonato, por lo cual, se detectó aún en condiciones de pH menor, no obstante con menores intensidades, lo cual, se traduce en la formación de conchas con menor densidad o estructuras menos compactas, lo que podría generar repercusiones a nivel fisiológico.
Si bien, se determinaron las fases (presencia/ausencia) e intensidades de aragonita y calcita de la concha de S. gigas, se debe considerar realizar un análisis químico a fin de conocer la variación o estratificación de estos dos carbonatos de calcio, a fin de conocer a fondo los efectos de la acidificación, empleando diferentes ambientes de pH, a través de la vida larvaria de S. gigas.

