


 Spanish (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
 Cited by SciELO
 Similars in
SciELO
 uBio

 Permalink

La deforestación en la Amazonía brasileña, se considera como una de las principales causas de pérdida y reducción de biodiversidad (Laurance & Vasconcelos, 2009; Fearnside, 2010). Se estima que el 20 % del Bioma se ha perdido en Brasil (INPE, 2015), y la región conocida como Centro de Endemismo BelémCEB, donde se ubican los Estados Pará y Maranhão, es la más degradada. En el CEB, los remanentes de bosque primario ocupan apenas el 24 % y existe un 18 % del territorio en proceso de sucesión (Almeida & Vieira, 2010). La ganadería extensiva y el monocultivo de soya, son los principales usos del suelo en esa región y las principales causas de la deforestación (Fearnside, 2010). Así, los bosques secundarios en sucesión, es decir, en proceso ecológico de recuperación de la cobertura boscosa original (Yepes, del Valle, Jaramillo, & Orrego, 2010), y los sistemas agroforestales, se tornan de interés para la conservación de la biodiversidad (Rousseau, Rogério, Celentano, & Carvalho, 2014) y el desarrollo sostenible.
La Amazonía alberga una diversidad elevada de organismos, aunque para muchos de ellos, son poco conocidos los aspectos fundamentales para la conservación biológica, como su distribución y riqueza (Grelle, 2002; Fearnside, 2006), lo que dificulta la conservación y manejo de este Bioma. Ese conocimiento es prácticamente imposible de ser alcanzado en su totalidad, porque depende de investigaciones onerosas, tiempo y recursos humanos (Vieira, Oliveira, Brewster, & Gayubo, 2012; Neeson, Van Rijn, & Mandelik, 2013). En este contexto, con la necesidad urgente de estimar la riqueza y distribución de especies de manera más simple y rápida (Cardoso, Silva, de Oliveira, & Serrano, 2004; Rosser & Eggleton, 2012), la herramienta de taxón superior (Gaston & Williams, 1993) ha sido implementada con éxito en diferentes grupos de organismos (Sebastia & Grelle, 2009; Kallimanis et al., 2012; Vieira et al., 2012). Sin embargo, la información es escasa respecto a invertebrados del suelo, por ser considerados taxones con alta diversidad, especialmente en la región tropical (Heino & Soininen, 2007; Neeson et al., 2013).
Dentro de los invertebrados, las hormigas son consideradas como uno de los grupos sociales más representativos (Folgarait, 1998). Son de suma importancia dentro de la fauna edáfica, y en general de los ecosistemas, por su capacidad de interacción con otros organismos (Hölldobler & Wilson, 1990). Igualmente, son consideradas ingenieras del suelo (Lavelle et al., 2006), por sus diversas funciones que inciden directa e indirectamente en la estructura y funcionamiento de los ecosistemas (Vasconcelos, 1999; Vasconcelos & Laurance, 2005). Adicionalmente, debido a su resilencia ante perturbaciones antropogénicas, han sido utilizadas como grupo bioindicador de alteraciones ambientales (Pais & Varanda, 2010; Ribas et al., 2012; Guzmán-Mendoza, Castaño-Meneses, & Nuñez-Palenius, 2016).
A pesar de la vasta información sobre el estudio de las hormigas en diferentes campos del conocimiento, persiste un vacío de información básica, como la riqueza y la distribución de especies, en muchas regiones del neotrópico (Lattke, 2003), incluyendo los estados de Maranhão y Pará en el CEB. El presente estudio, tuvo como objetivo evaluar la riqueza de especies de hormigas del suelo en diferentes estados de sucesión del bosque y sistemas agroforestales en la Amazonía Oriental, y estimar si los taxones superiores (Subfamilia y Género) son buenos sustitutos de la riqueza de especies.
Materiales y métodos
Área de estudio: El estudio se desarrolló en la Amazonía Oriental en ocho municipios, siete ubicados en el estado de Maranhão (Centro Novo do Maranhão, Bom Jardim, São Luís, São José de Ribamar, Rosário, Axixá y Alcântara) y uno en Pará (Tomé-Açú) (Apéndice). Los municipios de Alcântara, Centro Novo do Maranhão, Tomé-Açú y Bom Jardim hacen parte de la región denominada Centro de Endemismo Belén (CEB) Amazonía Oriental. El tipo de suelo predominante es el oxisol (Quesada et al., 2011), el cual presenta un perfil profundo de baja fertilidad y baja saturación de bases (IBGE, 2011). El clima regional es clasificado como tropical lluvioso Am en Centro Novo do Maranhão, Tomé-Açú y Bom Jardimm, y As en São Luís, São José de Ribamar, Alcântara, Rosário y Axixá. La elevación en la región comprende un rango entre 4 y 294 m. La temperatura promedio en la región es de 27°C con precipitación promedio 2 100 en Maranhão y 2 300 mm/año en Tomé-Açú (Alvares, Stape, Sentelhas, Moraes-Gonçalves, & Sparovek, 2013). El Tipo de vegetación presente corresponde a bosque ombrófilo denso en la región de Centro Novo do Maranhão, Bom Jardim y Tomé-Açú, ombrófilo abierto en São Luis, Axixá y Rosário, bosque ribereño ombrófilo abierto en Alcântara y bosque de Restinga en São José de Ribamar (IBGE, 2011).
Diseño experimental y método de muestreo: Los muestreos fueron realizados entre 2011 y 2014, en 65 parcelas en diferentes estados de sucesión vegetal clasificadas de acuerdo con su edad (Apéndice): bosque primario (9 parcelas), bosque secundario avanzado 19-60 años (9), bosque secundario intermedio 11-16 años (9), bosque secundario joven 3-9 años (7), sistema agroforestal 9-36 (5) , bosque ribereño primario (6), bosque secundario ribereño avanzado (6), bosque secundario ribereño joven (6), área abierta de uso agrícola (pastos misturados con yuca) (6) y bosque primario de Restinga (2). Las edades de las parcelas fueron proporcionadas por los dueños o usuarios de las mismas. Las parcelas consistieron en un círculo de 50 m de diámetro (1 953 m), el cual se dividió en cuatro cuadrantes, donde, fueron recolectados cinco monolitos 25x25x10 cm de suelo utilizando el método Tropical Soil Biology and Fertility/ TSBF (Anderson & Ingram, 1993) modificado, en forma de cruz a cada 20 m, partiendo de un punto central (Rousseau et al., 2014). En Alcântara las parcelas fueron rectangulares (1 000 m2) y paralelas al río. Estas parcelas fueron muestreadas dos veces en meses diferentes, donde en cada muestreo, cinco monolitos de suelo de 25x25x10 cm, distribuidos en zig-zag a lo largo de la línea media de la parcela, fueron recolectados. La diferencia del área utilizada en Alcântara correspondió a la necesidad de integración a un protocolo de un proyecto con objetivos diferentes y a la adaptación del tamaño de los mosaicos presentes en la zona. Para más detalles ver Zelarayán et al. (2015). La hojarasca y el suelo de cada monolito fue procesada manual e independientemente, y toda la mirmecofauna recolectada fue conservada en alcohol al 70 %, directamente.
Identificación del material: La mirmecofauna recolectada, fue identificada siempre que fue posible, hasta especie o morfoespecie. La identificación de género se hizo con base en Palacio y Fernández (2003), y las especies fueron identificadas en el Laboratorio de Mirmecologia, del Centro de Investigación en Cacao CEPEC/CEPLAC, Itabuna/Bahía- Brasil. Los especímenes se depositaron en la colección de referencia (CPDC) del mismo laboratorio bajo el número de registro 5 759, así como en la sub-colección de invertebrados del suelo de Maranhão (en proceso de homologación), Universidad Estadual de Maranhão.
Todas las parcelas fueron agrupadas independientemente de su localización de acuerdo a su estado de sucesión vegetal. La riqueza observada de especies, se obtuvo a partir del número de especies o morfo-especies por estado de sucesión vegetal del bosque y sistemas agroforestales, y como estimador no paramétrico, fue utilizado Chao2 con 100 randomizaciones sin remplazo usando datos de incidencia.
Por tratarse de un diseño con diferente esfuerzo de muestreo, fueron utilizados el método de rarefacción de Coleman (Coleman, 1981) interpolado a 25 monolitos (cinco parcelas) y curvas de rarefacción extrapoladas a 60 monolitos (Colwell et al., 2012). Los análisis se realizaron por medio del software EstimateS 9.1.0 (Colwell, 2013).
La estimación de la riqueza de especies por medio de los taxones sustitutos (subfamilia y género) para cada estado de sucesión vegetal y sistema agroforestal, fue realizada a través de funciones exponenciales para subfamilia y lineales para género. Se realizó prueba de normalidad de Shapiro-Wilk para los residuos y posteriormente se utilizó correlación de Pearson. Para definir si un sustituto era considerado como razonable (> 60 %), bueno (> 70 %) o excelente estimador (> 80 %), se utilizaron los valores propuestos por Leal, Bieber, Tabarelli y Andersen (2010). La vegetación de restinga sólo se utilizó en parte para el análisis total de las áreas, debido al bajo esfuerzo de muestreo. Las regresiones se realizaron usando el programa STATISTICA 7.0 (StatSoft, versión 2002).
Resultados
Se identificó 180 especies en 60 géneros y nueve subfamilias. Las subfamilias más comunes fueron Myrmicinae 47.7 %, Ponerinae 22.6 %, Formicinae 15.3 %, que abarcaron 85.6 % del total de las especies, mientras que los géneros con mayor número de especies fueron Pheidole 15.1 %, Hypoponera 14.1 % y Solenopsis 10.3 %. La mayor riqueza total de especies, se registró en el bosque secundario intermedio (88 spp.) y avanzado (76), mientras los valores menores fueron encontrados en el bosque ribereño (35) y sistema agroforestal (38) (Cuadro 1, Figura 3). El estimador Chao2 explicó entre el 47-83 % de la riqueza total.
Cuadro 1 Riqueza de especies de hormigas en una cronosecuencia del bosque, bosque primario y sistema agroforestal en la Amazonía Oriental, Brasil. Table 1. Ant’s species richness in a chronosequence of fallows, old-growth forests and agroforestry systems in the Eastern Amazon, Brazil.
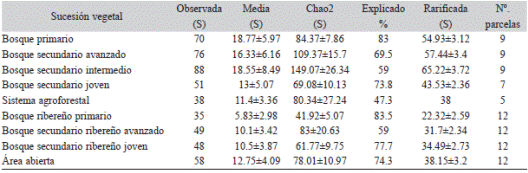
Riqueza (S): Observada, Media, Estimada (Chao 2), Rarificad, ± Desviación estándar. Richness (S): Observed, Mean, estimated (Chao2), rarefied, ± Standard Deviation.
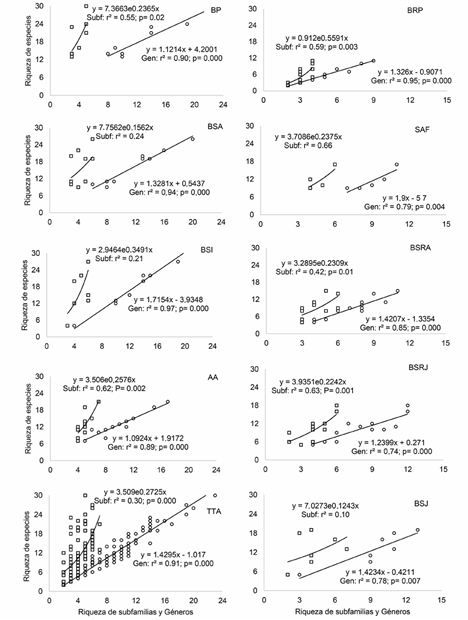
Figura 3. Relación entre la riqueza de especies y la riqueza de géneros (Gen) y subfamilias (Subf) en hormigas en: Bosque primario (BP) Bosque secundario avanzado (BSA), Bosque secundario joven (BSJ), Bosque secundario intermedio (BSI), Área abierta (AA), Sistema agroforestal (SAF), Bosque ribereño primario (BRP), Bosque secundario ribereño avanzado (BSRA), Bosque secundario ribereño joven (BSRJ), y para el total de áreas (TTA) en la Amazonía Oriental, Brasil.
Las curvas de rarefacción de especies extrapoladas para 60 (12 parcelas) monolitos no presentaron saturación o estabilidad (Figura 1). Las regresiones indican una fuerte relación linear entre el género y la riqueza de especies (r2 = 74-97 %, P < 0.05) para todos los diferentes estados de sucesión del bosque y sistema agroforestal, así como considerando el total de las áreas (r2 = 0.92; P < 0.001) (Figura 2). Las regresiones indican que el género puede ser considerado un sustituto de especies excelente (> 80 %) en BP, BSA, BSI, BRP, BSRA y AA, y bueno (> 70 %) en BSJ, BSRJ y SAF. Por otro lado, aunque la subfamilia presentó una relación exponencial significativa con la riqueza total de hormigas (P < 0.05), esa relación es considerada inadecuada (r2 = 29 %) para ser usada como sustituto. Además, cuando fue evaluada para cada sistema, la relación entre subfamilia y especie no fue significativa (P < 0.05) para SAF, BSA, BSJ y BSI. Los sistemas que presentaron una relación significativa (P < 0.05) y de uso como sustituto razonable fueron AA (62 %), BSRJ (63 %).
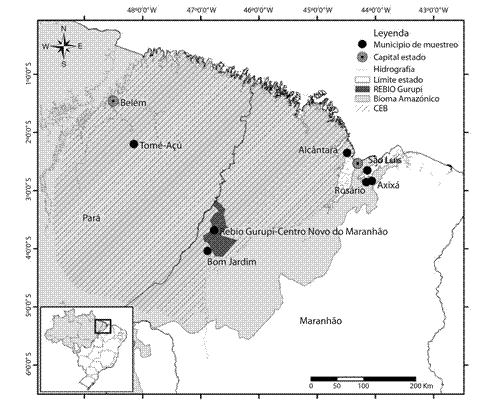
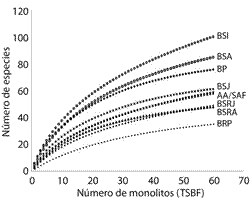
Figura 2 Curvas de rarefacción de especies de hormigas extrapolada en: Bosque primario (BP) Bosque secundario avanzado (BSA), Bosque secundario intermedio (BSI), Bosque secundario joven (BSJ), Área abierta (AA), Sistema agroforestal (SAF), Bosque ribereño primario (BRP), Bosque secundario ribereño avanzado (BSRA) y Bosque secundario ribereño joven (BSRJ), en la Amazonía Oriental, Brasil.
Discusión
La riqueza de especies de hormigas encontrada en este estudio es elevada, considerando que registró el 12.3 % de las especies registradas para el Brasil (Antwiki, 2015), aún cuando se reconoce que el método de muestreo utilizado es diseñado para la macrofauna en general de suelo y no específicamente para las comunidades de hormigas (Sanabria, Lavelle, & Fonte, 2014). De igual manera, los resultados en este estudio son consistentes con otros trabajos que utilizaron diferentes métodos de muestreo y registraron la subfamilia Myrmicinae (Chanatásig-Vaca et al., 2011; Miranda, Oliveira, Baccaro, Morato, & Delabie, 2012; Vergara-Navarro & Serna, 2013), y los géneros Pheidole, Solenopsis (Santos et al., 2006; Wilkie, Mertl, & Traniello, 2010; Freitas, Delabie, & Lacau, 2014) e Hypoponera (Santos et al., 2006; Chanatásig-Vaca et al., 2011; Queiroz, Ribas, & França, 2013) como grupos dominantes y diversos del suelo, en los ecosistemas neotropicales. Estos resultados se enmarcan dentro del contexto que estas subfamilias y géneros, dentro de los grupos de Formicidae, son considerados como megadiversos y dominantes (Antwiki, 2015). Esta dominancia según Fowler, Forti, Brandão, Delabie y Vasconcelos (1991) y Fernández (2003) puede estar asociada a su plasticidad en hábitos alimenticios, tamaño y capacidad de dispersión de las especies.
Los bosques ribereños presentaron de manera general las menores riquezas. Esta situación se puede asociar con los periodos de anegamiento a los cuales están sometidas durante el periodo de lluvias. El anegamiento, genera el desplazamiento de la mirmecofauna hacia zonas más altas y secas, y ya fue observado en la región del pantanal (Soares et al., 2013) y en la región amazónica brasileña (Majer & Delabie, 1994), donde para ambos estudios la mayor riqueza se presentó en las áreas de tierra firme, es decir, que no sufren inundaciones.
La riqueza de especies en un determinado hábitat, se correlaciona de forma directa con el tamaño, estructura y composición vegetal (Ribas & Schoereder, 2007), pero también con las características del micro hábitat (Queiroz et al., 2013). Aquí, el hecho que la riqueza registrada fuera mayor en los bosques secundarios que en los primarios, puede tener una relación con el incremento frecuente y esporádico que acontece de hormigas en áreas que fueron sometidas a algún nivel de perturbación (Kaspari, 2003). Del mismo modo, el proceso denominado retrogresión del bosque primario, que se caracteriza por una disminución en la producción primaria neta, genera directa o indirectamente un declino de la diversidad y riqueza en el ecosistema (Wardle, 2006). Resultados similares fueron reportados por Mathieu et al. (2005) en la región Oriental Amazónica donde, utilizando el mismo método TSBF, encontró que la riqueza de especies de hormigas en bosques secundarios jóvenes y antiguos, la riqueza de especies (66) era muy próxima de la riqueza registrada en los bosques primarios (76).
Las curvas de rarefacción en general no presentaron estabilización con tendencia asintótica, lo que sugiere un incremento en el esfuerzo de muestreo. El hecho que no se hubiese logrado la estabilización se puede estar presentando por la elevada riqueza de especies (Jiménez-Valverde & Hortal, 2003; Leponce, Theunis, Delabie, & Roisin 2004), y la ocurrencia de especies raras que albergan los suelos en la región tropical (Laurance & Vasconcelos, 2009; Rousseau et al., 2014); por tal razón, el esfuerzo de muestreo para estimar la riqueza de especies debería ser mayor.
En el marco de la conservación y valoración biológica, el uso de taxones superiores como sustitutos para estimar la riqueza de especies invertebradas ya ha sido evaluada. Por ejemplo, en Araneae Cardoso et al. (2004), en Hymenoptera, Vieira et al. (2012), Coleoptera, Diptera y Acari (Báldi, 2003). En estos estudios, al igual que en este trabajo, se registró el género como el mejor sustituto para la estimación de la riqueza de especies.
Este trabajo ratifica los resultados obtenidos por Andersen (1995) en Australia, donde la relación entre la riqueza de especies de hormigas y riqueza de géneros es fuerte dentro de una misma región. De otro lado, diversos estudios verificaron que esta relación no solo es fuerte dentro de la región, sino también entre regiones con diversos tipos de hábitats, por ejemplo, Groc et al. (2010) en su trabajo realizado con datos sobre hormigas de Centro y Sur América, sugieren el género como el nivel que mayor información suministra. De hecho, en los Himalayas indianos con una variación altitudinal entre 1 400 y 3 700 msnm Negi y Gadgil (2002), encontraron de manera similar, que el taxón que mejor explica la riqueza de especies en hormigas es el género. Souza et al. (2015) en la región amazónica central, evidenciaron que la localización y el tipo de vegetación no tuvieron un efecto significativo sobre la relación entre la riqueza de especies de hormigas y taxones sustitutos. Además, estimaron una reducción en costos totales del 40 % cuando utilizaron el nivel de género en lugar de especies. Nuestro trabajo ha ampliado este patrón general, lo que demuestra que el género también puede ser un excelente sustituto de especies de hormigas en los bosques amazónicos orientales en diferente estado de sucesión vegetal.
De modo general, los trabajos anteriores sugieren la utilización del género como sustituto para la estimación rápida de la riqueza de especies, siempre y cuando las condiciones para la identificación de las especies no sean posibles o necesarias. En otros términos, si existe la necesidad de identificar especies “bioindicadoras” de perturbaciones mínimas en el ambiente (Nahmani, Lavelle, & Rossi, 2006) o mapear las ocurrencias de especies raras (Heino & Soininen, 2007), esta herramienta no sería la más adecuada. De hecho, mudanzas sutiles en la riqueza y composición de especies invertebrados del suelo pueden no ser detectadas en niveles superiores (Groc et al., 2010).
Entretanto, los resultados muestran al igual que en otras investigaciones realizadas con hormigas (Rosser & Eggleton, 2012; Souza et al., 2015), y en otros grupos de organismos como, mamíferos (Grelle, 2002) y arañas (Cardoso et al., 2004), que la subfamilia no se comporta como un sustituto adecuado, por tanto, no debería ser utilizada. Esta respuesta podría tener relación con la escala taxonómica. De acuerdo con Vieira et al. (2012), taxones más elevados podrían no ser unidades naturales y por ende no necesariamente evolutivamente relacionados.
A pesar que la región oriental amazónica presenta una degradación acelerada de sus ecosistemas (Rousseau et al., 2014), no existe claridad ni dimensión sobre la contribución de los bosques secundarios como refugio para las especies de menor tamaño (Bihn, Verhaagh, Brändle, & Brandl, 2008). De aquí que, tanto la conservación de los remanentes forestales como los bosques secundarios, presentan un potencial enorme para la conservación de las especies de hormigas y la sustentabilidad de la región (Mathieu et al., 2005; Rousseau et al., 2014). Las hormigas son ingenieras del ecosistema (Lavelle et al., 2006) y por esto merecen especial atención con el fin de garantizar las funciones ecológicas.
Aunque la planificación y ejecución de programas de monitoreo y conservación de la biodiversidad deben ser basadas principalmente a nivel de especie, el enfoque de taxones sustitutos es una herramienta que permite valorar la riqueza de hormigas en los sistemas agroforestales y diferentes estados de sucesión del bosque. Sin embargo, se sugiere solo bajo condiciones en las cuales sea imposible trabajar con el nivel de especie.

