


 Español (pdf)
 Articulo en XML
 Referencias del artículo

 Traducción automática
 Enviar articulo por email
 Citado por SciELO
 Similares en
SciELO
 uBio

 Permalink

La jaiba café, Callinectes bellicosus (Stimpson, 1859) habita en fondos blandos costeros, desde el sur de California, E.U.A. hasta el golfo de Tehuantepec, incluido el Golfo de California, México (Hendrickx, 1984). Sus poblaciones parecen tener distribución heterogénea por tamaños y sexos en aguas con temperatura de 20 a 32 °C (Arreola et al., 2003; Castro & DeAlteris, 1988; Estrada, 1999). Los adultos de C. bellicosus son eurihalinos y sus larvas requieren salinidades del ambiente marino; por ello las hembras grávidas liberan los huevecillos en las bocas de lagunas costeras y esteros (Fischer & Wolff, 2006; Sánchez & Gómez, 1992).
Se conoce poco sobre la influencia del ambiente en las poblaciones de jaibas. La abundancia de hembras ovígeras se asocia a humedales (Carmona, 2009), pero no existen estudios sobre la relación entre el tamaño de estos, la proporción de sexos y la tasa de crecimiento poblacional (r). La proporción de sexos es importante porque la población requiere una cantidad de hembras que genere la producción de huevos adecuada (Lasker, 1985) y suficientes machos para evitar limitación espermática (Carver, Wolcott, Wolcott, & Hines, 2005). Por lo tanto, la proporción de sexos debe optimizar la adecuación (“fitness”) de la jaiba a su medio ambiente. Una medida de adecuación es r, que se relaciona con el ambiente (Stearns, 1992).
En Sonora, México, C. bellicosus sostiene una pesquería artesanal con producción media de 4 500 toneladas en los últimos cinco años. Los juveniles son capturados en lagunas costeras; adultos, incluyendo hembras ovígeras son capturados en las lagunas y en el litoral marino. Análisis recientes evidenciaron que desde hace dos décadas la biomasa va en descenso (Cisneros et al., 2014). Para contrarrestar los efectos de la pesca, se decretó talla mínima de 11.5 cm de ancho de caparazón y se prohibió capturar hembras grávidas (DOF, 2006). A partir de 2013 se implementó veda total del 1 mayo al 30 junio y veda de hembras del 1 julio al 31 agosto (DOF, 2012).
Aunque la proporción media de hembras y machos esté en equilibrio (1:1) varias especies de crustáceos presentan segregación por sexos (Baptista, Pinheiro, Blankensteyn, & Borzone, 2005; Branco & Masunari, 2000). Por ello el manejo pesquero debe considerar la estructura de las poblaciones y evaluar el efecto de la pesca selectiva sobre tallas o sexos (Grabowski, Morilhas, & Leão, 2014; Orensanz, Armstrong, Armstrong, & Hilborn, 1998; Sato, 2012). El objetivo general de este estudio fue determinar variaciones en la proporción sexual, la tasa de crecimiento poblacional, y evaluar la relación de la tasa de crecimiento de C. bellicosus con su hábitat en el litoral de Sonora, México, con el fin último de explorar tácticas de manejo pesquero.
Materiales y métodos
Área de estudio:
Con extensión de 1 200 km, la costa de Sonora conforma la parte norte del margen oriental del Golfo de California. Sonora tiene diez humedales costeros con 71 529 ha; en el norte reciben poca agua dulce, a diferencia del centro-sur donde una serie continua de lagunas reciben agua de precipitación pluvial, drenajes agrícolas, y los ríos Yaqui y Mayo (Arreola, 1995).
Para este trabajo, el área de estudio se dividió en cuatro zonas, considerando la variabilidad del litoral de Sonora, que incluyen los siguientes sitios, ordenados latitudinalmente de norte a sur (Fig. 1): 1) Puerto Peñasco, Campodónico y El Jagüey; 2) Punta Chueca, Bahía de Kino, El Sahuímaro y El Choyudo; 3) Playa del Sol, Bahía Las Guásimas y Bahía de Lobos; y 4) Bahía El Tóbari, Bahía de Yavaros y Bahía de Agiabampo.
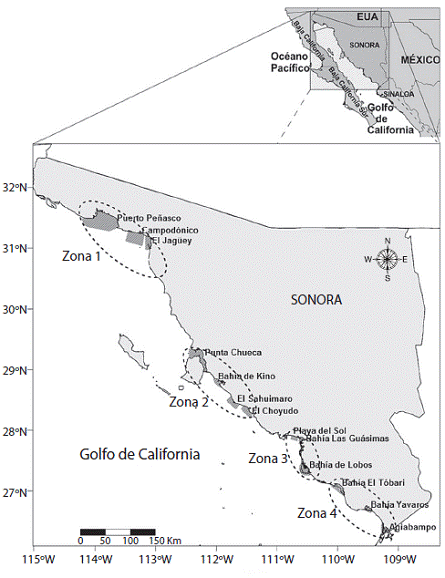
Fig. 1 Área de estudio con las 13 comunidades de pesca de C. bellicosus en cuatro zonas de la costa de Sonora, México. No hay pesca de jaiba entre zonas (DOF, 2014).
Muestreo:
La proporción de sexo de jaiba café se obtuvo de muestreos mensuales de descargas comerciales y a bordo de embarcaciones artesanales que efectuaron sus actividades, disponibles para 1998-2002 y 2012. La jaiba se pesca con diversos artes, pero en este estudio se consideró muestreos de capturas con trampas tipo Chesapeake (Cisneros et al., 2014). En promedio se utilizaron 80 trampas por embarcación, caladas mayormente (> 80 %) de una a cinco brazas en bahías, y hasta 10 brazas en la ribera marina (DOF, 2014).
Proporción de sexo:
Se estimó la proporción mensual hembras/machos (H/M) por zona. En los meses sin datos, la proporción H/M se obtuvo por interpolación de valores contiguos; cuando faltaban dos datos, el primero se estimó con la tasa de cambio promedio de tres meses consecutivos y el segundo por interpolación lineal (Izar, 1998). Con el cuadro completo H/M por mes y zona, se realizaron análisis posteriores.
Las diferencias de H/M entre años se probaron por tabla de contingencia con la prueba χ2 y entre zonas con el test de Kruskal-Wallis y comparaciones Mann-Whitney a posteriori (Zar, 1999). Se construyó un dendrograma de similitud de H/M por zona utilizado la distancia euclidiana (Elmore & Richman, 2001). Estos análisis se realizaron en el programa PAST (Hammer, Harper, & Ryan, 2001).
Crecimiento poblacional:
Se estimaron las r por zona mediante el método de Martell y Froese (2012) utilizando datos oficiales de captura comercial (t) de 1986-2013 y estimaciones de la resiliencia de las poblaciones de jaiba, consideradas como cuatro stocks. Se asumió que en 1986 la biomasa de los cuatro stocks estaban entre 75-100 % de sus capacidades de soporte (K), y en 2013 entre 60-85 % de K (Martell & Froese, 2012). Lo anterior, considerando que la pesca comenzó en la década de 1980 (Nevárez et al., 2003) y en tres décadas se estabilizó alrededor de 4 500 t (Cisneros et al., 2014). En todos los casos r varió entre 0.2/año y 1.8/año.
Se incluyó error de proceso de 5 % y de observación con CV = 5 % en la captura comercial (Hilborn & Walters, 1992). El error de proceso se refiere a la naturaleza estocástica de la estimación de la biomasa; el de observación reconoce la variabilidad en los registros de captura (  ); la captura se muestreó de una distribución Normal con media
 y varianza = 0.025. En 20 000 simulaciones Monte Carlo se generaron valores aleatorios de r y en los modelos de regresión sus medianas se consideraron como valores observados. Mediante el test de Kruskal-Wallis se compararon 4 000 valores de r por zona elegidos al azar para probar la igualdad de sus medianas (Zar, 1999).
Relación entre r, H/M e indicadores ambientales:
Los modelos de regresión lineal simple (MRLS) y múltiple (MRLM) para r en función de H/M consideraron las siguientes variables ambientales:
TSM: Promedio mensual de mayo a agosto de la temperatura superficial del mar en la zona costera, de sensores remotos. En esos meses ocurre el desove de la jaiba café (DOF, 2012). La TSM para 1998-2002 y 2012 se obtuvo del Comprehensive Oceanic and Atmospheric Data Set del NOAA-CIRES Climate Diagnostics Center. La interpolación se genera semanalmente para cuadrantes de un grado de latitudlongitud (Reynolds, Rayner, Smith, Stokes, & Wang, 2002). Al ser la zona de pesca de jaiba muy costera, por la fuerte mezcla de marea y vientos (Marinone & Lavin, 1997) se asumió que la TSM es indicativa del ambiente de la jaiba café.
SP: Tamaño del área de distribución de la jaiba, considerada como la superficie cubierta por las flotas de pesca (estimado en el presente trabajo). Esto supone que K depende del área de distribución de la jaiba y que se relaciona con r (Schaefer, 1954).
SH: Superficie de humedales (Ayala, Malpica, & Gutiérrez, 1980; Ayala, Gutiérrez, & Malpica, 1990; Beman & Christopher, 2006; Canchola, 2009; Cruz & Ortega, 1991; Guzmán, 1993;Ortega & Vázquez, 1989).
Se desarrollaron cuatro MRLS para r en función de: a) H/M, b) TSM, c) AH, y d) SP. Ocho MRLM fueron para r en función de: e) H/M y SP, f) H/M y TSM, g) H/M y SH, h) H/M y un índice compuesto TSM/SP/SH, i) H/M y un índice compuesto TSM/SH, j) SP y SH, k) SP y un índice compuesto (H/M)/TSM, y l) un índice compuesto SP/SH y otro (H/M)/ TSM. Los parámetros se obtuvieron por máxima verosimilitud (Hilborn & Mangel, 1997). La log-verosimilitud (LL) se estimó como sigue (Punt & Hilborn, 2001):
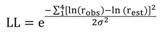
en donde robs y rest son las r observada y la estimada con los modelos; σ es la desviación estándar de los errores de robs.
Los MRLS se eligieron con el Criterio de Información de Akaike (AIC), y los MRLM con el AIC corregido (AICc) para muestras pequeñas (n/k < 40) (Burnham & Anderson, 2002):
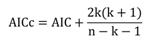
en donde AIC = 2k-2ln(LL), k = número de parámetros incluyendo σ, y n = cantidad de datos. En los MRLS no se utilizó AICc porque n-k-1 = 0. En los MRLM, k = 4 (una constante y dos coeficientes de los modelos, además de σ) y n = 4 (cuatro zonas). Para los MRLM, con los valores de AICc se determinó la diferencia entre cada uno de los valores de AICc y el valor mínimo: Δ i = AICci-AICcmín, y la bondad relativa de los modelos con los pesos normalizados de Akaike (Burnham & Anderson, 2002):
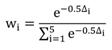
Con los modelos de menor AIC o AICc se evaluó la sensibilidad teórica de r a cambios en H/M y en los parámetros ambientales, bajo los siguientes escenarios: 1) ± 3°C en TSM; 2) ± 30 % en H/M; y 3) ± 30 % en SP.
Resultados
No se encontraron diferencias significativas en la TSM entre años (Kruskal-Wallis, 0.283 < H < 0.606; P>0.995). Se analizaron 24 556 organismos durante 1998-2002 y 2012 (Cuadro 1). En el cuadro 2 se muestran las H/M indicando los 14 (29.2 %) datos faltantes estimados por interpolación. La (H/M) no difiere (χ2 = 0.27; P = 0.6) en el período de 1998-2002 (0.40) comparado con 2012 (0.45). En general, H/M fue 29.2 % (0.54H:1.00M), no es homogénea entre zonas (χ2 = 8.5; P = 0.037) y varía mensualmente de manera distinta (Fig. 2). La zona 3 presentó la H/M más cercana a 1:1 y la r mayor (0.59/año) (Cuadro 3); la zona 4 fue segunda en el valor H/M y mostró la menor r (0.30/año). En las zonas 3 y 4 tanto SH como SP fueron mayores; la TSM aumentó de norte a sur. En general, H/M, TSM y SH son mayores en las dos zonas del sur que en las dos del norte. El análisis de similitud basado en H/M identificó dos grupos: Las zonas 1 y 2 al norte, y las zonas 3 y 4 al sur de Sonora (Fig. 3). La proporción H/M por estación del año fue similar en las zonas 1 y 2, con máximo en verano; las zonas 3 y 4 fueron distintas, con máximo en primavera (Fig. 4).
Cuadro 1 Número total mensual de C. bellicosus muestreadas por zona durante 1998-2002 y 2012 Table 1. Monthly total number of C. bellicosus sampled at each zone during 1998-2002 and 2012.
| Mes | E | F | M A M J J A S | O N D | |||||||||||||||||||
| Zona | M H | M H | M H | M | H | M | H M | H | M | H | M | H | M | H | M H M | H M | H | ||||||
| 1 | 0 0 | 0 0 | 280 106 | 161 | 91 | 0 | 0 0 | 0 | 91 | 89 | 168 | 194 | 135 | 75 | 138 5 378 | 139 0 | 0 | ||||||
| 2 | 1 004 133 | 692 286 | 1 178 583 | 181 | 27 | 0 | 0 0 | 0 | 829 | 362 | 2 767 | 617 | 2 083 | 906 | 1 652 646 1 547 | 287 1 434 | 814 | ||||||
| 328 | 10 | 23 | 22 | 0 | 0 | 22 | 39 | 44 | 23 30 | 15 | 267 | 140 608 | 384 | 0 | 0 | 254 | 201 | 71 | 46 | 96 | 62 | ||
| 40 | 0 | 93 | 28 | 0 | 0 | 31 | 34 | 0 | 0 0 | 0 | 0 | 0 551 | 224 | 144 | 101 | 359 | 218 | 136 | 126 | 26 | 22 | ||
Cuadro 2 Proporción mensual hembras/machos de C. bellicosus por zona. Table 2. Monthly female/male proportion of C. bellicosus by zone.
| ZONA | E | F | M | A | M | J | J | A | S | O | N | D |
|---|---|---|---|---|---|---|---|---|---|---|---|---|
| 1 | 0.17 | 0.25 | 0.38 | 0.57 | 0.70 | 0.83 | 0.98 | 1.15 | 0.56 | 0.04 | 0.37 | 0.27 |
| 2 | 0.13 | 0.41 | 0.49 | 0.15 | 0.39 | 0.62 | 0.44 | 0.22 | 0.43 | 0.39 | 0.19 | 0.57 |
| 3 | 0.36 | 0.96 | 1.36 | 1.77 | 0.52 | 0.50 | 0.52 | 0.63 | 0.71 | 0.79 | 0.65 | 0.65 |
| 4 | 0.57 | 0.30 | 0.70 | 1.10 | 1.61 | 0.98 | 0.35 | 0.41 | 0.70 | 0.61 | 0.93 | 0.85 |
Las cifras subrayadas y en cursivas indican los valores interpolados. Numbers in italics and underlined indicate interpolated values.
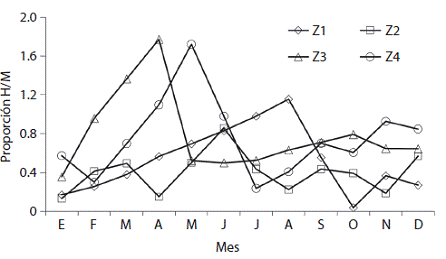
Fig. 2 Proporción mensual de hembras/machos de C. bellicosus en cuatro zonas consideradas en el presente estudio.
Cuadro 3 Valores de los parámetros usados para desarrollar los modelos de regresión lineal por zona en el litoral de Sonora Table 3. Parameter values used to develop linear regression models by zone in the coast of Sonora.
| Zona | r obs (/año) | H/M | SP (km 2 ) | TSM (°C) | SH (km 2 )* |
|---|---|---|---|---|---|
| 1 | 0.34 | 0.45 | 147.73 | 27.04 | 15.89 |
| 2 | 0.39 | 0.35 | 121.25 | 28.00 | 2.53 |
| 3 | 0.59 | 0.72 | 268.98 | 28.46 | 354.56 |
| 4 | 0.30 | 0.69 | 269.13 | 29.03 | 342.30 |
robs = tasa de crecimiento poblacional, H/M = proporción hembras/machos, SP = superficie de pesca, TSM = temperatura superficial del mar costera, y SH = superficie de humedales.
* Referencias: Ayala et al., 1980; 1990; Ortega et al., 1988; Ortega & Vázquez, 1989; Cruz & Ortega, 1991; Guzmán, 1993; Beman & Christopher, 2006; Canchola, 2009.
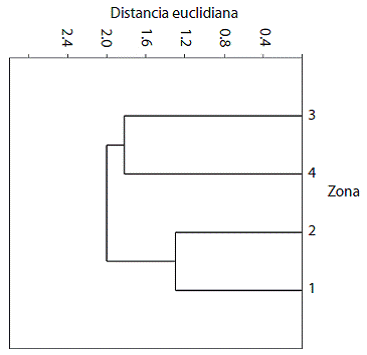
Fig. 3 Agrupación de las zonas de estudio con base en la proporción sexual de C. bellicosus en el litoral de Sonora, México.
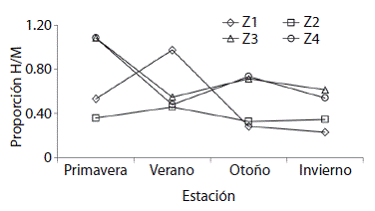
Fig. 4 Variación estacional de la proporción hembras/machos de C. bellicosus en las cuatro zonas de estudio.
Las distribuciones de r para las cuatro zonas (Fig. 5) fueron distintas (Kruskal-Wallis, H = 2 410; P < 0.001); las comparaciones a posteriori (Mann-Whitney) también indicaron que las medianas de r son distintas para cada zona (P < 0.001). La mediana de r de los cuatro stocks osciló entre 0.30 y 0.59/año, con máximo en la zona 3 y mínimo en la 4. Los modelos con menor AIC fueron los MRLS (Cuadro 4). Los dos mejores MRLS son el b y el d, que relacionan r con TSM y SP, respectivamente, con ecuaciones: rb=0.024 (TSM)-0.27 y rb = 0.00055(SP) + 0.2948. El análisis de sensibilidad indicó una relación directa entre TSM y r en las cuatro zonas; en el caso de SP la relación fue directa solo en las zonas 3 y 4 (Fig. 6).
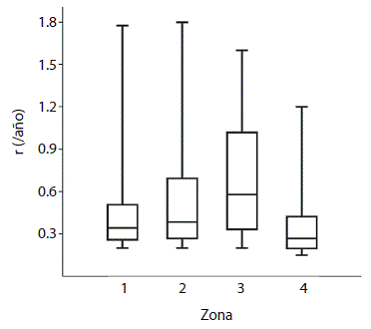
Fig. 5 Diagramas de caja para 4 000 valores de r estimados por zona para C. bellicosus. La línea interna es la mediana (50 % de la frecuencia acumulada), los extremos de los rectángulos los cuartiles 1 (25 %) y 3 (75 %) y las barras exteriores los máximos y mínimos
Cuadro 4 Resultados de los modelos de regresión lineal simple (MRLS) y múltiple (MRLM) por zona Table 4. Results for simple (MRLS) and multiple linear regression (MRLM) models by zone
| Zona | MRLS | r est | AIC | MRLM | r est | AIC | w i |
|---|---|---|---|---|---|---|---|
| 1 | a | 0.40 | 18.777 | e | 0.42 | 26.802 | 12.4999 |
| 2 | - | 0.32 | - | - | 0.32 | - | - |
| 3 | - | 0.47 | - | - | 0.47 | - | - |
| 4 | - | 0.42 | - | - | 0.41 | - | - |
| 1 | b | 0.38 | 16.481 | f | 0.4 | 26.772 | 12.4998 |
| 2 | - | 0.40 | - | - | 0.32 | - | - |
| 3 | - | 0.41 | - | - | 0.47 | - | - |
| 4 | - | 0.43 | - | - | 0.43 | - | - |
| 1 | c | 0.36 | 17.435 | g | 0.4 | 26.77 | 12.4998 |
| 2 | - | 0.36 | - | - | 0.32 | - | - |
| 3 | - | 0.45 | - | - | 0.47 | - | - |
| 4 | - | 0.45 | - | - | 0.43 | - | - |
| 1 | d | 0.38 | 17.300 | h | 0.3 | 37.21 | 12.5003 |
| 2 | - | 0.36 | - | - | 0.39 | - | - |
| 3 | - | 0.44 | - | - | 0.6 | - | - |
| 4 | - | 0.44 | - | - | 0.33 | - | - |
| 1 | - | - | - | i | 0.32 | 36.029 | 12.5003 |
| 2 | - | - | - | - | 0.39 | - | - |
| 3 | - | - | - | 0.6 | |||
| 4 | - | - | - | 0.32 | |||
| 1 | - | - | - | j | 0.31 | 25.971 | 12.4996 |
| 2 | - | - | - | - | 0.42 | - | - |
| 3 | - | - | - | - | 0.46 | - | - |
| 4 | - | - | - | - | 0.43 | - | - |
| 1 | - | - | - | K | 0.42 | 26.621 | 12.4998 |
| 2 | - | - | - | - | 0.32 | - | - |
| 3 | - | - | - | - | 0.47 | - | - |
| 4 | - | - | - | - | 0.41 | - | - |
| 1 | - | - | - | L | 0.38 | 33.5 | 12.5003 |
| 2 | - | - | - | - | 0.38 | - | - |
| 3 | - | - | - | - | 0.58 | - | - |
| 4 | - | - | - | - | 0.28 | - | - |
rest = tasa de crecimiento poblacional estimada por los modelos de regresión, AIC = Criterio de Información de Akaike, y
wi = peso relativo de los MRLM.
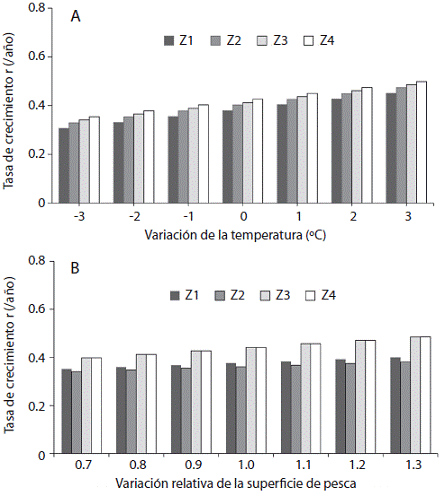
Fig. 6 Sensibilidad de la tasa de crecimiento poblacional de C. bellicosus por zona al variar: A. ± 3°C la temperatura superficial del mar; y B. ± 30 % la superficie de pesca. Resultados usando modelos de regresión lineal simple.
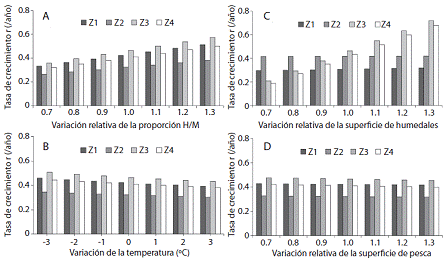
Los pesos relativos de los cuatro MRLM fueron iguales (wi ≅ 12.5%) y por ello se optó por los modelos j y k, de menor AICc: rj = 1.0692-0.0054228(SP) + 0.0024044(SH), y rk = 0.14496-0.00013249(SP) + 15.522[(H/M)/TSM]. Con el primer MRLM se analizó la sensibilidad de r a cambios de SH, y con el segundo la resulta a cambios de SP, H/M y TSM. Con los MRLM, en las cuatro zonas r varió en relación directa con H/M (Fig. 7A) e inversa con TSM (Fig. 7B). Por otro lado, r varió en relación directa con SH en las zonas 3 y 4 (Fig. 7D); en ninguna zona la variación de SP generó cambios en r (Fig. 7E).
Discusión
Los resultados indicaron que la proporción de sexos y la tasa de crecimiento poblacional (r) de jaiba café varían a lo largo de la costa de Sonora y que en el período reproductivo la proporción de hembras tiende a incrementarse claramente en la parte central y aparentemente en la sur. Estudios anteriores reportaron segregación espacial por sexos (p. ej. Ramach, Darnell, Avissar, & Rittschof, 2009); sin embargo, no se conocen trabajos publicados que documenten la variabilidad de r en una misma área o la relación de r con la proporción de sexos o las condiciones del hábitat de las jaibas.
Pese a la escasez de datos, los resultados apuntan a conclusiones importantes sobre la biología y manejo pesquero de la jaiba café. La interpolación lineal y el uso de tendencias de valores contiguos pudieron alterar los valores reales de H/M. No obstante, en la zona 4 carente de datos de mayo a julio, H/M siguió la tendencia de la zona 3, para la cual hubo datos en el mismo período.
Se ignoran las razones por las cuales se observó mayor proporción de machos en las cuatro zonas. No se puede descartar un efecto del arte de pesca (Magana, Dobson, & Mathooko, 2012) y posiblemente la proporción varíe incluyendo organismos de profundidades fuera del alcance de la pesquería. Los resultados coinciden con otros estudios de la misma especie dentro del Golfo de California recolectados con el mismo tipo de arte. En la laguna costera de Santa María La Reforma (Sinaloa) se encontró 71 % de machos (Rodríguez, Castillo, Pérez, & Aragón, 2012). En las bahías de Lobos y Las Guásimas (Sonora) la proporción de machos varió entre 55 y 57 % (Nevárez et al., 2003; Reyes, López, Nevárez, & Morales, 2007); en el Canal de Infiernillo-Bahía de Kino (Sonora) la proporción de machos varió entre 64 y 85 % (Bourillón, 2002; Torre, Bourillón, & Weaver, 2004).
La proporción de sexos 1:1 aumenta la probabilidad de éxito reproductivo (Fisher, 1930) y en crustáceos la proporción teórica es 1:1 (Warner, 1977), aunque puede variar. Las causas de la segregación por sexos incluyen: preferencia y disponibilidad de alimento; reducción del riesgo de depredación intraespecífica y del costo energético por apareamiento fuera de la época reproductiva; búsqueda de mejor hábitat; o diferentes tasas de mortalidad y crecimiento (Cobb & Caddy, 1989; Cobb & Wang, 1985; Heupel, Carlson, & Simpfendorfer, 2007; Klimley, 1987; Sims, Nash, & Marritt, 2001; Springer, 1967;).
En Callinectes la proporción de sexos varía temporalmente cuando las hembras ovígeras migran a la boca de las lagunas costeras para liberar los huevecillos, aunque después regresan al interior (Branco & Masunari, 2000; Baptista et al., 2005). Por la muda terminal de las hembras de jaiba café (Rodríguez et al., 2012), la proporción de hembras disminuiría con la talla. La pesca sesgada hacia un sexo o tamaño, también podría hacer variar la proporción de sexos, ya sea en la población o en alguna zona.
Si la proporción dominante de machos de jaiba café observada en Sonora es algo natural, entonces para la población es más importante asegurar el suministro de esperma que maximizar la producción de huevos, y la biomasa debiera mantenerse estable o estar creciendo. Si la proporción natural es 1:1 o dominan las hembras, entonces es más importante la producción de huevos que el suministro de esperma, y la proporción observada reflejaría alteración de hábitat o sobrepesca de hembras; en ambos casos se esperaría que la biomasa fuera disminuyendo, como fue reportado (Cisneros et al., 2014).
Bajo el supuesto de que las condiciones del medio ambiente de cada zona influyen en r, los análisis de sensibilidad indicarían qué factores son preponderantes. Con información para solo cuatro zonas no fue posible desarrollar modelos estimativos sino indicativos. Los MRLM incluyeron variables sencillas y compuestas sin incurrir en colinealidad al no repetir variables independientes en el mismo MRLM. Los modelos b y k parecen contradecirse: usando el MRLS b hubo una relación directa entre TSM y r, pero con el MRLM k no hubo respuesta a cambios en TSM. Esto denota efecto confusión de la TSM al asociarse con H/M en el MRLM k. El otro efecto típico en regresión es la interacción, que ocurrió con SP en los MRLM: la variable (H/M)/TSM, con un coeficiente (15.522) cinco órdenes de magnitud mayor que el de SP en ambos modelos, prácticamente nulificó el efecto de SP en el MRLM k. Derivado de los análisis, en teoría al tener mayor peso que las otras variables (individuales o combinadas) H/M se relaciona directamente con r. Esto está en consonancia con lo observado para otros crustáceos: relación directa entre H/M y la actividad reproductiva (Serrano, 1991; Wilcox, 2007).
Los datos y los análisis indicaron que los humedales son importantes para los stocks de jaiba porque H/M y SH se relacionan directamente con r. El stock de la zona 3 tiene la mayor r, la mayor H/M y la mayor SH. Esto puede indicar que la producción de huevos aumenta con la abundancia de hembras (Lasker, 1985) y la abundancia de humedales favorece el reclutamiento (Carmona, 2009; De Lestang et al., 2010; Fischer & Wolff, 2006). Dada la importancia de este posible hallazgo, en el futuro se deben incorporar mayor cantidad de datos para mejorar el análisis de sensibilidad.
Los resultados sugieren que el manejo de la pesquería de jaiba café en Sonora debe procurar proteger a las hembras. Esto se podría lograr estableciendo refugios pesqueros dentro y en las bocas de lagunas costeras durante el período de máxima actividad reproductiva (Kunsook, Gajaseni, & Paphavasit, 2014). Una táctica similar se emplea exitosamente en la pesquería de langosta en Australia (Hall & Chubb, 2001). Estudios posteriores debieran profundizar nuestros resultados y recomendar una proporción de sexos apropiada para la jaiba café de Sonora, porque la pesca excesiva de machos también podría afectar el reclutamiento (Botsford, 1995) y/o la variabilidad genética (Allendorf & Hard, 2009).

