


 Spanish (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
 Cited by SciELO
 Similars in
SciELO
 uBio

 Permalink

El ostión americano, Crassostrea virginica (Gmelin, 1791), se distribuye en las lagunas de la costa este de América, desde Canadá hasta México (Meyer & Townsend, 2000). Para latitudes templadas, se ha reportado que la fisiología reproductiva de C. virginica, se ve afectada directamente por los cambios estacionales en la temperatura (Loosanoff & Nomejko, 1951; Galtsoff, 1964; Giese & Pearse, 1979; Kennedy & Krantz, 1982; Shumway, 1996). La mayoría de los trabajos en esta especie han sido realizados en esas latitudes, existiendo pocos estudios en lagunas tropicales, donde este parámetro presenta poca variación a lo largo del año (Arias-de León, LangoReynoso, Chávez-Villalba, Castañeda-Chávez, & Ramírez-Gutiérrez, 2013; Aldana-Aranda et al., 2014).
En este sentido Bayne (1973), Wilson et al. (2005) y Neto et al. (2013) observaron en diferentes bivalvos marinos que la salinidad y la cantidad de alimento son los que influyen en la actividad reproductiva.
De la misma manera Dinamani (1987) y Ruiz, Martínez, Mosquera, Abad y Sánchez (1992), observaron la influencia de la cantidad de alimento y las fluctuaciones de temperatura en el ciclo reproductivo de C. gigas. En C. virginicaPaniagua-Chávez y Acosta-Ruiz (1995) en C. gigas y Thompson, Newell, Kennedy y Mann (1996), señalan que la temperatura tiene efecto en el desarrollo gonádico, únicamente cuando los requerimientos alimenticios están completos, reportando que no hay sincronía en la liberación de gametos en ambos sexos. Freites et al. (2010), señalan que la almeja Anadara notabilis de la franja tropical, presenta una reproducción continua y asincrónica, indicando que la temperatura regula el desarrollo de ovogonias y espermatogonias.
Orton (1920), Barillé (1997), Kobayashi, Hofmann, Powell, Klinck & Kusaka (1997), van der Veer, Cardoso & van der Meer (2006), Dutertre et al. (2009) emplean el concepto de temperatura umbral como una constante fisiológica, que al ser alcanzada permite el inicio de la producción y crecimiento de los gametos.
Por lo que respecta al efecto de la salinidad en la reproducción de C. virginica; Rogers & García-Cubas (1980), Martínez, Aldana, Brulé & Cabrera (1995) y Aldana-Aranda (2004), señalan que la disminución de salinidad estimula la liberación de gametos.
Los trabajos efectuados con C. virginica en la región tropical del Golfo de México, reportan para esta especie una reproducción continua durante todo el año (Martínez et al., 1995; George-Zamora, Sevilla, & Aldana, 2003; Baqueiro-Cardenas, Aldana-Aranda, Sevilla, & Rodríguez, 2007). Sin embargo, Sevilla y Mondragón (1965) para la laguna de Tamiahua reportó un ciclo con estadios de gametogénesis, madurez y desoves estacionales y secuenciales en un ciclo anual. Ruiz et al. (1992) señalan la plasticidad que tiene esta especie para tolerar amplios intervalos de temperatura y salinidad. Shumway, (1996) y Cormier-Méthé (2015) han observado que los mayores efectos fisiológicos sobre la reproducción se producen con las fluctuaciones de temperatura y salinidad.
Con base en lo anterior, los objetivos de este trabajo fueron evaluar el efecto que tienen la temperatura y la salinidad sobre los estadios de maduración gonadal en ambos sexos y en dos grupos de tallas en C. virginica de la Laguna de Tamiahua en el norte de Veracruz.
Materiales y métodos
Área de estudio: La Laguna de Tamiahua es una de las lagunas costeras más grande del Golfo de México, se encuentra entre las latitudes 21°15’ N - 97°23’ W y 22°06’ N - 97°46’ W al norte del estado de Veracruz. Tiene una longitud de 100 km y 25 km de ancho, y una superficie de 12 581 ha (Contreras, 1993).
Esta laguna forma parte de las cuencas hidrológicas de los ríos Tuxpan y Pánuco (Botello & Calva, 1998). Presenta dos bocas: una al norte, la boca de Tampachiche y otra al sur, la boca de Corazones, que se encuentra frente a la ciudad de Tamiahua. Su profundidad promedio es de 2.2 m (Álvarez, De la LanzaEspino, & Cáceres-Martínez, 1994). Su clima es cálido húmedo con lluvias en verano, presentando una precipitación pluvial media anual de 1 500 mm (Contreras, 1993). Esta laguna es el principal reservorio del recurso ostión en América latina (Camacho et al., 1978).
Variables ambientales: Los datos de temperatura y salinidad del agua son valores medios obtenidos por la Comisión Nacional del Agua y de datos reportados para esta localidad de 1970 a 2013 por diversos autores (Contreras, 1985; Reguero, García-Cubas, & Zúñiga, 1991; De la Lanza-Espino, 1998; Ocaña-Luna & Sánchez, 2003; Hernández, Valdez, & Zavala, 2006).
Recolecta de organismos y procesamiento histológico: Los ostiones se recolectaron en los tres bancos ostrícolas de mayor producción reportados por los pescadores: La Palma (21°22’ 23’’ N - 97°26’44’’ W), Panzacola (21°21’23’’ N - 97°27’05’’ W) y Cabecillas (21°18’00’’ N - 97°26’28’’ W).
Se realizaron muestreos mensuales de enero a diciembre 2011, extrayéndose al azar 30 individuos por banco, utilizando el arte de pesca de los pescadores, que consiste en una tenaza, con la cual recogen del sustrato ostiones y los epibiontes asociados a los bancos ostrícolas. De cada individuo se obtuvo la longitud mayor, establecida como la línea de mayor longitud perpendicular a la charnela. Para analizar el efecto de la temperatura y la salinidad por tallas se utilizaron dos criterios, uno pesquero que se refiere a la talla mínima de captura por la regulación pesquera mexicana que es de 61 mm, y otro biológico-reproductivo señalado por Menzel (1951) y Thompson et al. (1996), correspondiente a la talla mínima para la actividad reproductiva que es de 40 mm. Con base en lo anterior, las tallas obtenidas para este estudio se agruparon en dos categorías: de 40-60 mm y ≥ 61 mm.
Se tomó una muestra transversal de 1 cm3 de la región media de la masa visceral de cada organismo. Las muestras extraídas fueron fijadas en formol al 10 % (con agua filtrada de la misma laguna) durante un lapso de 72 h. Posteriormente, se deshidrataron, se transparentaron en UltraClear®, y se incluyeron en parafina Paraplast®. De cada muestra se realizaron cortes histológicos de 6 μm empleando un micrótomo Microm®. Los cortes fueron teñidos con la técnica Hematoxilina-Eosina (H-E) (Gabe, 1968). El sexo de los organismos y el estado de madurez sexual, se determinó mediante la observación microscópica de los cortes histológicos de la muestra de gónada-glándula digestiva de cada individuo. Los estados de madurez gonádica se determinaron de acuerdo a la clasificación de Lucas (1965): gametogénesis, madurez y liberación.
Como los datos con los que se trabajó no cumplieron con los supuestos de normalidad, se realizó la prueba de Wilcoxon entre las frecuencias de los estadios del ciclo gonádico para hembras y para machos, y para ambos rangos de tallas analizados. Asimismo, se realizaron pruebas de correlación de Spearman para determinar la relación entre los estadios de madurez gonádica de las hembras y de los machos y en sus dos rangos de tallas con las variables ambientales. Por último, se hizo un escalamiento multidimensional no métrico (NMDS) con ajustes del modelo lineal generalizado entre los tres estadios gonádicos de las hembras, de los machos y para los dos rangos de tallas con la temperatura y la salinidad.
Resultados
Ciclo reproductivo: El ciclo reproductivo para hembras y machos se presenta en la figura 1. La gametogénesis se presentó todo el año en ambos sexos y ambas tallas, excepto en septiembre para hembras.
En las hembras de 40-60 mm, de enero a abril, la gametogénesis va en aumento, con un pico de 75 % en abril, disminuyendo hasta septiembre donde la gametogénesis no se presentó. Un segundo pico de 55 % se observó en diciembre. Mientras que en las hembras ≥ 61 mm la gametogénesis es alta, de 70 %, de enero a junio disminuyó a 6 % en septiembre para aumentar nuevamente a partir de octubre.
Los machos de 40-60 mm presentaron un pico de gametogénesis de 90 a 100 % en abril y un pico de 50 % de octubre a diciembre. Los machos de tallas ≥ 61 mm presentaron tres picos, uno en abril de 94 %, en octubre de 27 % y en diciembre de 50 %.
Los organismos maduros de ambos sexos y ambas tallas se presentaron todo el año. En las hembras de tallas de 40-60 mm el mayor pico de 54 % se presentó en agosto. En los machos de la misma talla, el comportamiento fue similar, con un pico del 55 % en agosto. En la talla de ≥ 61 mm, tanto en las hembras como en los machos, se presentó un pico en agosto, con valores del 80 % en machos y de 66 % para las hembras.
La liberación de gametos se presentó todo el año en individuos de ambos sexos y ambas tallas. Las hembras de tallas 40-60 mm presentaron dos picos mayores al 70 % en noviembre y enero, y en las ≥ 61 mm el pico fue de 60 % en septiembre-octubre. Los machos con tallas de 40-60 mm, presentaron dos picos, uno de 48 % en enero y otro de 42 % en septiembre. Un patrón similar se presentó para los machos con tallas ≥ 61 mm.
En el Cuadro 1 se presenta la comparación entre hembras y machos y entre los ostiones de tallas de 40-60 mm y de ≥ 61 mm para los diferentes estadios de madurez gonádica, no encontrándose diferencias (p > 0.05).
CUADRO 1 Comparación de los estadios gonádicos entre hembras y machos (sexos) y entre ostiones con tallas de 40 - 60 mm y de ≥ 61 mm (tallas) (Prueba de Wilcoxon: W, p = >0.05) en el ostión americano Crassostrea virginica Comparison of gonadal stages between males and females (gender) and oysters with sizes between 40 - 60 mm and ≥ 61 mm (sizes) (Wilcoxon test: W, p = > 0.05) in the American oyster Crassostrea virginica
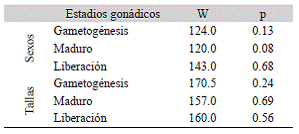
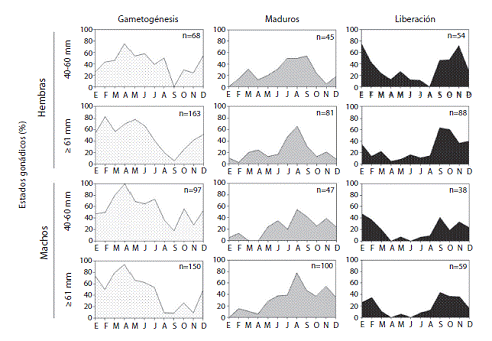
Fig. 1 Reproductive cycle of females and males for size ranges from 40-60 mm and ≥ 61 mm of Crassostrea virginica.
Correlación entre la temperatura, la salinidad y los estadios de madurez gonádica . La temperatura media anual del agua fue de 26.9 ± 3.4 °C durante el periodo de muestreo, oscilando entre 22 y 30 °C (Fig. 2). Resulta interesante señalar que la temperatura solo afectó de manera significativa a las hembras maduras, y para ambas tallas. En cambio, los machos no presentaron ninguna correlación de los estadios reproductivos con la temperatura (Cuadro 2).
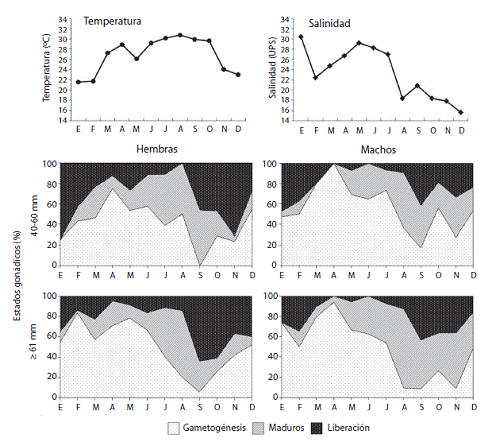
Fig. 2 Reproductive cycles of females and males for size ranges from 40-60 mm and ≥ 61 mm of Crassostrea virginica with the averages monthly temperature and salinity from Tamiahua lagoon, Veracruz, Mexico.
CUADRO 2 Valores de correlación (r) entre la temperatura y la salinidad con los estadios gonádicos de hembras y machos del ostión americano, Crassostrea virginica en Tamiahua, Veracruz, México
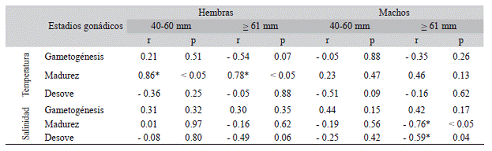
*Correlación significativa. / * Significant correlation.
La salinidad media mensual, varió de 16 a 31 UPS presentando un marcado descenso de junio a diciembre. La salinidad tuvo un efecto en los organismos de mayor talla (≥ 61 mm) tanto en machos como en hembras. En los machos, este parámetro tuvo una correlación significativa con los estadios maduro y en liberación. Mientras que en las hembras, esta correlación entre desove y salinidad fue alta (r= -0.497), pero no significativa.
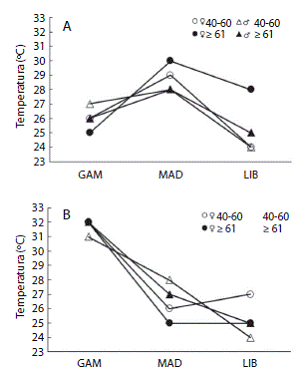
Umbrales de temperatura y salinidad: La figura 3 muestra el análisis de escalamiento multidimensional no métrico, entre la temperatura y salinidad para cada uno de los estadios de madurez gonádica tanto para hembras como para machos y para los dos rangos de tallas y la figura 4 resume la temperatura y salinidad umbrales para cada estadio reproductivo. Se observó que las hembras de 40-60 mm requieren 26 °C y 32 UPS para iniciar la gametogénesis. Mientras las de ≥ 61 mm, la inician en 25 ºC en el mismo rango de salinidad. Para alcanzar el estadio maduro las de 40-60 mm requieren 29 °C y 26 UPS, mientras que las de ≥ 61 mm necesitan de 30 ºC y 25 UPS. La liberación de ovocitos en las hembras de 40-60 mm se inició a 24 ºC y 28 UPS, y para las de ≥ 61 mm a 28 ºC y a 25 UPS.
En machos de 40-60 mm, la gametogénesis inició a 27.5 °C y 31 UPS. Mientras que para los de talla ≥ 61 mm se inició a 26.5 ºC y 32 UPS. Los machos maduros de 40-60 mm requieren una temperatura de 28 °C y una salinidad de 28 UPS, mientras que los de ≥ 61 mm requirieron 28.5 °C y 27 UPS. La liberación de espermatozoides se inició, a 24 °C y 28.5 UPS en ostiones de 40-60 mm, por su parte, los ostiones machos con tallas ≥ 61 mm necesitaron 25 ºC y 27 UPS.
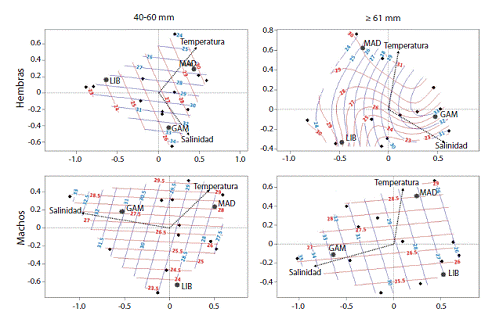
Fig. 3 Non-metric multidimensional scaling, among temperature (red lines) and salinity (blue lines) and reproductive stages of females and males for size ranges from 40-60 mm and ≥ 61 mm of Crassostrea virginica. GAM, Gametogenesis; MAD, Mature; LIB, spawning/spent. Temperatura y salinidad umbral para cada estadio del ciclo de madurez gonádica. Threshold temperature and salinity for each stage of gonadal maturation cycle is represented by an asterisk (*)
Discusión
Los invertebrados marinos que habitan en la franja tropical, generalmente muestran una reproducción continua y asincrónica (Freites et al. 2010). Bayne (1973) establece con bivalvos marinos, que estos pueden tener diferentes estrategias reproductivas. Una de ellas, se refiere a la formación de gametos a partir de la energía aportada directamente de la ingesta de alimentos (oportunistas), en lugar de utilizar la energía almacenada como reservas de los tejidos somáticos, tal como ocurre en especies de zonas templadas.
En este estudio, los estadios de gametogénesis, maduros y liberación de gametos se presentaron durante todo el año, coincidiendo con lo observado por otros autores en C. virginica de distintas localidades de la región tropical del Golfo de México (Rogers & García-Cubas, 1980; Martínez et al. 1995; George-Zamora et al., 2003; Baqueiro et al., 2007). Estas estrategias reproductivas pueden ser consideradas como adaptaciones a las condiciones del ambiente (Ruiz et al., 1992) y reflejan la plasticidad que tiene esta especie para tolerar amplios intervalos de temperatura y salinidad.
La temperatura del agua en zonas templadas ha sido señalada como uno de los parámetros que ejerce mayor efecto sobre la duración e intensidad del ciclo reproductivo en diferentes especies de ostiones (Galtsoff, 1964; Giese & Pearse, 1979; Kautsky, 1982). En ostiones de latitudes tropicales, esta relación no es tan clara. Así, Lasiak y Dye (1989), Martínez et al. (1995), George-Zamora et al. (2003), observan que este parámetro influye poco o nada en la madurez y en la liberación de gametos.
En contraste, en este estudio se observó que el pico de ostiones maduros coincide con la mayor temperatura del año (31 °C). Asimismo, este parámetro se correlacionó de manera positiva en hembras maduras de 40-60 mm (r= 0.86, p= 0.001) y de ≥ 61 mm (r= 0.76, p= 0.02). La temperatura es primordial en las hembras, debido a que influye sobre la conversión del glicógeno, proceso necesario para la biosíntesis de lípidos que son moléculas indispensables durante la vitelogénesis en ostiones (Ruiz et al., 1992, Dridi, Romdhane, Elcafsi, 2007; Liu, Li, Gao, & Kong, 2010).
Los valores umbrales de la temperatura obtenidos en este estudio, sugieren que los machos necesitan una temperatura de 1-2 ºC mayor que las hembras para iniciar el proceso de gametogénesis. Las hembras de 40-60 mm iniciaron la ovogénesis a 26 °C y los machos a 27 °C. Por lo que respecta a las hembras ≥ 61 mm, la inician a 25 °C y los machos a 26 °C. Lo anterior coincide con lo reportado por Arias-de León et al. (2013), con C. virginica en distintas lagunas del Golfo de México, especie en la cual observaron grandes cambios en el ciclo gonádico debido a variaciones de temperatura de uno a dos grados centígrados.
Otra contribución de este estudio al analizar el ciclo de madurez gonádica por separado para hembras y machos y para diferentes tallas, fue observar que para alcanzar la madurez en hembras y machos, la temperatura fue mayor que la que se necesitó para iniciar la gametogénesis. El incremento de 3 a 5 °C que requirieron las hembras para este cambio fue mayor que el rango de temperatura que necesitaron los machos, que fue de tan solo 1 a 2 °C. Este resultado coincide con lo reportado por Galtsoff (1964), quien sugiere que la maduración gonadal, los procesos de liberación de gametos y la tasa de recuperación, son mucho más demandantes en hembras que en machos, por lo tanto, necesitan más energía para realizarlas.
En este trabajo, se observó que para la liberación de gametos en C. virginica, fue necesario un decremento de temperatura (de 2 hasta 5 °C) con respecto a la necesaria para alcanzar la madurez. Cuevas-Guevara y Martínez-Guerrero (1979), y Vélez y Epifanio (1981), encontraron los mismos resultados para distintas especies de ostiones tropicales. Por el contrario, Rodríguez-Jaramillo et al. (2008) trabajando con Crassostrea corteziensis en el Pacífico mexicano, encuentran que se necesita mayor temperatura para liberar los gametos que para madurar. Pazos, Román, Acosta, Abad y Sánchez (1996) observaron en Pecten maximus, un comportamiento reproductivo en que se presentaban dos temporadas de liberación de gametos coincidiendo con los meses de mayor y menor temperatura, sugiriendo que lo que se necesita es un marcado cambio en la temperatura en un periodo corto de tiempo.
Por su parte, la salinidad umbral requerida para la gametogénesis en los ostiones de este estudio, fue mayor a la necesitada para los estadios de maduración y liberación. Las hembras al igual que los machos ≥ 61 mm, iniciaron la gametogénesis con una salinidad de 32 UPS, mientras que los machos de 40-60 mm necesitaron 31 UPS.
Con resultados similares, Supan y Wilson (2001), reportaron que la mayoría de los eventos reproductivos en C. virginica al norte del Golfo de México, ocurren en un intervalo de salinidad de 10-34 UPS. Si los ostiones son expuestos a concentraciones fuera de este rango, la gametogénesis se reduce, la liberación de gametos se inhibe y el tejido gonádico es reabsorbido.
Los estadios maduros y de liberación de gametos en C. virginica son estimulados por decrementos en los valores de salinidad (Rogers & García-Cubas, 1980, Martínez et al., 1995, George-Zamora et al., 2003). En este trabajo se observó una estrecha relación entre la caída de la salinidad y machos en estadios maduros y liberación de gametos con tallas ≥ 61 mm.
La reducción de la salinidad, está asociada a cambios en los niveles de nutrientes que influyen en la disponibilidad de alimento, lo que actúa como un agente estresante para C. virginica, y provoca la liberación de gametos (Jmeliova & Sanz, 1969; Angell, 1986). En el mismo sentido, Neto et al. (2013) observaron que los decrementos rápidos en la salinidad, estimulan la citolisis de las paredes de los folículos gonádicos en especies del género Crassostrea, permitiendo la liberación de los gametos. Con respecto a la influencia de este parámetro en distintas tallas de C. virginica, La Peyre, Eberline, Soniat y La Peyre (2013), observaron un efecto diferencial al utilizar como criterios el reclutamiento, el crecimiento, y la mortandad.
En este trabajo, se puso en evidencia que la temperatura y la salinidad no ejercen el mismo efecto en la reproducción de hembras y machos del ostión americano; la madurez estuvo influenciada por la temperatura en hembras, pero no en machos. En cambio, la disminución de la salinidad fue determinante en el proceso de liberación de gametos en machos. En hembras, éste parámetro no tuvo efecto. Por lo que respecta al patrón reproductivo por rango de tallas, éste fue similar en hembras y machos.

