


 Spanish (pdf)
 Article in xml format
 Article references

 Automatic translation
 Send this article by e-mail
 Cited by SciELO
 Similars in
SciELO
 uBio

 Permalink

Las especies neotropicales de peces de aguas continentales de centro y sur América corresponden a 4 475 especies válidas, con 1 550 especies aún no descritas (Reis, Kullander, & Ferraris, 2003); de las especies descritas, Ecuador contribuye con 398 (Froese & Pauly, 2013). Los antecedentes disponibles para estas especies, en su mayoría se restringen a aspectos taxonómicos y de distribución, existiendo un desconocimiento de su biología, especialmente su reproducción.
Por otra parte, estas especies constituyen la base de una importante pesquería en aguas interiores del Ecuador, que en algunos sectores son fuente de empleo y alimentación para muchos habitantes de estas zonas (Barnhill, López, & Les, 1974; Prado et al., 2004; Revelo & Elías, 2004; Pacheco & Chicaiza, 2007; Prado & Castro, 2010).
El proceso reproductivo en especies ícticas de ambientes tropicales es consecuente con las características ambientales locales (Peressin, Gonçalves, & Braga, 2012), comienza generalmente en junio-julio, con una alta frecuencia de individuos maduros en septiembre-octubre (Schifino, Fialho, & Verani, 1998), ocurriendo máximos reproductivos en los meses de mayor precipitación y temperatura (Peressin et al., 2012), coincidiendo con el mayor nivel del agua (Vieira, Isaac, & Fabré, 1999; Montreuil, García, & Rodríguez, 2001).
Las especies ícticas dulceacuícolas tienen diferente respuesta biológica si habitan un ambiente lótico o uno léntico. Así las lóticas por lo general se caracterizan por una migración reproductiva, una época de desove corta, un solo desove, no hay cuidado parental, los huevos son libres, con una mayor fecundidad relativa, embriogénesis rápida y un mayor tamaño corporal; mientras que en la mayoría de las especies lénticas no hay migración reproductiva, la época de desove es extendida, son desovantes múltiples, existe cuidado parental, los huevos son adherentes, con una menor fecundidad relativa, una embriogénesis más extendida y un tamaño corporal menor (Godinho, Lamas, & Godinho, 2010).
Por otra parte, algunas especies que habitan ambientes lóticos son capaces de adaptarse a sistemas lenticos, como lo es una represa o un embalse; en estos casos, estas especies pueden ser beneficiadas por este cambio, convirtiéndose en especies abundantes o dominantes en estos nuevos ambientes, como ocurre con algunas especies de Curimatidae (Loureiro-Crippa & Hahn, 2006; Novakowski, Segatti, & Fugi, 2007; Gonçalves & Braga, 2008), que pueden manifestar el ciclo reproductivo descrito, con algunos cambios que implican la presencia de especies que tienen múltiples posturas (Holzbach et al., 2005; Ribeiro, Santos, & Bazzoli, 2007; Petesse, Petrere, & Spigolon, 2007) y otras que son desovantes totales (de Alvarenga, Bazzoli, Santos, & Rizzo, 2006; Carmassi, Silva, Rondineli, & Braga, 2008).
Con la construcción del Embalse Chongón (2°13'51" S - 80°06'59" W) en la provincia del Guayas, Ecuador, con 2 600 ha de espejo de agua y 280 000 000 m3 de capacidad, se permitió acopiar aguas proveniente de los ríos Chongón y Bedén, donde peces silvestres de algunas especies que habitaban estos sistemas hidrográficos se pudieron ambientar a este sistema léntico, estableciéndose una extracción de recursos ícticos a partir del año 1984, que favoreció a cerca de 300 pescadores (Rosero, Villón, Suéscum, Contreras, & Macías, 1996).
Entre estas especies se distingue a Pseudocurimata boulengeri (Eigenmann, 1907) (Curimatidae, dica), que se distribuye en los ríos del suroeste del Ecuador, principalmente en aquellos que drenan desde la parte norte del Golfo de Guayaquil al suroeste (Vari, 1989a). Es una de las especies nativas de importancia comercial, capturada por pescadores artesanales, principalmente en el sistema hídrico lótico de la provincia de Los Ríos, donde es la especie dominante (42.3 %) respecto de la captura total, con una longitud total promedio de captura de 17.3 cm, una mayor proporción de hembras que machos, febrero se caracteriza por una mayor actividad reproductiva, mientras que en los meses de marzo y abril predominan los peces inmaduros, estimándose una talla media de madurez sexual en 16 cm (Revelo, 2010).
Estos parámetros biológicos determinados para P. boulengeri en un ambiente lótico, ¿se conservan en un ambiente léntico? se esperaría que así fuera, sin embargo hay especies que responden de distinta manera dependiendo del ambiente en que se encuentran. Al comparar ambos sistemas, en el caso de Aplodinotus grunniens Rafinesque, 1819 (Sciaenidae), los peces de ambientes lóticos son más robustos y se asocian con tasas de crecimiento más altas, que los ejemplares que crecen en ambientes lénticos (Rypel, Bayne, & Mitchell, 2006); en Prochilodus lineatus (Valenciennes, 1837) (Characidae) la fecundidad es mayor en ambientes lóticos respecto de lénticos (Escobar, Regidor, Iwaszkiw, & Mosa, 2011), mientras que en Cheirodon interruptus (Jenyns, 1842) (Characidae), su espectro trófico es más amplio en un ambiente léntico que en uno lótico (Escalante, 1987).
La respuesta a esta pregunta no solo es importante desde un punto de vista biológico, sino que además, permite contribuir con antecedentes a la autoridad pesquera para el establecimiento de medidas administrativas. De este modo, la presente contribución tiene por objetivo determinar la proporción de sexo, relación longitud-peso, factor de condición, época de desove y talla de primera madurez sexual para machos y hembras de P. boulengeri.
Materiales y Métodos
Entre 2003 y 2009 en el embalse Chongón se analizaron las capturas de P. boulengeri, en el marco del programa Recursos Pesqueros de Agua Dulce del Proceso Investigación de Recursos Bioacuáticos y su Ambiente (IRBA), del Instituto de Pesca del Ecuador (INP, 2012).
La captura de los peces se efectuó con redes de enmalle de 2.5 pulgadas de luz de malla y se efectuaron muestreos mensuales en 15 lugares distintos del embalse (2°13'51" S - 80°06'59" W). A los ejemplares se les registró su longitud total (Lt) y peso total (Pt) mediante disección se determinó el sexo y su estado de madurez sexual macroscópico (Leavastu, 1971), describiendo las características de las gónadas tales como: forma, ubicación, relación con otros órganos, características de la membrana gonadal, presencia de irrigación sanguínea y porción ocupada por ésta en la cavidad abdominal.
Se determinó, la proporción de sexos total, anual, mensual y mediante una prueba chi-cuadrado con bondad de ajuste, se estimó la significancia en la relación esperada de 1:1 entre hembras y machos (Zar, 1999). Además, se estableció la distribución de longitudes y pesos, así como la proporción de machos y hembras según longitud y peso para P. boulengeri.
Las curvas potenciales de la relación Lt/Pt para hembras y machos, se compararon con un análisis de covarianza (ANCOVA; Zar, 1999); para evaluar la significancia estadística del exponente isométrico (b), éste se analizó con la función propuesta por Pauly (1984):
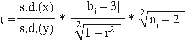
donde t es el estadístico t-student; s.d. (x) e (y) corresponden a la desviación estándar del logaritmo de la Lt y del Pt para cada grupo analizado; ni es el número de peces muestreados; bi es el valor ajustado.
Se determinó el factor de condición de Fulton (Nikolsky 1963) por la relación

Para determinar el ciclo reproductivo y la época de desove para cada sexo, se determinó el Estado de Madurez Sexual macroscópico (EMS) de las gónadas (Cuadro 1), estimando el porcentaje del EMS mensualmente. También se efectuó un análisis anual (2007 a 2009) por sexo de los EMS, lo que permitió visualizar la variabilidad del ciclo reproductivo. Para categorizar los EMS se utilizó como base los criterios propuestos por Leavastu (1971).
Cuadro 1: Estados de madurez sexual (EMS) macroscópico para hembras y machos de Pseudocurimata boulengeri, según la escala propuesta por Leavastu (1971) Table 1:Macroscopic sexual maturity stages (EMS) for females and males of Pseudocurimata boulengeri, according to the scale proposed by Leavastu (1971)

La talla de primera madurez sexual, se determinó tanto en machos como en hembras, utilizándose los datos correspondientes al periodo de mayor actividad reproductiva en el año (octubre a febrero). Los ejemplares hembras y machos se agruparon en inmaduros (estadios I y II) y maduros (estadios III a VII) (Alarcón & Arancibia, 1993; Leal & Oyarzún, 2003; Flores & Smith, 2010; Revelo, 2010) en intervalos de 1 cm, obteniendo la proporción de los ejemplares maduros para cada talla. Los datos se ajustaron al siguiente modelo logístico:
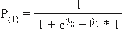
donde: P(l) es la proporción de hembras maduras en el intervalo de talla dado; l es la longitud total en centímetros; β0 y β1 son los parámetros de intercepto y pendiente de la ojiva de madurez, respectivamente. Los parámetros β0 y β1 se estimaron minimizando el negativo del logaritmo de la función de verosimilitud (Roa, Ernst, & Tapia, 1999), que corresponde a la siguiente función binomial:
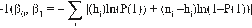
donde: P(l) se calculó de la ecuación anterior; β0 y β1 son los parámetros de la ojiva de madurez anteriormente determinados; h es el número de individuos maduros y n es el tamaño de la muestra en el intervalo de talla l. El mínimo de la función de verosimilitud se encontró con un algoritmo de iteración Quasi-Newton, utilizando la herramienta Solver de Microsoft Excel.
La talla de madurez sexual fue determinada mediante la siguiente función:
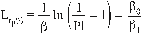
Para el cálculo de la talla de madurez sexual se utilizó el criterio del 50 % (Lt50 %). De esta forma reemplazando Pl por 0.5 en la expresión anterior, se tiene que Lt50 % queda definido por:

Resultados
En el período de estudio, enero 2003 a julio 2009, se capturó un total de 3 513 ejemplares de P. boulengeri, el año de mayor captura correspondió al 2008 con 802 peces (Fig. 1A). Al agrupar la información de los ejemplares mensualmente, el mes de mayor captura fue febrero con 633 peces (Fig. 1B).

Fig. 1 Captura anual (A) y mensual (B) acumulada del total de ejemplares de Pseudocurimata boulengeri, del embalse Chongón, Ecuador.
Se determinó el sexo en 3 441 peces, donde la proporción hembra (67.2 %) y machos (32.8 %) en un análisis anual fue de 1:1 (P< 0.05; Fig. 2A); mientras que en un análisis mensual, se detectaron algunas diferencias. Así, de mayo a octubre la proporción sexual se ajustó a la proporción esperada de 1:1 (P < 0.05), caso contrario ocurrió para los meses de noviembre, diciembre, febrero y abril, donde existieron diferencias significativas en la proporción sexual (P > 0.05), siendo la cantidad de hembras superior a la de machos (Fig. 2B).

Fig. 2: Porcentaje de machos y hembras de Pseudocurimata boulengeri capturados por: A) año de muestreo y B) mes de muestreo
El mejor ajuste para la relación talla-peso (Fig. 3) para hembras y machos está dada por un modelo potencial Pt = 0.0368*Lt 2.6697 (R2 = 0.8331), en hembras la relación es Pt = 0.0332*Lt 2.7037 (R2 = 0.8494), mientras que en machos es Pt = 0.049*Lt 2.5755 (R2 = 0.7934). Se determinó la existencia de diferencias significativas entre las pendientes e interceptos de ambos sexos (Ho: b1=b2 F (1.3412) = 8 678, P< 0.05) (Ho: a1=a2 F (1.3412)= 12 892, P< 0.05).
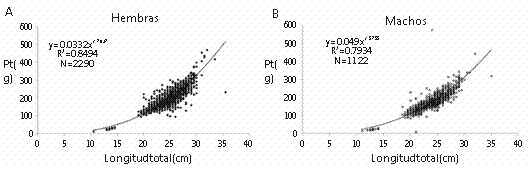
Las pendientes de la función potencial de hembras (b=2.7037) y machos (b=2.5755), fueron estadísticamente iguales a 3 (t = -12.449 y t = -10.809, respectivamente; P> 0.05), lo que determinó un crecimiento isométrico para ambos sexos.
El rango de tallas (Lt) analizado para hembras fue de 10.5 a 35.5 cm y para machos de 11.0 a 35.0 cm (Fig. 4A), existiendo diferencias en la distribución de hembras y machos (prueba para dos muestras independientes de Kolmogorov-Smirnov; D = -0.1593, P < 0.001). La talla de las hembras fue significativamente mayor que los machos (prueba U de Mann-Whitney; U= -9.6277, P < 0.05). La distribución del peso total (Pt) para hembras fue de 12.5 a 470.8 g y para los machos de 9.9 a 576.6 g (Fig. 4B), existiendo diferencia significativa en la distribución del Pt (D = -0.2257, P < 0.001), donde las hembras alcanzan un mayor peso que los machos (U = -11.9466, P < 0.05).

Fig. 4: Distribución de longitud total (A) y peso total (B) en hembras (2 310) y machos (1 130) de Pseudocurimata boulengeri
Al analizar la proporción de hembras y machos respecto de la talla (Lt, 11 a 36 cm), sólo en el rango de los 19 a los 22 cm se mantiene la proporción 1:1 de hembras y machos, en todas las demás tallas, siempre las hembras tienen una mayor proporción que los machos (Fig. 5A). Cuando se efectuó el mismo análisis respecto del peso total (Pt, 25 a 568 g), entre los 150 y 190 g se encontró la proporción 1:1 de ambos sexos, en los peces de 25 g es mayor la proporción de hembras; entre los 40 y 150 g los machos se encuentran en una mayor proporción, y en pesos superiores a los 190 g, son las hembras las que se encuentran en mayor proporción (Fig. 5B).
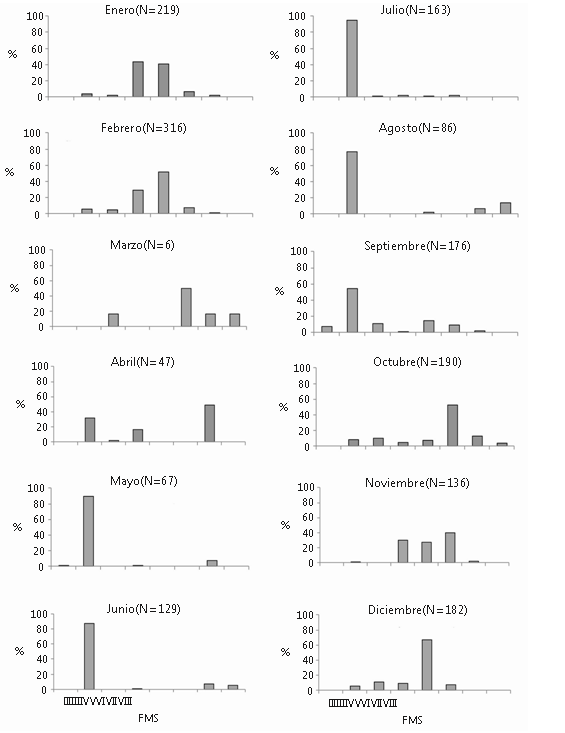
Entre marzo 2007 y abril 2009, se efectuó un registro mensual de los EMS macroscópico, tanto para machos como hembras, lo que permitió caracterizar todo el proceso reproductivo y describir las características de la gónada en sus diferentes estadios.

Fig. 5: Proporción de hembras y machos respecto de la longitud total (A) y peso total (B) en Pseudocurimata boulengeri
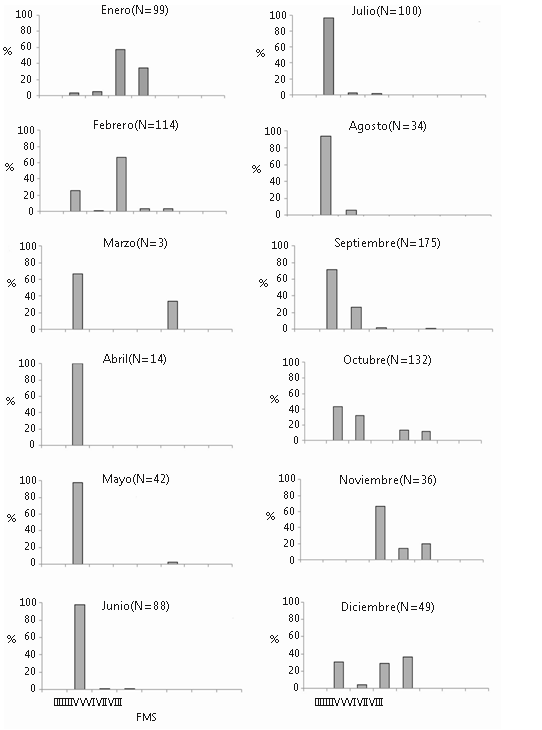
Un análisis mensual de los EMS correspondiente a todos los años de muestreo, permite visualizar que la mayor proporción de estados 5 (gravidez) y 6 (desove y/o espermiación) corresponden a los meses de octubre a marzo en ambos sexos (Fig. 6 y Fig. 7).
.
El índice de condición (K) para las hembras (Fig. 8A) muestra una disminución en los meses de marzo, abril y agosto (2007), de febrero a abril (2008) y de enero a marzo (2009), producto del proceso de desove. Igual situación se visualiza en machos (Fig. 8B), donde la disminución de este índice corresponde a marzo, abril y agosto 2007; febrero, abril y noviembre-diciembre 2008 y en marzo y abril 2009.
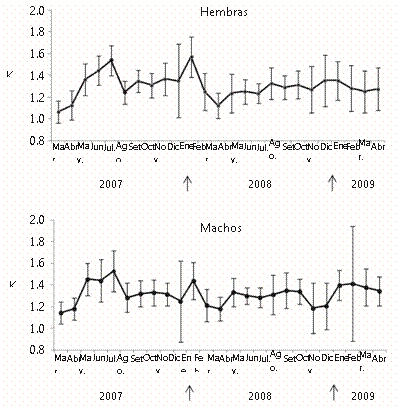
Con los antecedentes de los EMS y el índice de condición (K), se puede inferir que el ciclo reproductivo comprendería dos fases, una de baja actividad reproductiva, con presencia de un menor número de ejemplares hembras en estados de grávidas o desovadas y machos en espermiación, que se extendería entre los meses de abril a agosto, y una fase de alta actividad reproductiva, que se extendería entre los meses de octubre y marzo. Estos periodos pueden variar en un par de meses en los distintos años. Las primeras hembras con presencia de EMS de desove se detectan en octubre 2007 y en septiembre 2008. En el caso de los machos, los primeros peces en espermiación se detectaron en octubre 2007 y septiembre 2008.
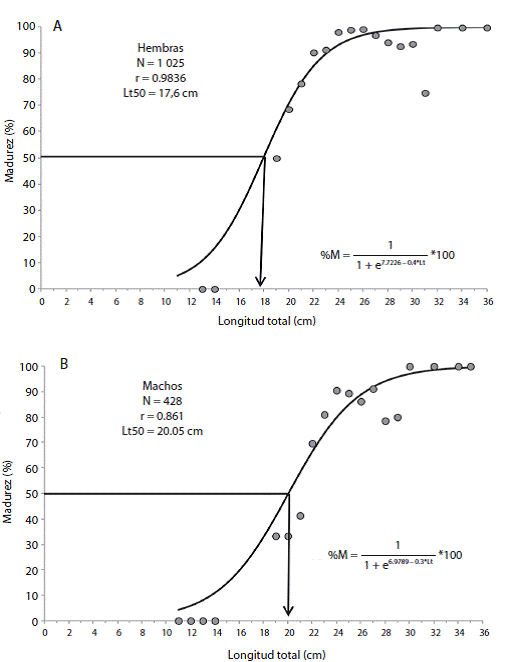
La estimación de la talla de primera madurez sexual (TPMS), se estableció con un total de 1 025 hembras y 428 machos, correspondiente a los meses de octubre a febrero. La TPMS para hembra fue determinada en 17.96 cm y para machos en 20.05 cm de Lt (Fig. 9).
Discusión
Generalmente en las especies de peces la proporción entre sexos es 1:1, así lo demuestran estudios realizados en peces marinos y dulceacuícolas (Nikolsky, 1963; Flores & Rojas, 1985; Arellano-Martínez, Rojas-Herrera, García-Dominguez, Ceballos-Vasques, & Villalejo-Fuerte 2001; Rodríguez-Olarte, Taphorn, & Marrero, 2001); sin embargo, hay reportes en que esta proporción puede cambiar (Pérez & Parra 2002; Trujillo-Jiménez & Toledo 2007; Ferriz, Bentos, Fernández, & López, 2011; Rodríguez, Garcia, de Almeida, & Orsi, 2011), lo que dependería de una población a otra o también variar en determinados momentos durante el año.
En el embalse Chongón, la proporción por sexo de P. boulengeri es diferente, las hembras siempre se encuentran en mayor cantidad (67.2 %) que los machos (32.8 %), proporción que es significativamente mayor en los periodos de madurez reproductiva. Esta diferente proporción de hembras y machos también es reportada en los informes biológicos pesqueros preparados por el Instituto Nacional de Pesca para el embalse Chongón (Pacheco & Chicaiza, 2007, Pacheco & Cabanilla, 2010, 2011). Cuando se analiza la captura de peces en los ríos Quevedo, Mocache, Vinces, Palenque, Babahoyo, San Pablo y Caracol, que forman parte del sistema hidrográfico de la provincia de Los Ríos, la proporción es diferente, las hembras varían entre 42 y 48.7 % y los machos entre 51.3 y 58 % (Revelo & Elías, 2004; Prado & Castro, 2010). Por otra parte, en muestreos en la misma provincia, donde se reportó una fracción de ejemplares indeterminados, los porcentajes fueron de 43.8 % de machos, un 33.8 % de hembras y un 22.5 % de indeterminados que corresponde a peces de una talla inferior a los 20 cm Lt (Prado et al., 2004).
En algunas especies de peces, los sexos tienden a segregarse prefiriendo hábitats particulares, lo que podría afectar a que uno de los sexos sea más vulnerables a la captura y depredación (Reynolds, 1974). En el caso de P. boulengeri, la proporción de sexo podría estar relacionada con la existencia de diferencia en las tallas de hembras y machos, que junto a la agrupación de peces que se produce en la época de desove, el arte de captura estaría seleccionando más las hembras, situación que debiera ser analizada en próximos estudios, mediante pruebas con redes de diferentes tamaños de mallas.
Otra diferencia que se detectó entre los sexos, es la distribución de tallas y la relación Lt-Pt, donde no es posible comparar nuestros resultados con lo reportado por Revelo y Elías (2004); estos autores no diferenciaron sus análisis por sexo para el rango de talla mínimo (15 cm) y máximo (29 cm), como para la relación Lt - Pt (Pt = 0.0078 Lt 3.0893). En otras especies de Curimatidae, se reportan relaciones semejantes a las descritas para P. boulengeri, en Psectrogaster ciliata (Curimatidae), la relación Lt - Pt muestra una tendencia a un crecimiento isométrico (Rodríguez-Olarte et al., 2001), mientras que en Curimatella lepidura (de Alvarenga et al., 2006) las hembras son de mayor talla que los machos.
La época de desove es preferentemente entre los meses de octubre a febrero-marzo, antecedente que coincide con lo reportado por Revelo (2010) para sistemas lóticos, sin embargo, este periodo puede iniciarse antes o extenderse, dependiendo de las condiciones ambientales que modulan el proceso reproductivo en peces tropicales. Las especies tropicales limnéticas, por lo general tienen dos estrategias reproductivas, las migratorias, desovan una vez al año, actividad que generalmente se correlaciona con los periodos de aguas altas, mientras que las no migratorias, pueden desovar durante todo el año (Blanco-Parra & Bejarano-Rodríguez, 2006). En Psectrogaster ciliata y Curimatella lepidura (Curimatidae), la madurez gonadal se asocia temporalmente con el periodo de lluvias (Rodríguez-Olarte et al., 2001; de Alvarenga et al., 2006), semejante a lo reportado para P. boulengeri donde la época de desove comienza con el incremento de las precipitaciones y se extiende hasta que estas disminuyen.
En los futuros programas de seguimiento de los principales recursos ícticos, es conveniente incluir un análisis del índice gonadosomático (IGS) e histológico de las gónadas, que permitirá definir con mayor precisión la época de desove y dilucidar con exactitud las distintas etapas del ciclo reproductivo.
La talla de primera madurez sexual para hembras (17.9 cm) y machos (20.0 cm) difiere de los valores reportados por Revelo y Elías (2004); quienes analizaron peces de sistemas lóticos; estos autores indican que esta talla es de 16 cm para hembras y de 18.4 cm en machos. La diferencia podría deberse al tamaño de la muestra y al efecto del arte de pesca. Revelo y Elías (2004) analizaron un total de 76 ejemplares, capturados por red de enmalle y línea de mano (anzuelos), sin antecedente del tamaño de malla de la red, lo que no hace comparable los peces capturados con los de nuestro trabajo. Es importante destacar, que en estudios orientados a determinar la talla de primera madurez reproductiva, en los muestreos no debiera utilizarse un arte selectivo, de modo que todo el rango de talla sea cubierto.
El arte de captura que se usó en nuestro muestreo discrimina muy bien tallas inferiores a la TPMS, donde sólo el 1.7 % del total de las hembras (2 311) se encuentra bajo los 18 cm de Lt, mientras que en los machos (1 130), el 2.0 % se encuentra bajo los 20 cm de Lt.
P. boulengeri se expresa en algunos parámetros biológicos de manera diferente entre un ambiente léntico y uno lótico. En la proporción de sexo existe un predominio de machos en el ambiente lótico, mientras que las hembras son mayoritarias en el ambiente léntico. El rango de talla es diferente, se reportan para la especie entre 12 y 28 cm en un ambiente lótico, y de 10.5 a 36 cm en el ambiente léntico. La talla promedio de captura varía entre 10.1 y 17.3 cm en el ambiento lótico y de 24.1 a 24.3 cm en el léntico. La talla de primera madurez sexual en ambiente lóticos, es menor tanto para hembras como para machos, que la estimada para un ambiente léntico. Sin embargo, la época de desove es semejante en ambos ambientes.
¿Qué podría explicar estas diferencias? debemos tener presente que las especies de Curimatidae se caracterizan por un órgano epibranquial musculoso, en la parte media de la porción dorsal de los arcos branquiales, con una reducción o pérdida de dentición en la V placa faríngea y en los ceratobranquiales, y las mandíbulas en los adultos no poseen dientes (Vari, 1989b; Nelson, 2006). Esta caracterización morfológica las capacita para ser especies detritívoras (Froese & Pauly, 2013), que se alimentan específicamente de materia orgánica floculada, microdetritus, micro vegetación, algas filamentosas y microcrustáceos (Nomura & Taveira, 1979; Nomura & Hayashi, 1980; Carvalho, 1984; Vari, 1989b; Vari, 1989c; Fernández, Pouilly, & Reja, 2011). La disponibilidad de estos alimentos sería una de las variables que podría estar induciendo estas diferencias, donde las especies que habitan ambientes lóticos tienden a ser euritróficas, con un gran consumo de material alóctono, aprovechando todo lo disponible (Escalante, 1987), lo que las constituye en especies oportunistas.
En el sistema lótico donde se distribuye P. boulengeri la producción fitoplanctónica varía en diferentes estaciones entre 0.6 y 3.2 x 10⁵ cel/L (Prado et al., 2004), mientras que en el embalse Chongón ésta producción fluctúa entre los 36.3 y 81.8 x 10⁶ cel/L (Coello, Cajas, & Contreras, 2012). En el caso del zooplancton, en el ambiente lótico la densidad promedio es de 28.12 x 10² org/m3 (Prado et al., 2004), y en el embalse varía de 109.4 y 12 667.8 x 10² org/m3 (Coello et al., 2012). Estas condiciones, caracterizan al Embalse Chongón como un sistema de alta productividad en biomasa fitoplanctónica y zooplanctónica, con claros indicios de un proceso de eutrofización en desarrollo (Coello et al., 2012). Estos niveles productivos que se encuentran en el embalse, ofrecen a P. boulengeri una alta disponibilidad de alimento, que junto a la estabilidad del ambiente, donde el embalse experimenta una menor variabilidad térmica y un menor cambio en el nivel del agua, respecto de un río, podría permitir que P. boulengeri pueda existir en un ambiente más favorable, con menos fluctuaciones y de este modo ser favorecidos los procesos fisiológicos, que le permitirían a esta especie tener una postura más extendida en el año.
En el embalse Chongón existe una veda extractiva entre enero y febrero, que es coincidente con la máxima expresión reproductiva de esta especie, sin embargo, se hace necesario un análisis que incluya otras variables, como pueden ser: selectividad del arte de pesca, situación social de los pescadores, relación con las otras especies extraídas y un análisis económico de las capturas.

