

 Español (pdf)
 Articulo en XML
 Referencias del artículo

 Traducción automática
 Enviar articulo por email
 Citado por SciELO
 Similares en
SciELO
 uBio

 Permalink

La ecología de los ríos y riachuelos fue inicialmente resumida por Hynes (1970), quien los describe como ambientes donde predominan organismos del bentos, cuyos hábitos de vida se asocian al material del fondo y la composición de la comunidad depende de la estructura física del material del sustrato. En los ríos de montaña y zonas bajas el sustrato normalmente consiste de grandes rocas o cantos rodados (Leopold, Wolman, & Miller, 1992) sobre los que crece el perifiton como productor primario principal. El perifiton es una comunidad compleja que incluye varios grupos de algas, hongos, bacterias y protozoos o micro metazoos (Azim, Beveridge, van Dam, & Verdegem, 2005; Roldán-Pérez & RamírezRestrepo, 2010). Uno de los componentes más importantes son las diatomeas (Clase Bacillariophyceae, División Heterokontophyta) (Lee, 2008). Las diatomeas son reconocidas mundialmente como indicadoras de contaminación orgánica y eutrofización (Lobo et al., 2010), pues como grupo poseen una amplia distribución, permitiendo la comparación en diversos habitats. Son excelentes indicadores por su alta tasa reproductiva y presentan una respuesta rápida a los cambios de las condiciones de los cuerpos del agua (Schneck, Torgan, & Schwarzbold, 2007), y una pared de sílice resistente a los daños causados por la remoción a partir de un substrato rígido.
En el continente americano, las diatomeas han sido investigadas desde el punto de vista taxonómico (Metzeltin & Lange-Bertalot, 1998; Metzeltin & Lange-Bertalot,2007; Ponader & Potapova, 2007; Sala, Ramírez, & Plata, 2008; Vouilloud, Sala, Nunez, & Duque, 2010) y como bioindicadoras (Potapova & Charles, 2007; Bere & Tundisi, 2010; Bere & Tundisi,2011a; Bere & Tundisi,2011b; Tudesque, Grenuillet, Gevrey, Khazraie, & Brosse, 2012). En Costa Rica, se ha estudiado el uso de las diatomeas como indicadoras de diferentes condiciones ambientales (Silva-Benavides, 1996b; Michels, 1996, Michels, 1998a; Michels, 1998b; Michels, Umaña, & Raede, 2006; Nunn, 1999). Otros trabajos se han enfocado en las diatomeas desde un punto de vista ecológico y descriptivo de las especies (Phillips, 1987; Silva, 1994; SilvaBenavides, 1996a; Michels, 1996; Wydrzycka & Lange-Bertalot, 2001; Michels-Estrada, 2003; Silva-Benavides, Sili, & Torzillo, 2008). Los resultados han demostrado que la falta de conocimiento en especies de diatomeas tropicales, genera un problema al procurar aplicar los índices de biomonitoreo desarrollados en Europa (Michels, 1996; 1998a; 1998b).
El monitoreo biológico en ríos es importante debido a que los organismos presentan una respuesta integral a las fluctuaciones del ambiente acuático, y con ello brindan una mejor noción de la calidad del agua en las que fueron encontradas, que las variables físico químicas, que dan valores puntuales. Por lo tanto, si se desea mantener la salud y la diversidad de las comunidades biológicas, monitorear la comunidad acuática da información única y muy valiosa. Sin embargo, la escogencia de un grupo bioindicador debe satisfacer ciertos criterios, como que cada taxón posea límites ecológicos definidos y que el taxón pueda ser identificado sin equivocación (Cox, 1991). Por este motivo, el objetivo del presente trabajo consistió en evaluar la tolerancia a los factores físico-químicos del agua de diez especies de diatomeas (Bacillariophyceae) en el Río Sarapiquí, Costa Rica. Con esto se espera contribuir al conocimiento de la ecología de las diatomeas y al biomonitoreo de un río de un país tropical, como Costa Rica.
Materiales y métodos
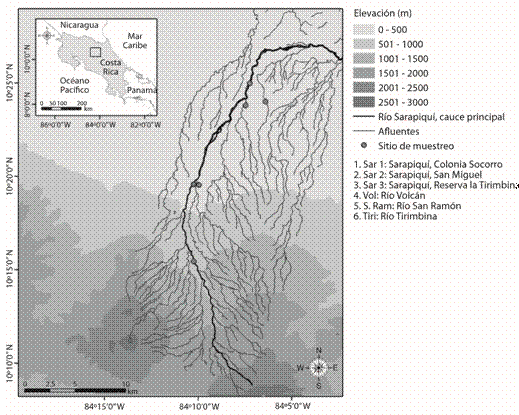
Sitios de muestreo: El Río Sarapiquí nace en el costado oeste de las faldas del volcán Barva, Costa Rica a una altura aproximada de 1 650 m y corre dirección Norte-Noreste, hasta desembocar en el Río San Juan a 17 m de elevación. Los sitios muestreados se encuentran desde los 180 m a 700 m de elevación, lo que equivale a la cuenca media-baja (Apéndice 1). La cuenca ha sido explotada con fines agrícolas, especialmente en la margen izquierda de la parte media a baja del Río Sarapiquí, lo que ha degradado los ecosistemas naturales.
Se localizaron seis estaciones de muestreo: tres en el cauce del Río Sarapiquí: el sitio Colonia del Socorro (Sar. 1) se localizó a 700 m de elevación (10°15'27" N - 84°10'13" W); el segundo sitio San Miguel (Sar. 2) a 380 m de elevación (10°19'38" N - 84°10'14"
W) y el tercero en la entrada a la Reserva La Tirimbina en la Virgen de Sarapiquí (Sar. 3) a 162 m de elevación (10°24'56" N - 84°7'19" W). Los otros tres sitios fueron ubicados en afluentes los cuales corresponden al Río Volcán (Vol) a 380 m de elevación (10°19'31" N - 84°10'4" W); Río San Ramón (S. Ram) a 200 m de elevación (10°23'47" N - 84°7'28" W) y Río Tirimbina (Tiri) a 180 m de elevación (10°23'60" N - 84°6'23" W).
El área de estudio presenta un promedio de precipitación anual de 4 000 a 5 000 mm, con un periodo de lluvias que varía de 250 a 300 días. La temperatura oscila anualmente entre los 14-26 °C. El promedio anual de brillo solar es de 5 a < 3 h al día y presenta una evaporación anual que oscila entre los 1 000 mm a 1 200 mm anuales (IMN, 2009). Los sitios se encuentran en las zonas de vida de Pluvial premontano (Sar.1), pasando por Muy húmedo tropical, transición a premontano (Sar. 2 y Vol) a Muy húmedo tropical (Sar. 3, Tiri y S. Ram).
El sustrato de los sitios dentro del cauce principal del Río Sarapiquí fue principalmente pedregoso arenoso, con la presencia de grandes cantos rodados. El sitio Volcán presentó características similares al sitio San Miguel, con un sustrato pedregoso arenoso y la presencia de grandes rocas. Además, todos estos sitios carecieron de una extensa cobertura boscosa, ya que el cauce de los ríos es ancho, característica que evita que la vegetación se establezca en sus orillas. El sustrato en los sitios de los ríos San Ramón y Tirimbina fue principalmente de sedimentos finos con la presencia de pequeñas rocas, además presentó una vasta cobertura boscosa en su zona riparia.
Recolecta y preparación de las muestras: Las recolectas se realizaron los días 1 y 2 de octubre 2010; 8 y 9 de abril 2011; 28 y 29 de julio 2011; 11y 12 de noviembre 2011; 1 y 2 de junio 2012. Las muestras se obtuvieron mediante el raspado con un cepillo dental de la superficie de las rocas (Michels-Estrada, 2003), las cuales se extrajeron en un transecto perpendicular al río, desde la orilla hasta la zona más profunda. Se conservaron con formalina al 10 % para su transporte al laboratorio del CIMAR, Universidad de Costa Rica.
Para la limpieza de las diatomeas se realizó una digestión con ácido clorhídrico concentrado y con peróxido de hidrógeno (CéspedesVargas, 2014). Cada muestra fue fijada a un portaobjetos con resina Permount(r) y cubreobjetos. Las diatomeas fueron identificadas taxonómicamente a nivel de especie y cuantificadas con un microscopio de luz Olympus modelo IX-51, con lente de aceite de inmersión a un aumento de 1 000 x. Con el propósito de corroborar la identificación realizada en el microscopio de luz de las 10 especies más abundantes, se procedió a la observación con el microscopio electrónico de barrido Zeiss modelo DSM 942. Previamente, cada muestra fue deshidratada a temperatura ambiente sobre bases metálicas y posteriormente cubiertas con una capa de oro (Hasle & Fryxell, 1970).
Variables fisico-químicas del agua: El oxígeno disuelto y la temperatura fueron medidos con un oxímetro YSI550A. La conductividad fue registrada con un conductímetro Lamotte Chemical. El total de sedimentos en suspensión (TSS) fueron calculados por el método gravimétrico (APHA, 2005). La turbidez del agua en los sitios fue medida con un equipo 2020 marca Lamotte. El pH se midió con tiras indicadoras de pH, Indicador Universal marca Merck. La alcalinidad se calculó con un equipo de alcalinidad marca Hach.
Con el propósito de determinar la frecuencia relativa de las especies se realizó un conteo de 400 frústulas por cada lámina (Lowe & LaLiberté, 2006). Para el análisis se consideraron las 10 especies más frecuentes cuantificadas e identificadas en el microscopio de luz y corroboradas al microscopio electrónico. Con estos datos se cuantificaron las abundancias relativas de cada especie.
Para definir las variables físico-químicas del agua que influyen en la abundancia de las especies se realizó un Análisis de Correspondencia Canónica (CCA) (Legendre & Legendre, 1998) con el programa estadístico PAST3 (Hammer, Harper & Ryan, 2001). Los valores de estas variables fueron estandarizadas para su posterior análisis.
Se calcularon los valores óptimos y la tolerancia de las especies para las variables ambientales por medio del método del promedio ponderado. Se ponderó el valor de cada variable ambiental con base en la abundancia relativa de la especie en los sitios muestreados (Leps & Smilauer, 2003).
Resultados
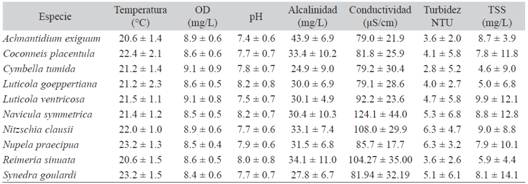
Las especies para las cuales fue posible realizar el análisis de asociación con los factores físicoquímicos estudiados fueron: Achnanthidium exiguum (Grunow) Czarnecki, Coconneis placentula Ehrenberg, Cymbella tumida (Brébisson) van Heurck, Luticola goeppertiana (Bleisch) D. G. Mann, Luticola ventricosa (Kützing) D. G. Mann, Navicula symmetrica Patrick, Nitzchia clausii Hantzsch, Nupela praecipua (E. Reichardt) E. Reichardt, Reimeria sinuata (Gregory) Kociolek & Stoermer y Synedra goulardi Brébisson ex Cleve & Grunow. Los valores promedio y desviación estándar de los parámetros físico-químicos se presentan en el Cuadro 1.
Cuadro 1 Valores promedio y desviación estándar de los parámetros físico químicos de los sitios estudiadosen la cuenca del Río Sarapiquí, Costa Rica. Table 1Mean values and their standard deviation of physic chemical parameters at the sampled sitesin the drainage of River Sarapiquí, Costa Rica
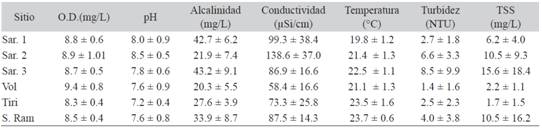
Nombres de los sitios según se explica en materiales y métodos.
Por medio del Análisis de Correspondencia Canónica (CCA) se obtuvo la figura 1. Los ejes 1 y 2 explicaron en conjunto un 58.18 % de la abundancia de las 10 especies. El primer eje de ordenación se relacionó principalmente con la temperatura, el oxígeno disuelto y la turbidez, separando las muestras de los ríos S. Ram y Tiri, de las muestras de Sar.1. Las muestras provenientes de los sitios Vol, Sar.2 y Sar.3 fueron agrupadas en la parte media del gráfico. Las especies A. exiguum, R. sinuata,L. ventricosa y C. tumida, se relacionaron con aguas de baja temperatura, bien oxigenadas y baja turbidez. El segundo grupo de especies N. praecipua, S. goulardi, C. placentula, L. goeppertiana, N. clausii y N. symmetrica, a la izquierda del gráfico, se relacionaron principalmente con aguas cálidas poco oxigenadas y alta turbidez. Para la especie N. symmetrica se observó una fuerte relación positiva con la turbidez.
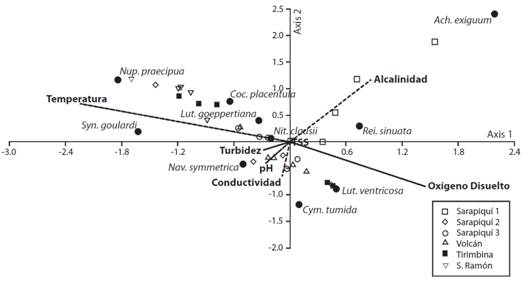
Fig. 1 Análisis de Correspondencia Canónica que muestra la distribución de las especies por sitio y su relación con los parámetros físico químicos. Ambos ejes explican un 58 % de la variancia total. Río Sarapiquí, Costa Rica.
El segundo eje se relacionó principalmente con la alcalinidad, la conductividad, el pH y el total de sólidos en suspensión. Las especies A. exiguum y R. sinuata, se relacionaron con aguas alcalinas, baja conductividad y bajos niveles de pH. Las especies L. goeppertiana, N. clausii y C. placentula presentaron una relación positiva con la cantidad de TSS. Las especies N. symmetrica, C. tumida y L. ventricosa presentaron una relación positiva con la conductividad y el pH de las aguas.
Los resultados del análisis de correspondencia canónica permitieron entender las diferencias entre los sitios con base en sus características físico-químicas, su ubicación y su composición florística. El sitio Sar.1 se ubicó en la parte más alta de la cuenca media, con aguas limpias y bien oxigenadas, donde dominaron las especies A. exiguum y R. sinuata. Los sitios Sar. 2, Sar. 3 y Vol se ubicaron en la zona intermedia del gráfico del CCA (Fig. 1), similares en términos de cobertura boscosa y tipo de sustrato, representados por las especies N. clausii y N. symetrica . Los sitios Tiri y S. Ram, aunque presentaron una amplia cobertura boscosa riparia que impide la penetración de los rayos solares la mayor parte del día, fueron los sitios de mayor temperatura, donde prevalecieron las especies N. praecipua, C. placentula, S. goulardi y L. goeppertiana.
Los resultados obtenidos para los óptimos y la tolerancia de las especies relacionados con las diferentes variables fisicoquímicas se resumen en el Cuadro 2. Respecto al oxígeno disuelto, las especies presentaron niveles óptimos relativamente altos, donde la especie C. tumida presentó una mayor tolerancia al cambio de oxígeno disuelto. C. tumida fue la especie que presentó una mayor tolerancia al cambio de oxígeno disuelto. Las especies presentaron tolerancias similares con un nivel óptimo de pH mayor a 7. La especie L. goeppertiana fue la que presentó una mayor tolerancia a los cambios en el pH. Con respecto a la alcalinidad, la mayoría de las especies mostraron niveles óptimos cercanos a los 30 mg/L, A. exiguum presentó el valor óptimo más alto, mientras que las especies C. placentula, N. symmetrica y R. sinuata presentaron una amplia tolerancia a los cambios de alcalinidad.
Cuadro 2 Valores en la cuenca media del Río Sarapiquí, Costa Rica. Table 2. Optimal values and tolerance (±) for the ten diatom species included in the study at the middle reaches of the drainage basin of River Sarapiquí, Costa Rica
Los valores óptimos de conductividad fueron mayores en N. symmetrica, N. clausii y R. sinuata. Además N. symmetrica presentó una alta tolerancia a cambios de este parámetro. Los valores óptimos de temperatura para las diez especies se encontraron superiores a 20° C y C. placentula y L. goeppertiana fueron las especies que presentaron ámbitos más amplios de tolerancia.
Las especies N. clausii y N. praecipua presentaron los dos valores óptimos más altos de tubidez, seguidos por N. symmetrica y S. goulardi. Estas últimas fueron las que mostraron una mayor tolerancia a los cambios en la turbidez. Otras especies como C. placentula, C. tumida y L. ventricosa también presentaron niveles altos de tolerancia a la turbidez.
Las especies L. ventricosa y N. clausi obtuvieron los valores óptimos más altos respecto al TSS, seguidas por N. symmetrica y A. exiguum, respectivamente. Sin embargo, fue la especie S. goulardi la que mostró la mayor tolerancia a la variación de los sólidos en suspensión. Otras especies como L. ventricosa y N. symmetrica también presentaron ámbitos de tolerancia amplios.
Discusión
Según los resultados obtenidos en esta investigación, A. exiguum prefiere aguas oxigenadas y alcalinas, datos que concuerdan con los resultados obtenidos por Nunn (1999) y Morales, et al. (2011). Además presentó un valor óptimo alto respecto al TSS dato que concuerda con Silva-Benavides (1996b), quien la clasificó como una especie tolerante a una alta contaminación orgánica. La especie C. placentula se relacionó principalmente con aguas cálidas, poco oxigenadas y alta turbidez, que la clasifica como una especie altamente tolerante a la contaminación. La especie se ha reportado en ambientes con una fuerte contaminación con materia orgánica y clasificada como una especie eutrófica (Silva-Benavides, 1996a). La especie presenta una respuesta negativa a la exposición lumínica (Goldsborough, 1994; Michels-Estrada, 2003), que se demostró en su mayor abundancia en sitios con una alta cobertura vegetal en el presente trabajo.
Cymbella tumida, la cual es considerada por Krammer (2002) como una especie de distribución exclusivamente tropical, se relacionó principalmente con aguas bien oxigenadas y baja temperatura en el presente trabajo, observaciones que concuerdan con Nunn (1999) y Silva-Benavides (1996a). Otros investigadores han notado que la especie es intolerante a la contaminación (Silva-Benavides, 1996a; Michel, 1998a), presenta una predilección por aguas oligotróficas a mesotróficas con una cantidad media de electrolitos (Krammer, 2002), lo que podría explicar su relación positiva con la conductividad y el pH principalmente en los sitios Sar. 1 y Vol.
La especie L. goeppertiana mostró un amplio ámbito de tolerancia a cambios en la temperatura y pH, presentándose principalmente en los sitios con aguas cálidas y alta turbidez, lo cual suponemos le brinda sus cualidades como una especie tolerante a la contaminación. Se encuentra relacionada con los sitios que presentaron una menor cobertura boscosa (Sar. 2, Vol), lo que concuerda con los datos obtenidos con Michels-Estrada (2003), quien señala que es una especie común en aguas lóticas con poca sombra y con una alta concentración de partículas en suspensión. Esta especie ha sido catalogada como buena indicadora de aguas fuertemente contaminadas con desechos orgánicos (Silva-Benavides, 1996b), relacionados a sitios con alto impacto antropogénico (Schneck et al., 2007).
La especie del mismo género L. ventricosa presenta una menor tolerancia a la contaminación que L. goeppertiana (Krammer & LangeBertalot, 1986). La especie es abundante en los sitios con aguas de baja temperatura, turbidez y bien oxigenadas como Sar. 1, Sar. 2 y Vol. Silva-Benavides (1996b) la cataloga como sensible a la contaminación, sin embargo, en el presente trabajo se observó que la especie presenta una tolerancia alta a los cambios en la turbidez y el TSS.
La distribución de N. symmetrica fue mayor en los sitios que presentaron aguas cálidas poco oxigenadas y con alta turbidez como Sar. 2; mostró además una predilección por ambientes con alta conductividad y pH. Los resultados obtenidos en esta investigación concuerdan en parte con los resultados de Michels et al. (2006), donde la especie se relaciona positivamente con la turbidez y el pH, pero negativamente con respecto a la sombra.
La especie N. clausii presentó un comportamiento similar a L. goeppertiana. Se reporta en aguas salobres, cerca de las costas y estuarios de ríos que presentan altas concentraciones de electrolitos (Krammer & Lange-Bertalot, 1988). Michels et al. (2006), reportaron una abundancia significativa de individuos de esta especie en ambientes saturados de sedimentos y alta demanda bioquímica de oxígeno (DBO). Estas observaciones concuerdan con nuestros resultados donde prevalece una relación positiva entre el número de individuos y el aumento de TSS. Silva-Benavides (1996a), la cataloga como una especie frecuente en aguas oxigenadas y contaminadas con materia orgánica. Los altos valores óptimos que presenta para la conductividad y la turbidez, así como el amplio ámbito de tolerancia a cambios en el TSS, le brindan una mayor capacidad de adaptación a la contaminación de las aguas.
La especie de distribución tropical N. praecipua, (Michels, 1998b; Nunn, 1999), se relaciona de acuerdo con nuestro estudio con aguas cálidas, poco oxigenadas y alta turbidez; pero no es tolerante a la alcalinidad del agua. Su alta presencia en sitios sombreados concuerda con Michels et al. (2006), quien la describe como una especie que prefiere sitios con baja luminosidad. Su alta abundancia en los sitios cuya agua presentó alta turbidez se relaciona con las observaciones de Schneck et al. (2007), quienes la clasifican como una especie indicadora de aguas contaminadas. Sin embargo, sugieren que a pesar de su alta tolerancia a la contaminación, puede aparecer también en aguas limpias. Relacionado con este último concepto, Wydrzycka y Lange-Bertalot (2001) y Michels-Estrada (2003) consideran esta especie como indicadora de aguas limpias y bien oxigenadas. Por tratarse de una especie de distribución tropical se deberían aunar esfuerzos para recopilar mayor información sobre la ecología de esta especie, la cual fue muy frecuente en casi todas las muestras del presente estudio y podría ser una excelente herramienta en la bioindicación de la calidad en ríos limpios en el bosque lluvioso tropical.
En el presente trabajo R. sinuata se localizó en el grupo de especies que presentaron una predilección por aguas de baja temperatura, bien oxigenadas y baja turbidez. De acuerdo con Levkov y Ector (2010) es una de las diatomeas más frecuentes en ecosistemas de agua dulce, tolerante a altos niveles de eutrofización y alcalinos (Veselá & Johansen 2009; O'Driscoll et al., 2012). Inicialmente se clasificó como una especie de zonas altas (Krammer & Lange-Bertalot, 1986), sin embargo, se ha encontrado también en ambientes de poca elevación (Morales et al., 2007). Por su amplia distribución, coincidimos con Silva-Benavides (1996b) de catalogarla como una mala indicadora de calidad de agua.
S. goulardi se presume esta confinada a las zonas tropicales de Norte y Sur América, en Centroamérica y el trópico en África (Williams, 1986; Silva-Benavides, 1996b; Michels, 1998b). Esta especie presentó preferencias ecológicas similares a N. praecipua: aguas cálidas y poco oxigenadas. Estos resultados coinciden con los obtenidos por Krammer y Lange-Bertalot (1991), Nunn (1999) y Silva-Benavides et al. (2008), quienes reportan esta especie común en aguas cálidas no contaminadas. De acuerdo a nuestras observaciones podemos afirmar que S. goulardi prefiere los ambientes de aguas cálidas. La información ecológica de esta especie es escasa en la literatura, por lo tanto, al igual que con N. praecipua, se debería investigar más sobre su ecología.
Se pueden distinguir en la cuenca media del R. Sarapiquí tres sectores de acuerdo a la altitud, donde cada sector se caracteriza por poseer propiedades únicas en lo que se refiere al tipo de sustrato, cobertura riparia vegetal y diferentes parámetros físico-químicos, características que propician diferencias en la composición de especies de diatomeas entre los sectores. Las especies A. exiguum, R. sinuata,L. ventricosa y C. tumida, se relacionan con aguas de baja temperatura, bien oxigenadas y baja turbidez. Las especies N. praecipua, S. goulardi, C. placentula, L. goeppertiana, N. clausii y N. symmetrica se relacionan principalmente con aguas cálidas poco oxigenadas y alta turbidez. Además, las especies A. exiguum, R. sinuata, se relacionan con aguas de alta alcalinidad, baja conductividad y niveles de pH cercanos a 7. Las especies L. goeppertiana, N. clausii y C. placentula presentan una relación positiva con la cantidad de TSS. Las especies N. symmetrica, C. tumida y L. ventricosa presentan una relación positiva con la conductividad y el pH de las aguas. Las especies de diatomeas estudiadas ofrecen indicios importantes sobre la calidad del agua del río, lo que constituye una herramienta importante para la investigación y monitoreo de un ecosistema tropical. Sin embargo, debido a las diversas interpretaciones realizadas por diferentes autores sobre una misma especie y en algunos casos a dificultades de tipo taxonómico, se requiere de un análisis individualizado para cada región tal y como se ha hecho en el presente estudio.