


 Español (pdf)
 Articulo en XML
 Referencias del artículo

 Traducción automática
 Enviar articulo por email
 Citado por SciELO
 Similares en
SciELO
 uBio

 Permalink

Rhizoprionodon lalandii (Müller & Henle, 1839) se distribuye en la costa Atlántico occidental, desde Panamá hasta el sureste de Brasil. En Venezuela es abundante en las islas de Margarita, Coche y Cubagua, donde se puede encontrar a profundidades entre 3 y 70 m. En esta región, es un recurso comúnmente aprovechado por los pescadores artesanales (Cervigón & Alcalá, 1999) y uno de los principales componentes de platos típicos tradicionales como empanadas y arepas de cazón (Suárez, 2010).
La especie es catalogada en la lista roja de especies amenazadas de la IUCN con "Datos Deficientes", debido al desconocimiento de la tendencia poblacional en la mayoría de los países a lo largo de su distribución geográfica, por lo que resulta prioritario generar información sobre su biología para solventar los vacíos de información y facilitar el análisis de su dinámica poblacional (Rosa, Gadig, Motta, & Namora, 2004).
Existen diversos estudios sobre la especie en Brasil que incluyen aspectos sobre su biología reproductiva (Ferreira, 1988; Lessa. 1988; Menni & Lessa, 1998; Motta, Namora, Gadig, & Braga, 2007; Andrade, Silva-Junior. & Vianna, 2008; Macedo, Sousa, & Batista, 2012; Martínez, Álvarez, & Acero, 2012), genética (Mendonca, Oliveira, Gadig, & Foresti, 2009; 2013), proporción sexual, frecuencia de longitudes, relación longitud-peso (Motta, Gadig, Namora, & Braga, 2005), edad y crecimiento (Lessa, Santana, & Almeida, 2009) y aspectos alimentarios (Lima, Daros, Maz-zoleni, & Hostim-Silva, 2000; Bornatowsky, Heithaus, Albilhoa, & Correa, 2012). En contraste, en Venezuela a pesar de que hace más de 50 años que se reconocen sus capturas en las pesquerías (Méndez-Arocha 1963; Ginés et al.1972), la información disponible sólo abarca una descripción general de la especie realizada por Cervigón & Alcalá (1999) y la relación longitud-peso para ejemplares capturados en Isla Margarita (Tagliafico, Rago, & Rangel, 2014). Por esto, el objetivo del presente estudio es generar información sobre aspectos reproductivos y alimentarios de Rhizoprionodon lalandii, para contribuir con la toma de decisiones para el manejo sostenible de la pesquería.
Materiales y Métodos
Área de estudio y flota pesquera: Durante el período comprendido entre enero 2006 y diciembre 2007, se realizaron muestreos una vez por semana en dos puertos de desembarque (Juan Griego y La Pared) y dos mercados de venta de productos pesqueros (Los Cocos y Conejeros) ubicados en la Isla de Margarita, estado Nueva Esparta, región nororien-tal de Venezuela (10°51'50'' - 11°11'06" N, 63°46'40'' - 64°24'32'' W). Los individuos se identificaron en el campo a través del uso de las claves taxonómicas de Cervigón y Alcalá (1999) y Compagno (1984). Ejemplares de cada sexo fueron preservados y catalogados en la colección del Laboratorio de Ictiología de la Universidad de Oriente, Núcleo de Nueva Esparta.
Los ejemplares analizados fueron capturados por pesquerías artesanales multiespecíficas que utilizan embarcaciones de madera con motores fuera de borda dos tiempos, que usan gasolina como combustible. Para la pesca, emplearon redes de enmalle de fondo hechas principalmente de monofilamento plástico transparente de poliamida con un grosor de nylon que oscila entre 0.45 y 0.5 mm, una longitud total variable entre 150 y 1 000 m (en función de las piezas que decida juntar cada pescador) y altura de 3 a 4 m. Las redes fueron colocadas de tarde entre 16:00 y 18:00, y recogidas a la mañana siguiente entre 5:00 y 8:00. Detalles de los artes de pesca y embarcaciones utilizadas en la pesquería artesanal de la región han sido ampliamente descritos por Méndez-Arocha (1963), Ginés et al. (1972), Iriarte (1997), Novoa, Mendoza, Marcano & Cárdenas (1998), Suárez & Bethencourt (2002), González, Eslava & Guevara (2006).
Estructura de longitudes y aspectos reproductivos: utilizando una regla de campo (1 mm de precisión), se determinó la longitud total (Lt) de cada ejemplar, distancia comprendida entre la punta del hocico y el extremo posterior de la aleta caudal, de acuerdo con las recomendaciones de Cervigón & Alcalá (1999). Los sexos se diferenciaron por la presencia de mixopterigios en machos y su ausencia en las hembras. Se agruparon machos y hembras por separado y se calcularon las frecuencias porcentuales por intervalo de longitud. Para evaluar diferencias en la proporción sexual de machos y hembras, se aplicó la prueba de chi-cuadrado (x2), considerando la corrección de Yates (Zar, 1996): x2 i = (1% - f?¡| - 1)2 / N ; donde, f^. es la frecuencia de machos en el mes i; es frecuencia de hembras en el mes i y N i es el número total de individuos en el mes i.
Para la verificación de la madurez en los machos se revisaron manualmente los mixop-terigios o claspers; en caso de estar fuertemente calcificados, con rotación completa y fácil extensión del extremo distal fueron considerados maduros, de lo contrario se catalogaron como inmaduros. Adicionalmente, se tomó la longitud de uno de los mixopterigios con la finalidad de identificar relaciones entre ésta y la longitud total de individuos maduros e inmaduros. Las hembras fueron consideradas maduras cuando presentaron óvulos bien definidos en los ovarios, o grávidas cuando se observaron embriones bien definidos en los úteros (Con-rath, 2004). Las hembras en condiciones de post-parto fueron reconocidas por presentar la cavidad celómica flácida y una vez eviscera-das, por presentar úteros grandes bien definidos, flácidos y vascularizados. La fecundidad fue determinada contando el número total de embriones por hembra grávida. También se determinaron los sexos de los embriones para calcular la proporción sexual. Se tomaron las longitudes totales de embriones para indagar sobre el período de gestación y longitud cercana al nacimiento (Conrath, 2004).
Para identificar posibles épocas de apareamiento o de segregación sexual, se comparó la frecuencia porcentual de individuos maduros en el tiempo. Finalmente, los picos de alumbramiento se obtuvieron mediante el cálculo de frecuencias mensuales de hembras grávidas y la ubicación de las mayores longitudes de embriones por mes.
Aspectos alimentarios: Durante 2007, se analizaron 108 estómagos para estudiar los aspectos alimentarios de la especie. El contenido estomacal fue examinado, separando e identificando cada ítem hasta el menor nivel taxonómico posible (Cervigón, 1991; Cervigón, 1993; Cervigón, 1994; Cervigón, 1996) y se determinó el peso húmedo de cada ítem con una balanza de 0.01 g de precisión.
La dieta se caracterizó mediante el cálculo de los índices de frecuencia de ocurrencia (% O), frecuencia numérica (% N), frecuencia gravimétrica (% P), índice de importancia relativa (IIR) y el índice de importancia relativa porcentual (% IIR), según lo indicado por Cortés (1997). Con el fin de determinar la importancia de presas y la estrategia alimentaria de la especie, se empleó la modificación del método gráfico de Costello (1990) propuesto por Cortés (1997).
Se estimó el nivel trófico utilizando la fórmula NTk = 1 + Pj x NTj (Cortés, 1999); donde NTk es el nivel trófico de la especie k, j es el número de presas (total = n), Pj es la proporción de la presa j en la dieta de la especie k, y NT es el nivel trófico de la presa j. Los niveles tróficos de las presas fueron definidos según los datos aportados por Cortés (1999).
Resultados
Fueron analizados un total de 656 individuos con una longitud media de captura de 56 ± 9 cm de Lt (promedio ± desviación estándar). La distribución de frecuencia de longitudes indica que la especie es capturada en todos los intervalos de longitud a partir de 26 cm, y que las hembras pueden alcanzar longitudes superiores que los machos. Estos últimos, son capturados de manera más frecuente entre 54 y 56 cm, mientras que las hembras entre 68 y 70 cm (Fig. 1). Diversos aspectos biológicos y reproductivos son resumidos en el Cuadro 1.
Aspectos reproductivos: Ambos sexos estuvieron presentes en las capturas durante todo el periodo de estudio. Se registró un total de 357 hembras y 299 machos, los cuales mostraron diferencias significativas a favor de las hembras en la proporción sexual global (x2 = (1, 656) = 5.3; P = 0.02). Sin embargo, no se observaron diferencias en el 2006 (x2 = (1, 295)=0.49; P = 0.48), pero sí durante el año 2007 (x2 = (1, 361) = 6.4; P = 0.01).
Se observaron hembras y machos maduros durante prácticamente todo el estudio, excepto en marzo 2006 cuando únicamente se capturaron individuos inmaduros de ambos sexos. En general, se registró un mayor número de hembras maduras, y las inmaduras solo fueron más abundantes en seis de los 24 meses de estudio. En contraste, se encontró un mayor número de machos inmaduros que maduros en 15 de los 24 meses de muestreo; y durante mayo 2006, marzo 2007 y julio-agosto 2007 sólo se capturaron machos inmaduros.
Los resultados no permiten identificar un período o patrón fijo de alumbramiento para las hembras durante el periodo de estudio; principalmente, porque se observaron hembras grávidas dispersas en 16 de los 24 meses de estudio, y por la gran variedad de longitudes observadas en los embriones registrados por mes (e.g. se encontraron embriones menores a 5 cm y cercanos a los 25 cm en un mismo mes). No obstante, entre noviembre y febrero de cada año se registraron las mayores frecuencias de hembras grávidas y embriones con longitudes por encima de 20 cm (Fig. 2). Entre las hembras maduras capturadas un 22 % se encontraba grávida.
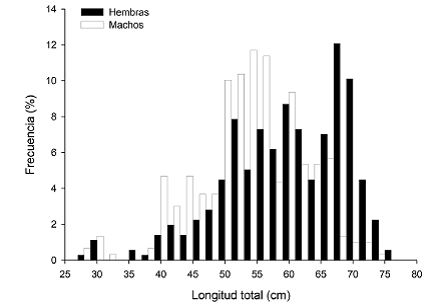
Fig. 1 Frecuencia de longitudes para hembras y machos de Rhizoprionodon lalandii capturados por la pesquería artesanal de Isla de Margarita, Venezuela
Cuadro 1: Aspectos biológicos de Rhizoprionodon lalandii capturados en la pesquería artesanal de Isla de Margarita, Venezuela
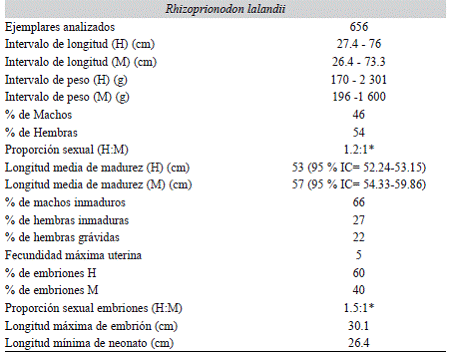
*diferencias significativas, IC= intervalo de confianza, H=hembras, M=machos.
Se analizó un total de 137 embriones, aunque sólo se pudo determinar el sexo de 81 de ellos (60 % H, 40 % M), los cuales mostraron diferencias significativa en la proporción sexual (x2 = (1, 81) =4; P = 0.05). El intervalo de longitud total de embriones se ubicó entre 2.1 y 30.1 cm, con un promedio de 17 ± 11 cm. El número de embriones por camada varió de uno a cinco, siendo cuatro el número más frecuente, con hembras presentando dos embriones en cada útero. En los casos en que se observó un solo embrión, estos individuos alcanzaban longitudes cercanas al nacimiento (30.1 cm). Los embriones con mayores longitudes fueron observados a principios y finales de ambos años (Fig. 2).
Por encima de 4.5 cm de longitud de mixopterigios sólo se registraron machos maduros, mientras que por debajo de 2 cm todos los machos se encontraban sexualmente inmaduros. Al relacionar esta variable con la longitud total, se encontró que los machos comienzan a madurar a partir de 50 cm (Fig. 3). Sin embargo, al considerar las proporciones de maduros por intervalos de longitud total, la madurez de los machos ocurre entre 55 cm y 60 cm (L50 = 57 cm); en cambio, las hembras maduran a longitudes ligeramente inferiores entre los 50 cm y 55 cm (L50 = 53 cm) (Fig. 3). El 45 % del total de ejemplares analizados en este estudio estuvo representado por individuos que no habían alcanzado la longitud media de madurez sexual.
Aspectos alimentarios: Se analizaron los contenidos estomacales de 108 ejemplares de R. lalandii; entre los cuales el 47 % (n = 51) se encontraron vacíos, mientras el 53 % (n = 57) restante presentó algún tipo de alimento. R. lalandii demostró ser un depredador principalmente piscívoro, con un régimen alimentario bastante homogéneo a lo largo del año, ya que a partir de los 30 ejemplares analizados dejaron de aparecer nuevos ítems en la dieta (Fig. 4).
Entre los ítems alimentarios consumidos por la especie, se identificaron un total de ocho órdenes taxonómicos (siete de peces óseos y uno de moluscos), entre los que destacan: Clu-peiformes (familias Clupeidae y Engraulidae), Pleuronectiformes, Anguilliformes, Tetraodon-tiformes, Perciformes (familias Scaridae y Scombridae), Aulopiformes (familia Synodon-tidae) y Teuthida (calamares). Adicionalmente se encontraron numerosos restos de peces óseos no identificables (Cuadro 2).
En general, se pueden identificar tres grupos de presas principales: a) restos de peces óseos no identificables (% IIR = 88), b) peces Clupeiformes y Perciformes, con una suma-toria de porcentajes de IIR superior a 10% y c) presas ocasionales cuyos % de IIR fueron bajos (< 1%) (Cuadro 2). La figura 5 muestra los restos de peces como categoría dominante en la dieta, con cierta especialización hacia Clupeiformes y Perciformes, mientras que el resto de los items de la dieta podrían ser considerados raros. El nivel trófico (Nt) estimado de R. lalandii fue 3.7.
Discusión
Los ejemplares de mayor longitud (76 cm) observados en las capturas de isla Margarita, son de inferior tamaño a los reportes previos en pesquerías de Brasil (77.5 y 80 cm para hembras y machos respectivamente) (Motta et al., 2007), así como también a la longitud asin-tótica calculada para la especie (Loo = 78.1 cm) (Lessa et al., 2009).
Las longitudes medias de madurez sexual calculadas (H:53 y M:57 cm) se encuentran en el intervalo de longitudes de madurez señaladas por diferentes autores para la especie (entre 49-66 cm) (Compagno, 1984, Lessa 1988, Motta et al., 2007, Lessa et al., 2009).
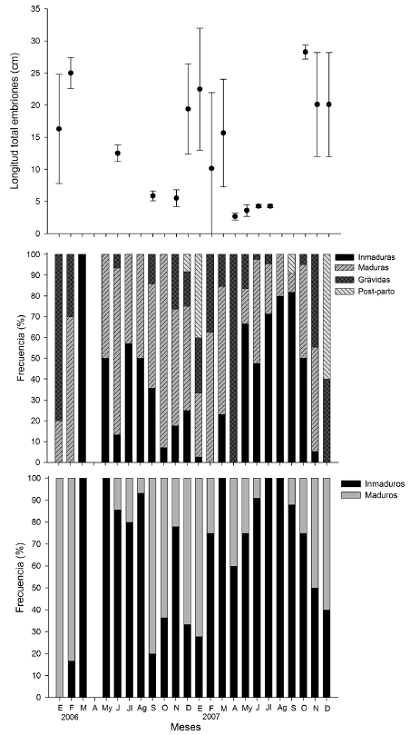
Fig. 2 De arriba hacia abajo: longitud promedio e intervalo de longitudes de embriones; frecuencia mensual de las fases de madurez sexual de hembras y machos de Rhizoprionodon lalandii capturados en la Isla de Margarita
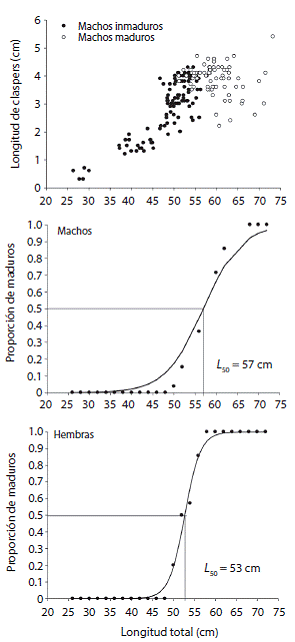
Fig. 3 De arriba hacia abajo: relación entre la longitud de claspers o mixopterigios y la longitud total de machos maduros e inmaduros; función logística de la longitud media de madurez sexual de machos y hembras de Rhizoprionodon lalandii capturados por la pesquería artesanal de Isla de Margarita, Venezuela
No obstante, las diferencias encontradas entre diversos estudios de elasmobranquios realizados, considerando zonas templadas y tropicales, han permitido inferir que las condiciones oceanografías particulares de las áreas de estudio pueden causar variaciones en los parametros biológicos de una misma especie (Parsons, 1993; Lombardi-Carlson, Cortés, Parson, & Manire, 2003; Menni & Lessa, 1998; Macedo et al., 2012). Adicionalmente, se ha sugerido la presencia de al menos dos poblaciones de R. lalandii en las costas del Atlántico occidental (Motta et al., 2007; Macedo et al., 2012).
Para el nororiente venezolano no parece existir un patrón reproductivo que se repita entre los dos años de estudio, por lo que puede afirmarse que la especie se reproduce durante todo el año, sustentado por la presencia de hembras grávidas en diversos meses, así como la gran variabilidad de longitudes de embriones observados entre diferentes hembras capturadas en el mismo mes. Peres & Vooren (1991) afirman que, para la mayoría de los elasmo-branquios vivíparos, el ciclo reproductivo de la hembra está constituido por cinco eventos principales: la maduración de los ovocitos, cópula con almacenamiento de esperma, ovulación con fecundación de óvulos, gestación y parto. En el presente estudio, al igual que en el sur de Brasil, la observación de hembras grávidas que presentan al mismo tiempo folículos vitelogénicos en desarrollo indica que durante el periodo de gestación pueden ocurrir la ovulación y la gestación de manera simultánea (Motta et al., 2007). Este hecho implicaría que las hembras tienen la capacidad de volver a concebir una nueva camada en un periodo de tiempo relativamente corto después del parto.
Las mayores frecuencias de individuos inmaduros para ambos sexos, identificadas entre mayo y septiembre de ambos años, parecen estar en consonancia con la observación previa de embriones con elevadas longitudes en el período enero-febrero de ambos años. De manera similar, en el sur de Brasil se registran las mayores cantidades de neonatos entre julio y septiembre (Motta et al., 2005; Ferreira, 1988). Al comparar estos resultados con un estudio realizado durante la misma época con Rhizoprionodon porosus (especie observada en las mismas capturas junto a R. lalandii), resulta conveniente para facilitar la administración pesquera de estas especies similares en apariencia, que los neonatos de R. porosus son abundantes entre febrero-agosto (Tagliafico et al., datos no publicados), prácticamente las mismas épocas en las que se observa mayor cantidad de juveniles de R. lalandii. Sin embargo, ambas especies parecen reproducirse durante todo el año, hecho que puede ser atribuido al ambiente de reconocida productividad debido al fenómeno de surgencia costera y descargas del río Orinoco (Gómez, 1996). Adicionalmente, se ha indicado que las características biológicas de temprana madurez, rápido crecimiento y corto ciclo de vida identificados en R. lalandii, revelan que la especie puede estar soportando altos niveles de depredación por tiburones de mayor tamaño (Lessa et al., 2009), y el hecho de que exista una posible estrategia que implique cierta sincronía reproductiva entre R. lalandii y R. porosus podría favorecer a ambas especies frente a sus depredadores, al disminuir las probabilidades de captura por haber mayor cantidad de posibles presas.
Cuadro 2: Composición de la dieta de los ejemplares de Rhizoprionodon lalandii capturados por la pesca artesanal de Isla de Margarita
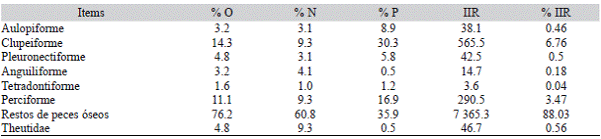
% O: porcentaje de frecuencia de ocurrencia; % N: porcentaje de frecuencia numérica; % P: porcentaje de frecuencia gravimétrica; IIR: índice de importancia relativa; % IIR: porcentaje de índice de importancia relativa. %O: percentage frequency of occurrence; % N: percentage by number; % P: percentage by weight (% W); IIR: Index of relative importance (IRI); % IIR: Percent index of relative importance (% IRI).
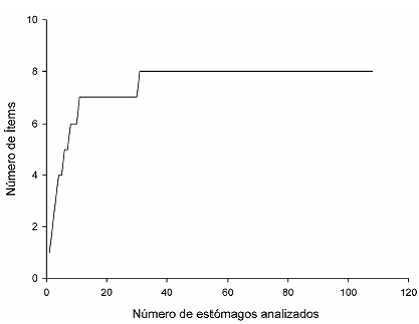
Fig. 4 Curva de acumulación de presas para Rhizoprionodon lalandii capturados por la pesquería artesanal de Isla de Margarita, Venezuela
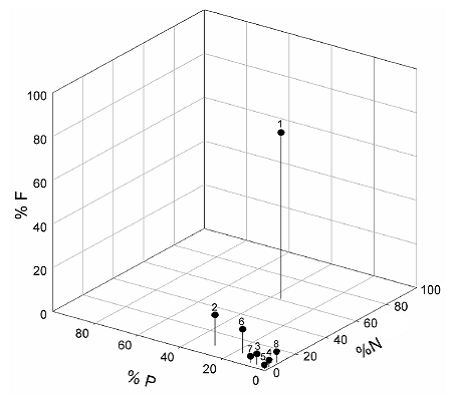
Fig. 5 Representación tridimensional de los valores de frecuencia numérica (% N), gravimétrica (% P) y de ocurrencia (% F) de los ordenes de peces e invertebrados consumidos por Rhizoprionodon lalandii: (1) Restos de peces óseos N.I., (2) Clupeiformes, (3) Pleuronectiformes, (4) Anguilliformes, (5) Tetradontiformes, (6) Perciformes, (7) Aulopiformes y (8) Theutida
Las elevadas proporciones de individuos inmaduros observados (45 %) parecen ser una norma en la región suramericana, aunque son aún mayores en el Caribe colombiano (59 %) (Martínez et al., 2012) y se han documentado importantes incrementos en Brasil, desde 38 % entre 1984 y 1989 (Lessa et al., 2009) a 76 % entre 1996 y 1999 (Motta et al., 2005), y 69 % entre 1996 y 2002 (Motta et al., 2007). Adicionalmente, resulta preocupante para la región nororiental venezolana que un 22 % de los ejemplares maduros está representado por hembras grávidas, lo que agrava la situación, afectando el futuro de la especie y pesquería.
Encontrar diferencias significativas en la proporción sexual, es una condición previamente observada para la especie. Sin embargo, en algunas áreas de Brasil encuentran un mayor número de machos que hembras (Motta et al., 2005; 2007); mientras que en otras localidades de Brasil, Colombia y presente estudio, las hembras resultan ser más numerosas (Andrade et al., 2008; Martínez et al., 2012). No obstante, el hecho de no encontrar diferencias en la proporción sexual durante 2006, pero observarlas en 2007, muestra que la dinámica poblacional de la especie puede presentar variaciones interanuales y resalta la importancia de llevar a cabo investigaciones de larga duración, para evitar conclusiones o recomendaciones de manejo con solo un año de estudio.
Las diferencias en la razón de sexos en los elasmobranquios pueden ser consecuencia de una posible segregación sexual, donde hembras y machos maduros sólo se juntan para copular. Sin embargo, ha sido señalado que los machos inmaduros suelen estar asociados a las hembras (Francis & Duffy, 2005), hecho observado en cuatro de los meses de estudio en los que solo se capturó machos inmaduros junto con hembras.
La fecundidad uterina observada, entre uno y cinco embriones por camada, coincide con lo señalado para el sur de Brasil (Motta et al., 2007). No obstante, el hecho de encontrar hembras grávidas con un sólo embrión de longitudes cercanas a 30 cm y no encontrar ninguna hembra con un sólo embrión menor a 10 cm, indica que probablemente las hembras observadas con un solo embrión pudieron abortar o alumbrar el resto de la camada durante o previo a su captura.
El embrión de mayor longitud encontrado (30.1 cm) resultó ser inferior en tamaño a lo indicado para el sur de Brasil (35 cm) (Motta et al., 2007). En este sentido y considerando que la menor longitud de juvenil libre observada fue de 26 cm, se podría inferir un intervalo de longitud de nacimiento para la especie de entre 26 y 35 cm.
Motta et al. (2007) sugieren un periodo de gestación de 11 a 12 meses, con picos de alumbramiento entre agosto y septiembre. Los resultados obtenidos en el presente estudio no permiten hacer indagaciones precisas del periodo de gestación. Sin embargo, embriones con longitudes cercanas al nacimiento fueron observados a principios y finales de ambos años, lo que permite inferir que durante esta época del año el alumbramiento podría ser más intenso. Macedo et al. (2012) señalan una posible diferencia de seis meses entre el ciclo reproductivo de la misma especie para el norte y sur de Brasil. No obstante, en el presente estudio la época de mayor alumbramiento observada parece coincidir más con lo observado para el sur de Brasil.
La alta incidencia de estómagos vacíos coincide con lo indicado por Martinez et al. (2012) y Bornatowski et al. (2012). En este sentido, se ha sugerido que las redes como método de captura pueden ocasionar la regurgitación del alimento en los ejemplares estudiados (Eslava, 2004).
Aunque la mayoría de los ítems observados en la dieta fueron clasificados como restos de peces no identificables, estos restos y las categorias inferiores definen la estrategia alimentaria de la especie con clara tendencia piscívora. Probablemente la mayoría de estos restos pertenezcan a los grupos de peces en los que se logró identificar claramente el orden taxonómico. En Brasil ha sido observada una dieta similar donde los clupeidos son el ítem de mayor importancia, seguidos por los cefalópodos (Lima et al., 2000; Bornatowski et al., 2012). Para el Caribe colombiano, los clupeidos aparecen como el segundo componente más importante y los camarones son el alimento más consumido (Martinez et al., 2012). Al respecto, resulta interesante sugerir la realización de un nuevo estudio sobre la dieta de la especie, luego del decreto de veda total y permanente de la pesca de arrastre industrial de camarones en Venezuela a partir del 2009, para indagar si una mayor disponibilidad del recurso camarón ocasiona variaciones en la dieta de la especie.
La Isla de Margarita es reconocida como área de surgencia costera, fenómeno que atrae importantes cardúmenes de sardinas (clupei-dos) durante ciertas épocas del año (Freón & Mendoza 2003). Sin embargo, factores ambientales desfavorables (Taylor et al., 2012) sumados a un incremento significativo en el esfuerzo de pesca sobre este recurso plenamente explotado, ha traido como consecuencia una evidente sobreexplotación, traducida en una disminución progresiva del recurso sardina a partir de 2005 (González, Eslava, & Gómez 2007). Esta situación afecta la disponibilidad de clupeidos para R. lalandii, y podría ser causa de un incremento en la depredación de otros ítems disponibles, como cefalópodos, Percifor-mes o inclusive Pleuronectiformes (lenguados).
Debido a la ausencia de estimaciones previas del nivel trófico de R. lalandii para Venezuela, no es posible discutir sobre variaciones temporales en la zona. Sin embargo, el valor calculado en este trabajo (3.7) es inferior al obtenido en Brasil (4.2) (Bornatowsky et al., 2012) y similar al indicado para R. porosus (3.8) (Cortés, 1999); especie que comparte el área de distribución y que en numerosas ocasiones fue observada en las capturas.
Rhizoprionodon lalandii constituye una importante fuente de ingresos para pescadores y revendedores, además de representar una fuente adicional de proteína animal para el país, al ser componente de platos típicos tradicionales en toda la costa. Por estos intereses económicos y culturales, resulta especialmente complicado regular su extracción. Sin embargo, ya existen suficientes evidencias que muestran que las capturas en las pesquerías artesanales venezolanas están en declive como consecuencia de una evidente sobreexplotación a lo largo del tiempo (Mendoza, 2015). En este sentido, a pesar de que no existen datos que permitan probar estadísticamente la sobreexplotación de R. lalandii, la información disponible de elevadas proporciones de juveniles y hembras grávidas en las capturas son una clara amenaza para la especie y sostenibilidad pesquera. Por todo esto, se recomienda establecer una longitud mínima de captura (> 57 cm de Lt), prohibir las capturas de hembras grávidas, establecer una veda de al menos cuatro meses al año (preferiblemente entre noviembre y febrero, época en que se observan mayor número de hembras grávidas y embriones con longitudes cercanas al nacimiento). Así como también promover el aumento de la luz de malla para evitar la captura de neonatos. Finalmente, todas estas regulaciones deben ir acompañadas de campañas educativas dirigidas a pescadores, revendedores y consumidores, haciendo énfasis en las múltiples ventajas del manejo pesquero responsable.
La última evaluación del estado de conservación de la especie por parte de la IUCN fue hace más de una década, donde fue catalogada con Datos Deficientes (Rosa et al., 2004). Sin embargo, nueva información relevante ha sido generada en Brasil (Mota et al., 2005; 2007; Andrade et al., 2008; Lessa et al., 2009; Mace-do et al., 2012; Mendonca et al., 2009; Bornatowsky et al., 2012; Mendonca et al., 2013), Colombia (Martinez et al., 2012) y Venezuela, por lo que se sugiere reevaluar el estato de conservación actual de la especie.

