


 Espanhol (pdf)
 Artigo em XML
 Referências do artigo

 Tradução automática
 Enviar este artigo por email
 Citado por SciELO
 Similares em
SciELO
 uBio

 Permalink

Las especies de la familia Centropomidae son conocidas como róbalos y se distribuyen en la región tropical y subtropical del Pacífico y Atlántico americano (Nelson, 2006). Los róbalos son muy comunes en las áreas de manglar y tienen gran tolerancia a las fluctuaciones de salinidad (Allen & Robertson, 1994). A pesar de ser euritópicas, estas especies son consideradas como vulnerables a la degradación de los hábitats (Musick et al., 2010).
Los róbalosestán clasificados como depredadores oportunistas que se alimentan principalmente de cangrejos, camarones y peces asociados a los estuarios y a la zona bentónica costera (Fischer et al., 1995; Camacho-Peña & Velkiss-Gadea, 2005; Bohórquez-Herrera, 2009; Feltrin-Contente, Freitas, & Gadig, 2009; Franco-Moreno, 2011; Dutka-Gianelli, 2014). Los estuarios y lagunas costeras proporcionan a los róbalos recursos indispensables para su desarrollo como alimento, refugio y protección de otros depredadores. La laguna de Barra de Navidad es considerada como un área de crianza debido a la existencia de un gran número de jóvenes de especies de peces de importancia comercial entre los que se encuentran los jóvenes de la especie róbalo de aletas amarillas o robalito Centropomus robalito (González-Sansón et al., 2014), además de una alta diversidad de invertebrados (Alvarez del Castillo, Hendrickx, & Rodríguez, 1992), que son la base alimenticia principal para muchas especies de peces.
En las costas del Pacífico mexicano se ha reportado a C. robalito como parte la comunidad de peces estuarinos (Velázquez-Velázquez, Vega-Cendejas, & Navarro-Alberto, 2007; González-Sansón et al., 2014) y demersales (Moncayo-Estrada, Castro-Aguirre, & De la Cruz-Agüero, 2006; Amezcua-Linares, 2009; Bohórquez-Herrera, 2009), sin embargo, los estudios que proporcionen información biológica de esta especie son escasos, no toman en consideración los cambios en la dieta de acuerdo a la talla de los organismos y de las etapas juveniles existe muy poca información (DíazGonzález & Soto, 1988; Bohórquez-Herrera, 2009; Franco-Moreno, 2011).
Tomando en cuenta los antecedentes resumidos anteriormente, el objetivo de este trabajo fue investigar la composición de la dieta de los jóvenes de C. robalitoy los cambios ontogénicos que sufre la misma dentro de la laguna de Barra de Navidad, México.
Materiales y métodos
Área de estudio: La laguna de Barra de Navidad es un sistema lagunar salobre/salado de tipo estuarino que se encuentra localizada en la costa del Pacífico Central Mexicano (19°10', 19°12' N - 104° 39', 104° 41' W). Presenta una comunicación permanente con el mar y está expuesta a un régimen mareal semidiurno, tiene una profundidad promedio de 4 m con excepción de la porción sureste y este, que son más someras (0.5 m). La laguna recibe un aporte de agua dulce estacional durante la época de lluvias (julio-octubre) desde el río Arroyo Seco y, a través de un canal artificial, desde el río Marabasco (Filonov, Tereshchenko, Monzón, González-Ruelas, & Godínez-Domínguez, 2000). La salinidad de esta laguna en la mayor parte del año está entre los 30-40 ups, aunque en periodos cortos de tiempo durante la época de lluvias baja a 18 ups como promedio (González-Sansón et al., 2014).
Muestreo de los peces y análisis del contenido estomacal: Los individuos utilizados para esta investigación, se capturaron durante 42 recolectas semanales realizadas entre enero 2011 y marzo 2012. Para las capturas fueron utilizadas varias artes de pesca diferentes: a) atarraya de 3 m de largo y 2.5 cm de luz de malla; b) cuatro redes de enmalle de 60 m de largo y 7.0, 7.6, 8.9 y 10.2 cm de luz de malla respectivamente; c) chinchorro playero experimental de 10 m de largo y 1 cm de luz de malla en el copo. Este amplio espectro de métodos de captura buscó reducir el sesgo introducido por la selectividad de cada arte de pesca y permitió obtener una composición por tallas de los individuos capturados que reflejó, de forma más adecuada, el espectro de tamaños de los individuos de cada especie presente en la laguna.
De cada organismo recolectado se registró la longitud total (LT, 1 mm de precisión) y el peso total (PT) (0.1 g de precisión), se les extrajo el estómago y fueron preservados en alcohol etílico al 70 % para su posterior análisis en el laboratorio. De acuerdo al rango de tallas de los organismos capturados, los mismos fueron agrupados en tres clases de longitud (<69 mm; 70-139 mm y ≥ 140 mm LT) para analizar la composición de la dieta con relación al incremento en el tamaño de los peces.
Los organismos encontrados dentro de cada estómago se identificaron hasta el taxón más bajo posible con la ayuda de claves especializadas para cada grupo. Las categorías alimentarias encontradas en cada estómago fueron contabilizadas y pesadas (0.001 g). La talla de las entidades alimentarias se determinó con precisión de 0.1 mm. Para este fin, se midieron el largo total de los camarones (Alpheidae, Palemonidae, Penaeidae) desde el extremo del rostrum hasta el extremo del telson, el largo total de los peces (Gobiidae) y el ancho del carapacho en los cangrejos (larvas de Brachiura, Portunidae). Para determinar la suficiencia del número de estómagos analizados, se generaron curvas de acumulación de presas para cada una de las clases de talla, por medio de un procedimiento de remuestreo con 50 aleatorizaciones usando el programa EstimateS 8.2 (Colwell, 2009).
Los componentes alimentarios encontrados en los estómagos se cuantificaron de acuerdo con los métodos Numérico (% N = Ni /N t , donde Ni es el número de organismos encontrados de una categoría i y Nt es el número total de organismos encontrados de todas las categorías); Gravimétrico (% W = Wi / Wt, donde Wies el peso de la categoría i y Wt es el peso total de todas las categorías encontradas); Frecuencia de Presencia (% FO = No / Ns, donde No es el número de presencias de la categoría iy Nses el número total de estómagos analizados) y el Índice de Importancia Relativa, IIR = (% N + % W )* % FO) (Pinkas, Oliphant, & Iverson, 1971) que permite valorar la importancia de cada categoría alimentaria en la dieta y es expresado en porcentaje (Cortés, 1997).
Se estimó el índice de Smith (1982) para conocer la amplitud del subnicho trófico de cada una de las clases de talla (FT = ∑√pj aj, donde FT es el valor de la amplitud del subnicho trófico, pj es valor porcentual de la categoría alimentaria j en la dieta total, aj es la proporción de la categoría alimentaria j del total de categorías). Como una medida del potencial competitivo entre las clases de talla, se utilizó el índice de Pianka (1973), el cual estima la superposición de la dieta entre las clases de tallas de los organismos. Cuando los valores oscilan entre el 0.00 y 0.29 la superposición se considera baja, de 0.30 a 0.60 es considerada media, y mayores de 0.60 la superposición de la dieta se considera alta (Langton, 1982). Ambos índices están estandarizados entre 0 y 1 (Krebs, 1998), y los cálculos se realizaron con el programa Ecological Methodology 7.0.
Para analizar el patrón de similitud de las clases de talla en cada mes de muestreo, con base en la composición de la dieta, se utilizó el análisis de clasificación numérica jerárquica aglomerativa basado en promedio aritmético de grupos no ponderados (UPGMA). La prueba de permutaciones SIMPROF (Clarke, Somerfield, & Gorley, 2008) fue utilizada para identificar los grupos significativos en el dendrograma resultante. El escalado multidimensional no métrico (MDS) fue empleado para ordenar las muestras utilizando la misma matriz de similitudes que se usó para el análisis de clasificación numérica. La combinación de los resultados de la clasificación numérica y el MDS ha sido considerada por Clarke & Gorley (2006) como la forma más efectiva de verificar la pertinencia y consistencia mutua de ambas representaciones. Para determinar las entidades alimentarias responsables de la diferencias entre los grupos encontrados, se aplicó el método SIMPER. En todos los casos se utilizó el índice de BrayCurtis (Clarke & Warwick, 2001) como medida de similitud entre las dietas, calculado con los valores porcentuales de peso (W %) con que contribuye cada uno de los grupos de presas. Los cálculos se realizaron por medio del programa PRIMER v6 (Clarke & Gorley, 2006).
Resultados
Un total de 681 estómagos fueron analizados para describir la dieta de los jóvenes de C. robalito en la laguna de Barra de Navidad, de los cuales 292 (42.9 %) presentaron algún tipo de presas dentro del estómago. Se analizaron en total 154 estómagos para la clase de longitudes menores (≤ 69 mm), 107 estómagos para la clase de longitudes intermedias (70-139 mm) y 31 estómagos para la clase de longitudes mayores (≥ 140 mm). El número de estómagos analizados de C. robalito se considera el adecuado para describir la dieta, ya que la curva acumulada de presas presenta una tendencia hacia la asíntota (Figura 1).
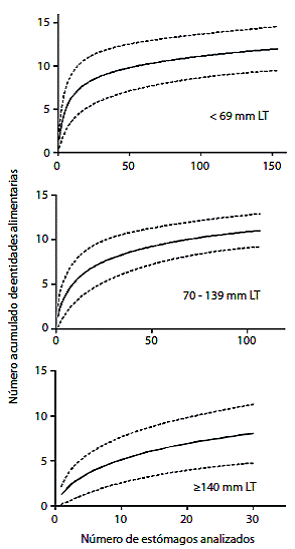
Figura 1: Curvas acumuladas del número de entidades alimentarias para cada una de las clases de longitud de los peces analizados.
La dieta general está compuesta por 14 entidades alimentarias agrupadas en tres grandes categorías: Crustáceos, peces e insectos (Cuadro 1). En la categoría de los crustáceos, se encuentran camarones alféidos (Alpheidae), jóvenes de la familia Penaeidae (postlarvas) no identificados, camarón café (Farfantepenaeus californiensis), camarón blanco (Litopenaeus vannamei) y camarones palemónidos (Palaemonidae), además de cangrejos (Callinectes arcuatus y Xanthidae), larvas de Brachiura y copépodos (Copepoda). En la categoría de los peces se agruparon las anchovetas (Engraulidae), peces góbidos (Gobiidae), chivo rojo (Pseudupeneus grandisquamis) y los restos de peces no identificados debido al grado avanzado de digestión.
Cuadro 1: Composición del contenido estomacal de Centropomus robalito según las clases de longitud total
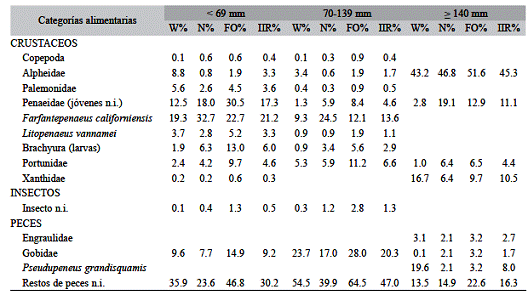
W % = Porcentaje en peso; N % = Porcentaje en número; FO %: Frecuencia de presencia; IIR % = Índice de importancia relativa expresado como porcentaje del total
En los peces de tamaño pequeño (< 69 mm LT), las categorías alimentarias mejor representadas en peso, número y frecuencia de presencia fueron los jóvenes de Penaeidae, el camarón café y los peces, estos últimos principalmente en forma de restos no identificables taxonómicamente. El resto de las categorías, aparecieron en muy baja proporción y presentaron índices bajos de importancia relativa (Cuadro 1).
En los peces de tamaño intermedio (70139 mm LT), los peces dominaron el contenido estomacal. Se registraron valores altos de peso, número y frecuencia de presencia para los restos de peces no identificados en primer lugar y para peces de la familia Gobiidae en segundo lugar. La tercera entidad alimentaria por el valor de su índice de importancia relativa fue el camarón café. En este caso se presentó un valor alto según el método numérico, pero relativamente bajo según el peso y la frecuencia de presencia. Esto indica que los ejemplares consumidos son de pequeño tamaño y se capturan varios a la vez. El resto de las categorías, aparecieron en muy baja proporción y presentaron índices bajos de importancia relativa (Cuadro 1).
En los peces mayores (≥ 140 mm LT), los camarones alfeidos fueron la entidad dominante en el contenido estomacal, presentando más del 40 % según todos los métodos de análisis.
Le siguieron los peces, en los cuales Pseudupeneus grandisquamis estuvo representada por un sólo individuo en un solo estómago que pesó 1.995 g, y en consecuencia, presentó valores bajos según el número y la frecuencia de presencia. Los restos de peces no identificados fueron también importantes, pero en menor grado con respecto a las categorías de tamaño pequeño y mediano de los peces cuyo contenido estomacal se examinó. Dentro de los cangrejos, los ejemplares de la familia Xanthidae fueron importantes, pero de nuevo se registró una mayor proporción en peso con respecto al número y la frecuencia de presencia, lo que indica consumo de ejemplares grandes (Cuadro 1).
Las longitudes medias de los camarones de las familias Penaeidae y Palaemonidae resultaron muy similares y oscilaron entre 6.2 y 8.2 mm, mientras que los camarones de la familia Alpheidae fueron notablemente mayores en promedio. Los cangrejos también presentaron en general tallas relativamente homogéneas y pequeñas. En este grupo no se cuentan los ejemplares de la familia Xanthidae que fueron pocos y relativamente grandes pero, por su nivel de digestión, no pudieron ser medidos (Cuadro 2). Al analizar la relación entre el largo de las presas y el largo de los peces que las contenían en sus estómagos, se encontró una correlación positiva en cuatro de las entidades (Cuadro 2, Figura 2).
Cuadro 2: Longitudes medias (± error estándar), mínimas y máximas de las entidades alimentarias encontradas en el contenido estomacal de Centropomus robalito
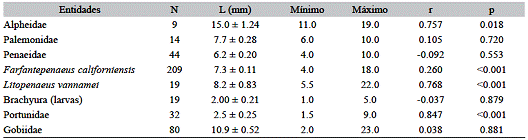
r = coeficiente de correlación calculado entre la longitud de la entidad alimentaria y la longitud total del pez; p = probabilidad de r para Ho: ρ = 0
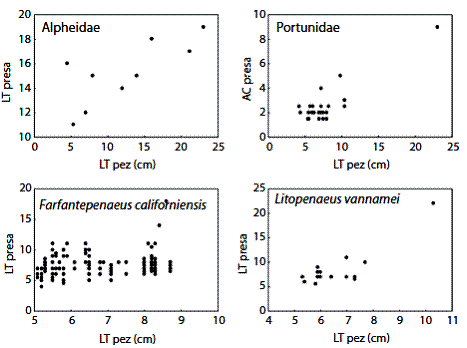
Figura 2: Relación entre el tamaño de las entidades alimentarias y la longitud total de los peces examinados para cuatro categorías alimentarias en Centropomus robalito. LT = Longitud total; AC = Ancho del carapacho.
De acuerdo a los valores obtenidos del Índice de Smith, C. robalito presenta una estrategia alimentaria de tipo generalista, tanto de manera general para la especie, como para las tres clases de talla analizadas, ya que los valores oscilaron entre el 0.65 y 0.91. En cuanto a la superposición de la dieta entre las clases de tamaño de acuerdo al Índice de Pianka, se presentó un valor alto entre las clases pequeña y mediana (0.88) y moderada entre las clases pequeña y grande (0.38) y las clases mediana y grande (0.27).
El análisis de clasificación numérica permitió definir tres grupos significativamente diferentes (Figura 3). El grupo a estuvo formado por los peces de tamaño mayor (≥ 140 mm LT) en todos los meses. El grupo b incluyó los peces de las clases intermedia (70-139 mm LT) y pequeña (< 69 mm LT) en el mes de enero. En el grupo c se ubicaron el resto de las muestras, integradas por los peces de las clases pequeña y mediana en los meses de octubre, noviembre y diciembre. Este resultado implica que el factor principal que explica las diferencias observadas en la composición de la dieta es el tamaño de los peces cuyo contenido estomacal se investigó. Los peces mayores presentan un espectro trófico significativamente diferente al de los peces medianos y pequeños. Por otra parte, el mes de muestreo resultó importante para generar dos grupos diferentes en los peces pequeños y medianos. Los resultados del escalado multidimensional corroboran esta agrupación con un valor de estrés = 0.09, el cual indica una estructura bien definida en los datos (Figura 3).
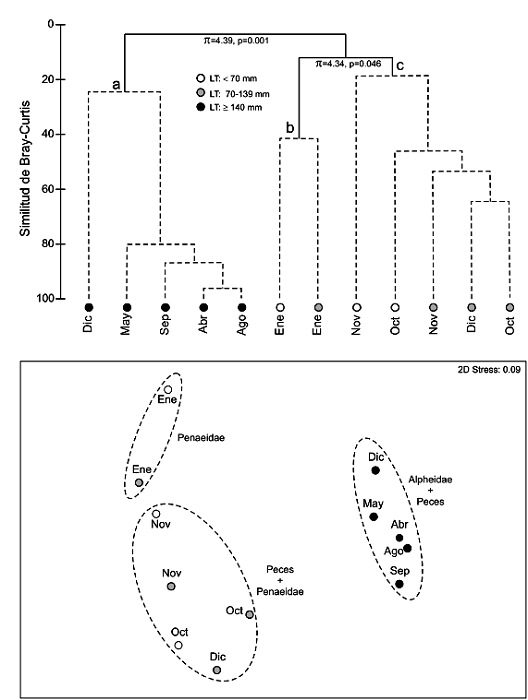
Figura 3: Clasificación numérica y escalado multidimensional de las muestras de contenido estomacal de Centropomus robalito agrupadas por clases de longitud y mes de muestreo. Se indican los valores del parámetro π de la prueba SIMPROF y su probabilidad para los grupos del dendrograma que resultaron significativos (líneas intermitentes).
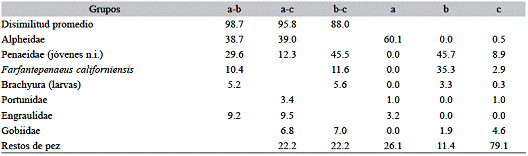
El análisis SIMPER permitió definir las entidades alimentarias responsables de las diferencias observadas (Cuadro 3). La separación entre el grupo a y los grupos b y c se debe principalmente al dominio de los camarones alfeidos en la dieta de los peces mayores y su ausencia en los otros grupos de tamaño. Por su parte, el grupo b se separa del c principalmente por el dominio de los jóvenes de Penaeidae en el primero y la notable abundancia de peces en el segundo. Estas diferencias se han indicado junto a los grupos representados en el escalado multidimensional (Figura 3).
Cuadro 3: Análisis SIMPER entre los grupos formados por el análisis de clasificación numérica (ver Figura 3)
Discusión
Según nuestros resultados, C. robalito es una especie con una estrategia alimentaria de tipo generalista y presenta cambios ontogénicos en la dieta, que se reflejan en un cambio en la composición del contenido estomacal y en que los individuos mayores tienden a consumir presas mayores. Una situación similar ha sido reportada para otras especies del género Centropomus (Dutka-Gianelli, 2014). La laguna de Barra de Navidad presenta una alta diversidad y abundancia de invertebrados como camarones y cangrejos (Álvarez del Castillo et al., 1992), así como gran cantidad de peces pequeños o jóvenes tempranos de especies grandes (González-Sansón et al., 2014). Esto propicia que los individuos jóvenes de un gran número de especies de peces y entre ellos el robalito, utilicen estos sitios para alimentarse y crecer por un periodo de tiempo hasta lograr una talla determinada y migrar a otras zonas adyacentes como zonas arrecifales y los fondos blandos para completar sus ciclos vitales (Beck et al., 2001).
De manera general se ha descrito que el espectro trófico de C. robalito está compuesto por camarones, peces y moluscos (Fischer et al., 1995). Díaz-González & Soto (1988) realizaron una descripción de los hábitos alimentarios de los jóvenes y adultos de esta especie en un sistema estuarino del Pacífico mexicano, pero no mencionan si existen cambios ontogénicos en la dieta. Según estos autores, los camarones son las presas de mayor preferencia del robalito. Un resultado similar se obtuvo para la especie en aguas de la plataforma continental (Bohórquez-Herrera, 2009; FrancoMoreno, 2011). Los camarones consumidos pertenecieron principalmente a las familias Penaeidae, Sicyoniidae y Alpheidae, mientras que los peces encontrados por esos autores fueron principalmente especies de las familias Gobiidae, Poeciliidae y Clupeidae. Los insectos son presas con poca incidencia en el contenido estomacal y solo han sido reportados por Díaz-González & Soto (1998) en la laguna Huizache-Caimanero (Sinaloa, México) y en el presente estudio.
Otras especies del mismo género, muy similares morfológicamente a C. robalito, han sido investigadas en el Atlántico. Aliaume, Zerbi, & Miller (2005) examinaron ejemplares jóvenes (30-100 mm de longitud estándar) de tres especies del género Centropomus en aguas de Puerto Rico y hallaron una composición variable de la dieta según la especie. De acuerdo con estos autores, C. undecimalis consume principalmente peces y camarones, mientras que C. ensiferus y C. pectinatus presentaron dietas dominadas por camarones (53-83 % del contenido estomacal según número) con los peces en menor proporción (13-27 % en número). La coincidencia de estos datos con nuestros resultados resulta alta. Feltrin-Contente et al. (2009) investigaron la dieta de ejemplares jóvenes (40-170 mm de longitud estándar) de Centropomus parallelus en un estuario del sudeste de Brasil. Estos autores encontraron una amplia dominancia de los crustáceos en la dieta y detectaron un cambio ontogénico claro en la composición de la misma, con un incremento en la representación de palemónidos (Macrobrachium spp.) y cangrejos grápsidos al aumentar el tamaño de los peces. Esto coincide básicamente con nuestros resultados, pues los ejemplares grandes de nuestro estudio tienen una dieta dominada por crustáceos grandes (Alpheidae).
El contenido estomacal de individuos jóvenes de C. undecimalis, fue investigado por Adams, Wolfe, & Laiman (2009) en Florida, Estados Unidos y encontraron una dieta dominada por peces teleósteos y crustáceos. Sin embargo, estos autores muestrearon en general, ejemplares mayores que los incluidos en nuestro trabajo (120-346 mm longitud estándar), por lo que la comparación debe hacerse con cautela. Guevara, Bosch, Aguilar, Lalana, & Beltrán (1994) investigaron el contenido estomacal de Centropomus undecimalis, Centropomus pectinatus y Centropomus ensiferus en una laguna costera de Cuba, y encontraron una dieta dominada en primer lugar por peces y en segundo término por crustáceos, pero estos autores analizaron estómagos de peces grandes, capturados con redes de agalla.
Se ha planteado que en las especies del género Centropomus la talla de los organismos es un indicador de la composición de la dieta, ya que las tallas menores son consumidores más activos de presas de menor tamaño como camarones, cangrejos y peracáridos y los organismos de tallas mayores disminuyen el consumo de invertebrados pequeños y se alimentan principalmente de peces y cangrejos, mostrando una tendencia a mayor especificidad en la captura de presas (Guevara, Sánchez, Rosas, Mascaro, & Brito, 2007; Feltrin-Contente et al., 2009). Este patrón general se confirma con los resultados de este trabajo. Como conclusión general se puede afirmar que las entidades alimentarias específicas puedan variar de una zona a otra, de acuerdo a su disponibilidad local, pero siempre se debe esperar una dieta basada principalmente en crustáceos y peces pequeños, con un cambio apreciable en el tamaño de las presas al aumentar el tamaño de los peces analizados.

