<?xml version="1.0" encoding="ISO-8859-1"?><article xmlns:mml="http://www.w3.org/1998/Math/MathML" xmlns:xlink="http://www.w3.org/1999/xlink" xmlns:xsi="http://www.w3.org/2001/XMLSchema-instance">
<front>
<journal-meta>
<journal-id>0253-2948</journal-id>
<journal-title><![CDATA[Revista Costarricense de Ciencias Médicas]]></journal-title>
<abbrev-journal-title><![CDATA[Rev. costarric. cienc. méd]]></abbrev-journal-title>
<issn>0253-2948</issn>
<publisher>
<publisher-name><![CDATA[Editorial Nacional de Salud y Seguridad Social]]></publisher-name>
</publisher>
</journal-meta>
<article-meta>
<article-id>S0253-29482000000200003</article-id>
<title-group>
<article-title xml:lang="es"><![CDATA[Detección del efecto citotóxico de la alfa hemolisina de E. coli (Hly A) en leucocitos polimorfonucleares neutrófilos mediante citometría de flujo]]></article-title>
</title-group>
<contrib-group>
<contrib contrib-type="author">
<name>
<surname><![CDATA[García]]></surname>
<given-names><![CDATA[Jorge]]></given-names>
</name>
<xref ref-type="aff" rid="A01"/>
</contrib>
</contrib-group>
<aff id="A01">
<institution><![CDATA[,Universidad de Costa Rica Escuela de Medicina Departamento de Bioquímica]]></institution>
<addr-line><![CDATA[ ]]></addr-line>
</aff>
<pub-date pub-type="pub">
<day>00</day>
<month>12</month>
<year>2000</year>
</pub-date>
<pub-date pub-type="epub">
<day>00</day>
<month>12</month>
<year>2000</year>
</pub-date>
<volume>21</volume>
<numero>3-4</numero>
<fpage>127</fpage>
<lpage>139</lpage>
<copyright-statement/>
<copyright-year/>
<self-uri xlink:href="http://www.scielo.sa.cr/scielo.php?script=sci_arttext&amp;pid=S0253-29482000000200003&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://www.scielo.sa.cr/scielo.php?script=sci_abstract&amp;pid=S0253-29482000000200003&amp;lng=en&amp;nrm=iso"></self-uri><self-uri xlink:href="http://www.scielo.sa.cr/scielo.php?script=sci_pdf&amp;pid=S0253-29482000000200003&amp;lng=en&amp;nrm=iso"></self-uri><abstract abstract-type="short" xml:lang="es"><p><![CDATA[La viabilidad de leucocitos polimorfonucleares neutrófilos (PMN) expuestos a alfa hemolisina ( Hly A) de E. coli se evaluó detectando, por citometría de flujo, la fluorescencia que células permeabilizadas al propidio manifiestan con éste último intercalado en el ADN celular. El sobrenadante hemolítico causó fluorescencia en PMN de manera directamente proporcional a la dosis hemolítica, no así los sobrenadantes control no hemolíticos. A dosis menores a 0,5 HU50/ml las células excluyeron propidio manteniendo viabilidad, aunque aumentaron de manera leve y temporal su tamaño, y volvieron al nivel basal en término de 1 hora, sugiriendo que existe daño en membrana sin entrada de propidio, y que se presenta recuperación celular de dichas lesiones, al menos a corto plazo. La fluorescencia de PMN disminuyó luego de 15 minutos de exposición, fenómeno que se previno mediante la quelación de Ca+2extracelular con N,N,N',N'- tetraacetato ( EGTA ); ello indica que es la entrada de calcio a la célula la causante de la pérdida de señal. La disminución o quelación de Ca+2 extracelular incrementó la fluorescencia, pero solo la quelación simultánea de Ca+2 externo e interno la mantuvo inalterada. Se concluye que la entrada de Ca+2 a la célula activa mecanismos que disminuyen la fluorescencia inicial; que niveles bajos o quelación de Ca+2 extracelular facilitan la entrada de propidio, lo que incrementa la fluorescencia, y que la disminución de la señal se evita solo si el Ca+2 intracelular y el extracelular se encuentran quelados. Los hallazgos de este estudio, en conjunto con datos de otros autores, se toman como base para formular una cadena hipotética de acontecimientos que explica las observaciones citométricas en PMN expuestos a Hly A, con énfasis en el significado del aumento en tamaño celular en ausencia de entrada de propidio a la célula.]]></p></abstract>
<abstract abstract-type="short" xml:lang="en"><p><![CDATA[Cell viability of Hly A - exposed polymorphonuclear neutrophils (PMN) was assessed by propidium uptake, measured by flow cytometry. Hemolytic supernatant, but not the non hemolytic controls, caused a dose-dependent fluorescence signal in PMN. Cells exposed to low hemolytic activities (below 0,5 HU50/ml) did not fluoresce, although cell size, estimated by Forward Scatter (FSC), increased slightly, and then returned to normal within 30-60 minutes, suggesting both membrane damage in absence of propidium uptake and short term cell recovery from the effects of Hly A. The fluorescent signal from permeated PMN decreased 15 minutes after exposure to Hly A, a decrease which was prevented by chelation of extracellular Ca+2 with EGTA. Whereas Ca+2 entry into the cell is responsible for triggering mechanisms leading to loss of fluorescence, low or chelated extracellular Ca+2 facilitate propidium uptake, but the fluorescent signal does not decrease only when both intracellular and extracellular Ca+2are chelated. The findings of this study, together with data from other authors, are taken as the basis to formulate a hypothethical sequence of events to explain the cytometric data obtained from Hly A exposed PMN, including the significance of increases in cell size without propidium uptake.]]></p></abstract>
<kwd-group>
<kwd lng="es"><![CDATA[Leucocito polimorfonuclear]]></kwd>
<kwd lng="es"><![CDATA[alfa hemolisina]]></kwd>
<kwd lng="es"><![CDATA[citometría de flujo]]></kwd>
<kwd lng="es"><![CDATA[fluorescencia]]></kwd>
<kwd lng="en"><![CDATA[Polymorphonuclear leukocytes]]></kwd>
<kwd lng="en"><![CDATA[alpha hemolysin]]></kwd>
<kwd lng="en"><![CDATA[flow cytometry]]></kwd>
<kwd lng="en"><![CDATA[fluorescent]]></kwd>
</kwd-group>
</article-meta>
</front><body><![CDATA[ <CENTER><B><FONT FACE="Arial,Helvetica">Detecci&oacute;n del efecto citot&oacute;xico de la alfa hemolisina de <I>E. coli</I> (Hly A) en leucocitos polimorfonucleares neutr&oacute;filos mediante citometr&iacute;a de flujo</FONT></B></CENTER>      <CENTER><B><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Jorge Garc&iacute;a<A NAME="*1"></A><A HREF="#*a">*</A></FONT></FONT></B></CENTER>       <P><B><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Resumen</FONT></FONT></B>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>La viabilidad de leucocitos polimorfonucleares neutr&oacute;filos (PMN) expuestos a alfa hemolisina ( Hly A) de <I>E. coli</I> se evalu&oacute; detectando, por citometr&iacute;a de flujo, la fluorescencia que c&eacute;lulas permeabilizadas al propidio manifiestan con &eacute;ste &uacute;ltimo intercalado en el ADN celular. El sobrenadante hemol&iacute;tico caus&oacute; fluorescencia en PMN de manera directamente proporcional a la dosis hemol&iacute;tica, no as&iacute; los sobrenadantes control no hemol&iacute;ticos. A dosis menores a 0,5 HU50/ml las c&eacute;lulas excluyeron propidio manteniendo viabilidad, aunque aumentaron de manera leve y temporal su tama&ntilde;o, y volvieron al nivel basal en t&eacute;rmino de 1 hora, sugiriendo que existe da&ntilde;o en membrana sin entrada de propidio, y que se presenta recuperaci&oacute;n celular de dichas lesiones, al menos a corto plazo. La fluorescencia de PMN disminuy&oacute; luego de 15 minutos de exposici&oacute;n, fen&oacute;meno que se previno mediante la quelaci&oacute;n de Ca</FONT><SUP><FONT SIZE=-2>+2</FONT></SUP><FONT SIZE=-1>extracelular con N,N,N&acute;,N&acute;- tetraacetato ( EGTA ); ello indica que es la entrada de calcio a la c&eacute;lula la causante de la p&eacute;rdida de se&ntilde;al. La disminuci&oacute;n o quelaci&oacute;n de Ca</FONT><SUP><FONT SIZE=-2>+2</FONT></SUP><FONT SIZE=-1> extracelular increment&oacute; la fluorescencia, pero solo la quelaci&oacute;n simult&aacute;nea de Ca</FONT><SUP><FONT SIZE=-2>+2</FONT></SUP><FONT SIZE=-1> externo e interno la mantuvo inalterada. Se concluye que la entrada de Ca</FONT><SUP><FONT SIZE=-2>+2</FONT></SUP><FONT SIZE=-1> a la c&eacute;lula activa mecanismos que disminuyen la fluorescencia inicial; que niveles bajos o quelaci&oacute;n de Ca</FONT><SUP><FONT SIZE=-2>+2</FONT></SUP><FONT SIZE=-1> extracelular facilitan la entrada de propidio, lo que incrementa la fluorescencia, y que la disminuci&oacute;n de la se&ntilde;al se evita solo si el Ca</FONT><SUP><FONT SIZE=-2>+2</FONT></SUP><FONT SIZE=-1> intracelular y el extracelular se encuentran quelados. Los hallazgos de este estudio, en conjunto con datos de otros autores, se toman como base para formular una cadena hipot&eacute;tica de acontecimientos que explica las observaciones citom&eacute;tricas en PMN expuestos a Hly A, con &eacute;nfasis en el significado del aumento en tama&ntilde;o celular en ausencia de entrada de propidio a la c&eacute;lula. </FONT><FONT SIZE=-2>(<I>Rev Cost Cienc Med 2000; 21(3-4):127-139)</I></FONT></FONT>     <BR>&nbsp;      <P><B><I><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Palabras Claves</FONT></FONT></I></B>      <P><I><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Leucocito polimorfonuclear, alfa hemolisina, citometr&iacute;a de flujo, fluorescencia.</FONT></FONT></I>     <BR>&nbsp;      <P><B><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Abstract</FONT></FONT></B>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Cell viability of Hly A - exposed polymorphonuclear neutrophils (PMN) was assessed by propidium uptake, measured by flow cytometry. Hemolytic supernatant, but not the non hemolytic controls, caused a dose-dependent fluorescence signal in PMN. Cells exposed to low hemolytic activities (below 0,5 HU50/ml) did not fluoresce, although cell size, estimated by Forward Scatter (FSC), increased slightly, and then returned to normal within 30-60 minutes, suggesting both membrane damage in absence of propidium uptake and short term cell recovery from the effects of Hly A. The fluorescent signal from permeated PMN decreased 15 minutes after exposure to Hly A, a decrease which was prevented by chelation of extracellular Ca</FONT><SUP><FONT SIZE=-2>+2</FONT><FONT SIZE=-1> </FONT></SUP><FONT SIZE=-1>with EGTA. Whereas Ca</FONT><SUP><FONT SIZE=-2>+2</FONT><FONT SIZE=-1> </FONT></SUP><FONT SIZE=-1>entry into the cell is responsible for triggering mechanisms leading to loss of fluorescence, low or chelated extracellular Ca</FONT><SUP><FONT SIZE=-2>+2</FONT></SUP><FONT SIZE=-1> facilitate propidium uptake, but the fluorescent signal does not decrease only when both intracellular and extracellular Ca<SUP>+</SUP></FONT><SUP><FONT SIZE=-2>2</FONT></SUP><FONT SIZE=-1>are chelated. The findings of this study, together with data from other authors, are taken as the basis to formulate a hypothethical sequence of events to explain the cytometric data obtained from Hly A exposed PMN, including the significance of increases in cell size without propidium uptake.</FONT></FONT>     ]]></body>
<body><![CDATA[<BR>&nbsp;      <P><B><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Key Words</FONT></FONT></B>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Polymorphonuclear leukocytes, alpha hemolysin, flow cytometry, fluorescent.</FONT></FONT>     <BR>&nbsp;      <P><B><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Introducci&oacute;n</FONT></FONT></B>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>La capacidad de producir y secretar alfa hemolisina (Hly A) caracteriza a casi la mitad de las cepas de <I>E. coli </I>causantes de infecci&oacute;n extraintestinal (<A HREF="#1">1</A>,<A HREF="#2">2</A>), y se encuentra hasta en un 78% de las cepas uropatog&eacute;nicas (<A HREF="#3">3</A>), tanto en infecciones sintom&aacute;ticas como asintom&aacute;ticas (<A HREF="#4">4</A>). Hly A es un factor de virulencia, como ha sido demostrado repetidamente con mutantes no hemol&iacute;ticos derivados de cepas virulentas, que pierden su virulencia (<A HREF="#5">5</A>), o mediante cepas hemol&iacute;ticas isog&eacute;nicas obtenidas por transformaci&oacute;n de <I>E. coli</I> no virulentas, que adquieren virulencia luego de la transformaci&oacute;n (<A HREF="#6">6</A>-<A HREF="#8">8</A>). La utilizaci&oacute;n de t&eacute;cnicas de gen&eacute;tica molecular ha contribuido enormemente a la definici&oacute;n de la estructura y funci&oacute;n de Hly A, incluyendo su estructura primaria (<A HREF="#9">9</A>), caracterizaci&oacute;n de su oper&oacute;n (<A HREF="#10">10</A>,<A HREF="#11">11</A>), y el papel de los diferentes dominios de la mol&eacute;cula en su mecanismo de acci&oacute;n en c&eacute;lulas blanco (<A HREF="#12">12</A>-<A HREF="#14">14</A>).</FONT></FONT>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Aunque los estudios iniciales de Hly A se centraron en su capacidad hemol&iacute;tica (<A HREF="#15">15</A>,<A HREF="#16">16</A>), pronto se reconoci&oacute; que su actividad citot&oacute;xica era m&aacute;s amplia, y que afectaba diferentes tipos de c&eacute;lulas (<A HREF="#17">17</A>). Hly A es una citotoxina que depende de calcio extracelular para su activaci&oacute;n (<A HREF="#18">18</A>), y que ataca la membrana de la c&eacute;lula blanco, insert&aacute;ndose en la misma y formando poros hidrof&iacute;licos (<A HREF="#19">19</A>). Estos poros han sido estudiados en detalle (<A HREF="#20">20</A>); su efecto sobre la membrana, y las consecuencias de tales lesiones sobre la fisiolog&iacute;a de la c&eacute;lula blanco, explica la actividad citot&oacute;xica de Hly A, incluyendo disfunci&oacute;n fagoc&iacute;tica, producci&oacute;n de mediadores inflamatorios (<A HREF="#21">21</A>,<A HREF="#22">22</A>), y estimulaci&oacute;n de consumo de ox&iacute;geno en neutr&oacute;filos (PMN) que acompa&ntilde;a la producci&oacute;n de radicales libres (<A HREF="#21">21</A>). La evidencia obtenida revela que, aunque la toxina sufre inactivaci&oacute;n si se preincuba con prote&iacute;nas plasm&aacute;ticas, mantiene su efecto contra PMN si se a&ntilde;ade simult&aacute;neamente con aquellas; se propone entonces que Hly A es una citotoxina que tiene efecto selectivo contra PMN (<A HREF="#23">23</A>), por cuanto las prote&iacute;nas plasm&aacute;ticas no parecen inactivarla antes de que act&uacute;e sobre aquellos. Esto concuerda con la propuesta de que Hly A es un factor de virulencia, si se tiene en cuenta que su acci&oacute;n anti fagoc&iacute;tica puede facilitar el establecimiento y diseminaci&oacute;n de la bacteria en tejidos. Otras c&eacute;lulas blanco incluyen c&eacute;lulas de epitelio tubular renal (<A HREF="#24">24</A>), las cuales no encuentran un medio proteico en el lumen tubular que ofrezca a sus membranas protecci&oacute;n contra HlyA. En &eacute;sta situaci&oacute;n, la citotoxicidad de Hly A puede contribuir a formar micro abscesos que faciliten la entrada de la bacteria al par&eacute;nquima renal.</FONT></FONT>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>La citotoxicidad de Hly A en leucocitos se ha evaluado haciendo uso de microscop&iacute;a de luz (<A HREF="#25">25)</A>, exclusi&oacute;n de azul trip&aacute;n (<A HREF="#25">25</A>,<A HREF="#26">26</A>), microscop&iacute;a electr&oacute;nica de transmisi&oacute;n (<A HREF="#27">27</A>) y liberaci&oacute;n de</FONT><FONT SIZE=-2> <SUP>51</SUP></FONT><FONT SIZE=-1>Cr de c&eacute;lulas blanco (<A HREF="#28">28</A>). Bhakdi <I>et al</I> (<A HREF="#23">23</A>) usaron exclusi&oacute;n de propidio, medida con citometr&iacute;a de flujo, como marcador de integridad de membrana en c&eacute;lulas expuestas a Hly A, y propusieron que es el indicador m&aacute;s sensible de da&ntilde;o a la membrana de neutr&oacute;filos (<A HREF="#29">29</A>). Sin embargo, los estudios publicados no proporcionan datos comparativos del da&ntilde;o causado por Hly A en c&eacute;lulas blanco usando diferentes t&eacute;cnicas para estimar la integridad de la membrana.</FONT></FONT>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>La citometr&iacute;a de flujo para estimar exclusi&oacute;n de propidio es una t&eacute;cnica objetiva, eficiente y altamente reproducible para la medici&oacute;n de da&ntilde;o a membranas celulares. Agentes con actividad sobre membranas pueden ocasionar lesiones que permiten al propidio ingresar a la c&eacute;lula, e intercalarse en el ADN. La excitaci&oacute;n del propidio intercalado con un haz l&aacute;ser causa emisi&oacute;n de fluorescencia, la cual es detectada por el cit&oacute;metro (<A HREF="#30">30</A>). En este estudio se us&oacute; citometr&iacute;a de flujo para establecer la curva de dosis respuesta en PMN expuestos a Hly A, se midi&oacute; la exclusi&oacute;n de propidio en funci&oacute;n del tiempo de exposici&oacute;n y el efecto que sobre la misma tiene el calcio intra y extracelular.</FONT></FONT>     <BR>&nbsp;      ]]></body>
<body><![CDATA[<P><B><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Materiales y M&eacute;todos</FONT></FONT></B>      <P><B><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Cepas de <I>Escherichia coli</I></FONT></FONT></B>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Las cepas usadas en esta investigaci&oacute;n se obtuvieron del laboratorio del Dr. R.A. Welch (U. of Wisconsin, Madison, WI), y son derivadas de <I>Escherichia coli</I> DH1. La cepa hemol&iacute;tica WAM 589 se transform&oacute; con el pl&aacute;smido pWAM04, (pl&aacute;smido pUC 19 en el cual se subclonaron los genes de hemolisina, contenidos en el operon <I>hly CABD</I> proveniente del pl&aacute;smido pSF4000). La cepa control WAM 675 no es hemol&iacute;tica y fue transformada con el pl&aacute;smido pUC 19 desprovisto de genes de hemolisina. La cepa control WAM 783 es la DH1 transformada con un derivado del pl&aacute;smido pWAM04, el cual porta una deleci&oacute;n en el gen hlyC. Este gen es responsable de la acilaci&oacute;n de la pro HlyA (<A HREF="#31">31</A>). En consecuencia, WAM 783 secreta una hemolisina no acilada, incapaz de insertarse en membranas de la c&eacute;lula blanco.</FONT></FONT>      <P><B><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Sobrenadantes de cultivos bacterianos</FONT></FONT></B>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Se usaron sobrenadantes crudos de cultivos de la cepa WAM 589 como fuente de hemolisina y crudos de las cepas WAM 675 y 783 como controles, a diluciones elevadas con respecto a los vol&uacute;menes de reacci&oacute;n (m&aacute;s de 1: 200).</FONT></FONT>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Las cepas de <I>Escherichia coli</I> se cultivaron en caldo Luria-Bertani (LB), con ampicilina (100 &micro;g/ml) para seleccionar las cepas WAM 589 y 675, y cloramfenicol (20 &micro;g/ml) para seleccionar la cepa WAM 783. Vol&uacute;menes de 100 ml de caldo LB se inocularon con 1-3 ml de un cultivo estacionario de la cepa correspondiente (incubado a 37&deg; C durante 12 horas), luego de lo cual se incubaron a 37&deg; C con agitaci&oacute;n (200 rpm) en un incubador rotatorio G25 ( New Brunswick, Edison, NJ). Se tomaron muestras de 10-15 ml de los cultivos cuando &eacute;stos alcanzaron una densidad &oacute;ptica (D.O.) de 0,3-0,4 (<IMG SRC="/img/fbpe/rccm/v21n3-4/y.GIF" HEIGHT=17 WIDTH=10 ALIGN=ABSCENTER> 600 nm) y las bacterias se sedimentaron por centrifugaci&oacute;n (7 min, 800 xg) en una centr&iacute;fuga Sorvall SS1 (Dupont Instruments, Wilmington, DE). El sobrenadante se esteriliz&oacute; por filtraci&oacute;n a trav&eacute;s de una membrana est&eacute;ril con porosidad de 0.4 um (Millipore) , y se mantuvo en hielo previo a su utilizaci&oacute;n. Para experimentos en los que se utiliz&oacute; EGTA quelante del calcio (ver m&aacute;s adelante), se a&ntilde;adi&oacute; CaCl</FONT><SUB><FONT SIZE=-2>2</FONT></SUB><FONT SIZE=-1>(10 mM) al caldo LB previo al cultivo, para preactivar la hemolisina.</FONT></FONT>      
<P><B><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Determinaci&oacute;n de actividad hemol&iacute;tica</FONT></FONT></B>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>A cada ml de diluciones dobles seriadas de sobrenadante bacteriano crudo y est&eacute;ril en soluci&oacute;n salina 0.85% con calcio (10 mM CaCl</FONT><SUB><FONT SIZE=-2>2</FONT></SUB><FONT SIZE=-1>) se a&ntilde;adi&oacute; 1 ml de suspensi&oacute;n al 1% de eritrocitos de carnero suspendidos soluci&oacute;n salina, y se incubaron a 37&deg; C durante 1 h. Al finalizar la incubaci&oacute;n, se a&ntilde;adi&oacute; a cada diluci&oacute;n 2 ml de soluci&oacute;n salina fr&iacute;a para detener la reacci&oacute;n; se centrifug&oacute; a 700 xg por 5 min en una centr&iacute;fuga Sorvall GLC-2B (Dupont Instruments, Wilmington, DE) y se ley&oacute; la D.O. del fluido sobrenadante a 545 nm para estimar la liberaci&oacute;n de hemoglobina. Se determin&oacute; la diluci&oacute;n de sobrenadante que caus&oacute; 50% de lisis eritrocitaria mediante interpolaci&oacute;n en papel semilogar&iacute;tmico en el cual se hab&iacute;a trazado una curva patr&oacute;n de hem&oacute;lisis (por lisis hipot&oacute;nica, en agua destilada) obtenida independientemente con el mismo lote de eritrocitos. El t&iacute;tulo hemol&iacute;tico (HU50/ml) se defini&oacute; como el inverso de la diluci&oacute;n de sobrenadante de cultivo bacteriano que caus&oacute; 50% de hem&oacute;lisis. Dado que los ensayos con c&eacute;lulas se efectuaron en amortig&uuml;ador HC (descrito a continuaci&oacute;n), se hicieron titulaciones de sobrenadantes hemol&iacute;ticos en el mismo amortig&uuml;ador, para descartar variaciones en el t&iacute;tulo hemol&iacute;tico debidas al cambio de soluci&oacute;n. El t&iacute;tulo hemol&iacute;tico no vari&oacute; con respecto al obtenido en soluci&oacute;n salina con calcio.<B> </B>Titulaciones de sobrenadantes preactivados con 10 mM Ca</FONT><SUP><FONT SIZE=-2>+2</FONT></SUP><FONT SIZE=-1>, en presencia de soluci&oacute;n salina –5mM EGTA, no mostraron variaci&oacute;n en t&iacute;tulo hemol&iacute;tico, indicando que el quelante no sustrae el calcio de su complejo con Hly A.</FONT></FONT>      <P><B><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Obtenci&oacute;n de leucocitos polimorfonucleares neutr&oacute;filos (PMN)</FONT></FONT></B>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Se us&oacute; sangre venosa heparinizada obtenida de voluntarios sanos, la cual se estratific&oacute; en tubos de ensayo sobre medio Mono Poly (ICN-Flow) y se centrifug&oacute; de acuerdo a instrucciones del fabricante. Se recogi&oacute; la banda de PMN y &eacute;stos se lavaron usando 20 ml de amortig&uuml;ador HEPES sin calcio (HNC: HEPES 10 mM, NaCl 144 mM, KCl 5 mM, Glucosa 5,5 mM , gelatina para cultivo de tejidos 0,5% p/v, pH 7.4). Los PMN se resuspendieron luego en NH</FONT><SUB><FONT SIZE=-2>4</FONT></SUB><FONT SIZE=-1>Cl ( 0,83% en HEPES 10 mM, pH 7,4) durante 7 minutos a 37&deg; C, para lisar eritrocitos contaminantes. Los PMN se lavaron una vez m&aacute;s con HNC y se resuspendieron luego en 1 ml de amortig&uuml;ador (0,8 ml de HNC + 0,2 ml de amortig&uuml;ador HEPES con calcio, o HC, de composici&oacute;n id&eacute;ntica a HNC, pero adicionado de 1 mM Ca Cl</FONT><SUB><FONT SIZE=-2>2</FONT></SUB><FONT SIZE=-1> y 0,1% gelatina, pH 7,4). El conteo de c&eacute;lulas en la suspensi&oacute;n se efectu&oacute; usando una c&aacute;mara para contar gl&oacute;bulos (Hemacytometer).</FONT></FONT>      ]]></body>
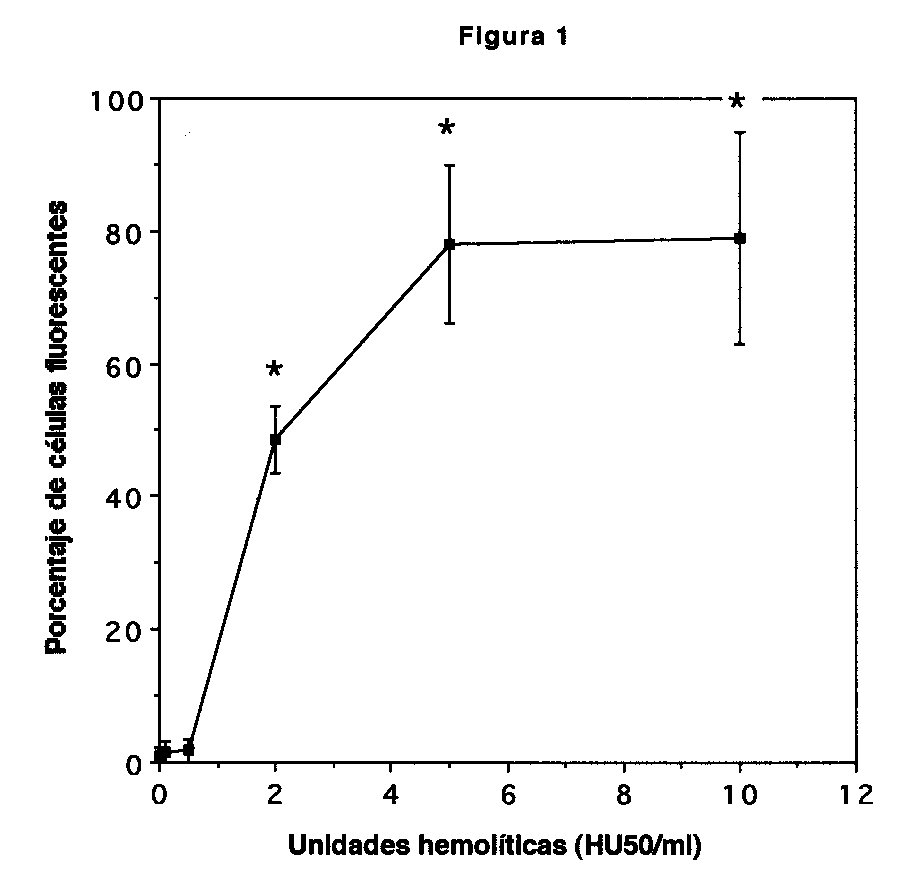
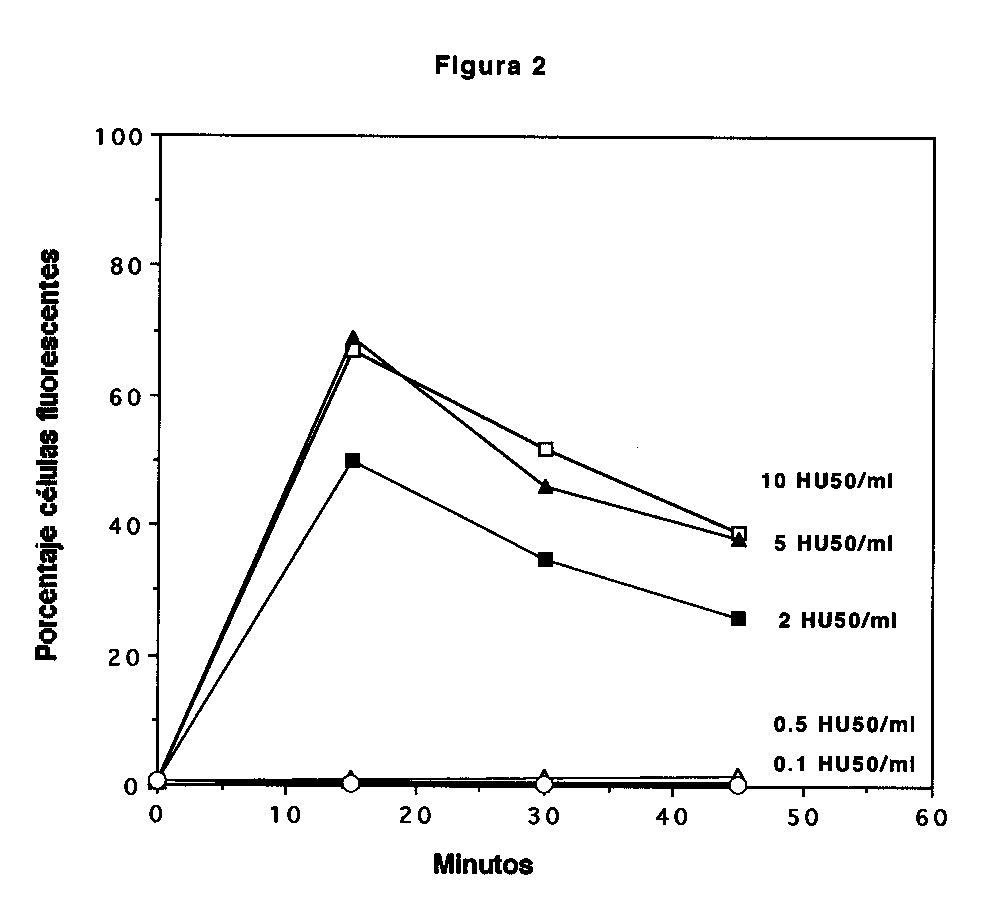
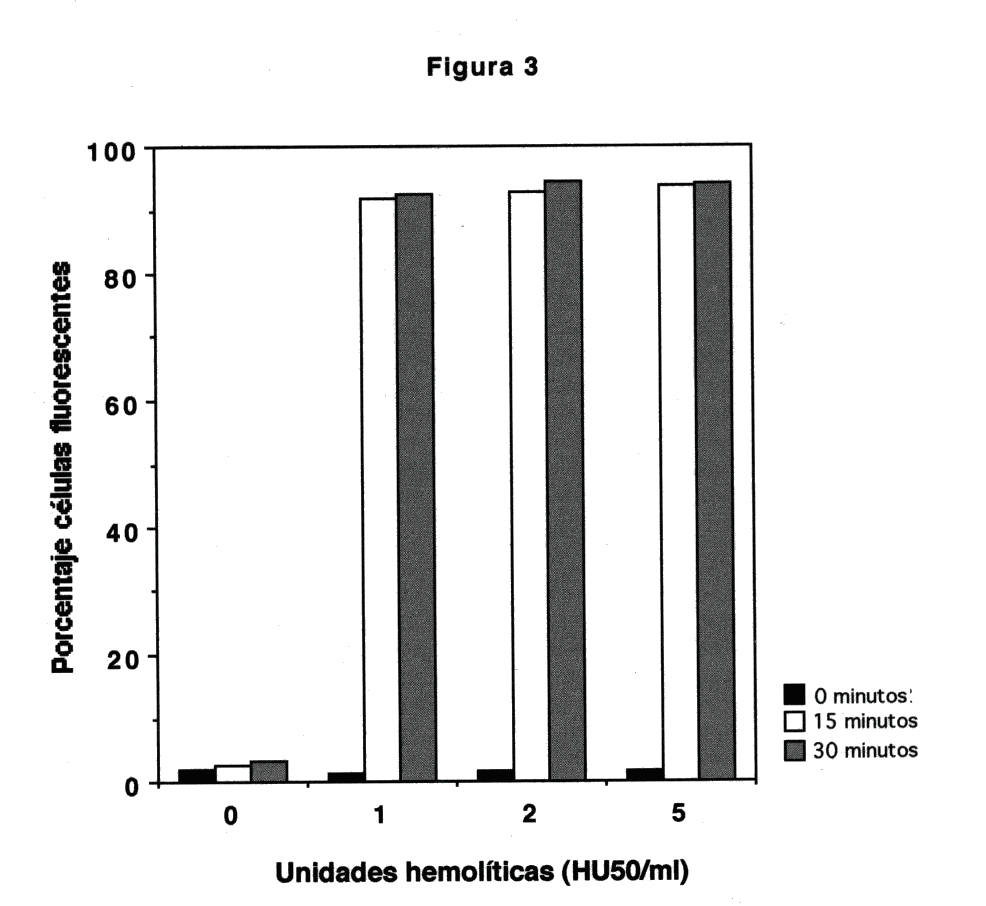
<body><![CDATA[<P><B><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Ensayos de citotoxicidad</FONT></FONT></B>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Los ensayos se efectuaron en viales de vidrio para centelleo, silanizados previamente para impedir adhesi&oacute;n de PMN al vidrio. Se agreg&oacute; a los viales amortig&uuml;ador HC est&eacute;ril con 0,1% de gelatina (2-4 ml), seguido la suspensi&oacute;n celular (hasta 200 &micro;L) para dar una densidad celular de 0,8-1 x 10</FONT><SUP><FONT SIZE=-2>6</FONT></SUP><FONT SIZE=-1> /ml. El experimento se inici&oacute; al a&ntilde;adir sobrenadante hemol&iacute;tico o sus controles a las suspensiones celulares, y los viales se mantuvieron a 37&deg;C con agitaci&oacute;n (100-150 rpm, G76 Gyrotory Bath Shaker) durante el per&iacute;odo de exposici&oacute;n. A intervalos definidos, al&iacute;cuotas de 500 &micro;L se mezclaron con 5 &micro;l de soluci&oacute;n de yoduro de propidio (5 &micro;g/ml) para an&aacute;lisis de exclusi&oacute;n en un cit&oacute;metro (FACSCAN, Beckton-Dickinson). En algunos experimentos, los PMN se incubaron previamente durante 1 hora en amortig&uuml;ador HNC conteniendo 5 mM Etilenglicol-bis ( beta aminoetil &eacute;ter ) N,N,N&acute;,N&acute;- tetraacetato</FONT></FONT>     <BR><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>(EGTA, que penetra la membrana ), para quelar tanto el calcio intra como extracelular. Cuando se necesit&oacute; quelar solamente el calcio intracelular, los PMN incubados con el amortiguador HNC-EGTA se lavaron dos veces y se resuspendieron en amortig&uuml;ador HNC antes de iniciar el experimento.</FONT></FONT>      <P><B><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Resultados</FONT></FONT></B>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>La validez del uso sobrenadantes crudos como fuente de hemolisina se justific&oacute; mediante experimentos de inactivaci&oacute;n t&eacute;rmica, enzim&aacute;tica y con anticuerpos monoclonales anti hemolisina y anti LPS; la descripci&oacute;n detallada de esos experimentos se ha ofrecido previamente (<A HREF="#32">32</A> ).</FONT></FONT>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>PMN expuestos a Hly A mostraron fluorescencia al an&aacute;lisis citom&eacute;trico, lo que indica que el da&ntilde;o a la membrana celular permiti&oacute; el ingreso del propidio al interior de la c&eacute;lula; no as&iacute; los sobrenadantes control, los cuales no causaron fluorescencia celular. Los resultados se ilustran en la <A HREF="#fig1">figura 1</A>, en la cual se aprecia que al final de una incubaci&oacute;n de 15 minutos la exposici&oacute;n a m&aacute;s de 0,5 HU 50/ml caus&oacute; un aumento en la fluorescencia que fue directamente proporcional a la dosis hemol&iacute;tica, y que alcanz&oacute; un m&aacute;ximo a 5 HU50/ml, con porcentajes promedio de c&eacute;lulas fluorescentes cercanos al 80%. Dosis hemol&iacute;ticas inferiores a 0,5 HU50/ml no causaron fluorescencia celular durante los 60 minutos de duraci&oacute;n del experimento. Las lecturas se reportaron a los 15 minutos por cuanto la fluorescencia de PMN expuestos a dosis hemol&iacute;ticas de 2 HU50/ml y superiores disminuy&oacute; a partir de los 15 minutos de incubaci&oacute;n, seg&uacute;n se ilustra en la <A HREF="#fig2">figura 2</A>. Esta disminuci&oacute;n es posterior a la lesi&oacute;n original causada por Hly A en la membrana, la cual se inserta en la membrana durante los primeros minutos de exposici&oacute;n (<A HREF="#33">33</A>).</FONT></FONT>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Para estudiar el origen de la p&eacute;rdida de fluorescencia, se efectuaron experimentos disminuyendo las concentraciones de calcio intra y extracelular. PMN conteniendo EGTA para quelar calcio intracelular, y resuspendidos en HNC (sin calcio agregado, con concentraci&oacute;n de Ca</FONT><SUP><FONT SIZE=-2>+2</FONT></SUP><FONT SIZE=-1> externa de 10</FONT><SUP><FONT SIZE=-2>–5</FONT></SUP><FONT SIZE=-1> M) dieron una respuesta fluorescente m&aacute;s pronunciada que la de PMN sin EGTA, del orden de 45% en c&eacute;lulas expuestas a 0,5 HU50/ml; sin embargo, la fluorescencia tambi&eacute;n tiende a disminuir a los 30 minutos (datos no ilustrados).</FONT></FONT>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>PMN conteniendo EGTA y resuspendidos en amortiguador HNC - EGTA durante su exposici&oacute;n a Hly A manifestaron la respuesta fluorescente m&aacute;s intensa (m&aacute;s de 90% a partir de 1 HU50/ml, <A HREF="#fig3">Fig.3</A>), que no disminuy&oacute; durante el per&iacute;odo de incubaci&oacute;n.</FONT></FONT>     <BR>&nbsp;      <P><B><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Discusi&oacute;n</FONT></FONT></B>      ]]></body>
<body><![CDATA[<P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Los resultados de este estudio corroboran hallazgos previos (<A HREF="#23">23</A>) se&ntilde;alando que PMN expuestos a Hly A sufren da&ntilde;o de membrana que causa permeabilizaci&oacute;n de la misma y permite la entrada de propidio a la c&eacute;lula, lo que se detecta como una se&ntilde;al fluorescente en el cit&oacute;metro. La curva de dosis respuesta ilustrada en la figura 1 define adem&aacute;s un rango subl&iacute;tico de concentraciones de Hly A (&lt;0,5 HU50/ml), que no causan fluorescencia durante el per&iacute;odo experimental de 60 minutos.</FONT></FONT>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>La disminuci&oacute;n en la fluorescencia de PMN que se observ&oacute; a partir de los 30 minutos de incubaci&oacute;n no ha sido reportada previamente. Como la se&ntilde;al fluorescente proviene del propidio intercalado en ADN, podr&iacute;a explicarse asumiendo la salida del propidio a trav&eacute;s de las lesiones de la membrana. Sin embargo, ello requerir&iacute;a desplazamiento del propidio del ADN , y no se conoce un mecanismo que explique tal disociaci&oacute;n. Otra explicaci&oacute;n consiste en atribuir la disminuci&oacute;n de la se&ntilde;al fluorescente a una posible activaci&oacute;n de endonucleasas, debida a la entrada de calcio externo a trav&eacute;s de las lesiones de membrana. La activaci&oacute;n de endonucleasas causar&iacute;a degradaci&oacute;n de ADN, y explicar&iacute;a la disociaci&oacute;n del propidio del ADN degradado, con disminuci&oacute;n de la fluorescencia. La evidencia experimental obtenida en este estudio apoya esa idea, ya que la quelaci&oacute;n del calcio externo con EGTA previene su entrada a la c&eacute;lula, y es suficiente para evitar la disminuci&oacute;n de la fluorescencia. Sin embargo, la prueba definitiva de tal mecanismo ser&iacute;a la demostraci&oacute;n directa de degradaci&oacute;n de ADN en PMN expuestos a Hly A.</FONT></FONT>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>PMN preincubados con EGTA y suspendidos en HNC muestran mayor fluorescencia; la se&ntilde;al tiende a disminuir a los 30 minutos, aunque no de manera notoria, como se observ&oacute; en PMN suspendidos en HC, con 1 mM de Ca</FONT><SUP><FONT SIZE=-2>+2</FONT></SUP><FONT SIZE=-1>. Este resultado tambi&eacute;n es congruente con la idea de que es el calcio externo el responsable de la p&eacute;rdida de fluorescencia, ya que era de esperar que la disminuci&oacute;n (sin quelaci&oacute;n) de Ca</FONT><SUP><FONT SIZE=-2>+2</FONT></SUP><FONT SIZE=-1> externo retrasara la p&eacute;rdida de se&ntilde;al, teniendo en cuenta que la quelaci&oacute;n la evita por completo. Sin embargo, plantea una interrogante respecto del aumento inicial en fluorescencia, el que pareciera estar relacionado con concentraciones bajas de Ca</FONT><SUP><FONT SIZE=-2>+2</FONT></SUP><FONT SIZE=-1> extracelular.</FONT></FONT>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>La respuesta fluorescente de PMN con EGTA interno y resuspendidos en HNC-EGTA es la m&aacute;s intensa (<A HREF="#fig3">Fig 3</A>). Se ha demostrado previamente que la quelaci&oacute;n del calcio extracelular aumenta la probabilidad de que los poros formados por Hly A se encuentren en su configuraci&oacute;n abierta (<A HREF="#33">33</A>). Al permanecer el poro abierto por m&aacute;s tiempo, se facilita la entrada del propidio al interior de la c&eacute;lula, y la intercalaci&oacute;n al ADN es mayor, lo que se refleja a su vez como un mayor porcentaje de c&eacute;lulas fluorescentes (<A HREF="#fig3">Fig 3</A>). Esta observaci&oacute;n concuerda con datos reportados con anterioridad (<A HREF="#32">32</A>), con los que se demuestra que el aumento en volumen celular medio de PMN en respuesta a Hly A es mayor cuando la concentraci&oacute;n de calcio extracelular es baja. La apertura incrementada de los poros acelera la redistribuci&oacute;n cati&oacute;nica y la c&eacute;lula alcanza equilibrio tipo Donnan con mayor celeridad, lo que a su vez causa movimiento m&aacute;s r&aacute;pido de agua hacia el interior de la c&eacute;lula.</FONT></FONT>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Se desprende de lo anterior que la formaci&oacute;n de poros en la membrana de PMN por parte de Hly A es independiente de calcio, exceptuando el que se necesita para su activaci&oacute;n. Se ha propuesto con anterioridad que Hly A causa sus efectos hemol&iacute;ticos porque se comporta como un ion&oacute;foro de calcio (<A HREF="#34">34</A>, <A HREF="#35">35</A>). Los resultados de este estudio rebaten tal conclusi&oacute;n, y confirman los de Bhakdi ( <A HREF="#19">19</A> ), quien report&oacute; experimentos mostrando que la hem&oacute;lisis no se afect&oacute; al usar Hly A pre activada con calcio pero en presencia de 5 mM EDTA. La evidencia presentada en este trabajo ampl&iacute;a la observaci&oacute;n de Bhakdi al demostrar que la formaci&oacute;n de poros ocurre a pesar de que se haya quelado tambi&eacute;n el calcio intracelular.</FONT></FONT>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Bhakdi (<A HREF="#23">23</A>) ha propuesto que la exclusi&oacute;n de propidio en PMN expuestos a Hly A es el m&eacute;todo m&aacute;s sensible para la detecci&oacute;n de poros en membrana, y que una c&eacute;lula que no muestre fluorescencia no los manifiesta. Si bien la citometr&iacute;a es objetiva, r&aacute;pida, y altamente reproducible, la evidencia obtenida en esta investigaci&oacute;n, as&iacute; como datos publicados con anterioridad (<A HREF="#32">32</A>), y otros en preparaci&oacute;n, indican, por el contrario, que la exclusi&oacute;n de propidio no es la medida m&aacute;s exacta de los poros formados por Hly A. En este estudio, PMN expuestos a actividades hemol&iacute;ticas de 0,5 HU50/ml o menores no mostraron fluorescencia durante 1 hora de incubaci&oacute;n. Sin embargo, como se ha mostrado previamente, el volumen celular medio de PMN expuestos a 0,1 y 0,5 HU50/ml (subl&iacute;ticas de acuerdo a citometr&iacute;a) aumenta significativamente a los 15 minutos de incubaci&oacute;n. Se concluye que a esas dosis hemol&iacute;ticas s&iacute; ocurre la formaci&oacute;n de poros que permiten la redistribuci&oacute;n de cationes a trav&eacute;s de la membrana, y que tiene como consecuencia entrada de agua a la c&eacute;lula. M&aacute;s a&uacute;n, gr&aacute;ficos de contorno (SSC vs FSC) de la poblaci&oacute;n de PMN expuestos a Hly A, obtenidos de la misma citometr&iacute;a de flujo en esta investigaci&oacute;n y que no se ilustran, muestran aumentos leves en el tama&ntilde;o celular (FSC), el cual vuelve a niveles basales 60 minutos despu&eacute;s de exposici&oacute;n a 5 HU50/ml, y 30 minutos despu&eacute;s de exposici&oacute;n a 0,1 HU50/ml. Otros datos por publicarse muestran entrada de calcio a c&eacute;lulas blanco a 0,1 HU50/ml, lo que constituye evidencia adicional de formaci&oacute;n de poros de membrana a dosis que no causan fluorescencia. La citometr&iacute;a define, por lo tanto, actividades subl&iacute;ticas de Hly A, que deben interpretarse como concentraciones que forman poros en la membrana, pero que no permiten la entrada de propidio durante los 60 minutos de incubaci&oacute;n reportados en este estudio.</FONT></FONT>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>El poro que aparece luego de la inserci&oacute;n de Hly A en la membrana tiene un di&aacute;metro funcional de 2-3 nm. La definici&oacute;n de su apertura se hizo mediante pruebas de protecci&oacute;n osm&oacute;tica en eritrocitos (<A HREF="#23">23</A>), las cuales mostraron que el Dextran 4 (PM 4000, 3 nm de di&aacute;metro) no penetr&oacute; la membrana por los poros de Hly A y previno la lisis eritrocitaria, lo que no se logr&oacute; con la inulina ( PM 5000, 2,8 nm de di&aacute;metro), que penetr&oacute; muy lentamente, ni con la sacarosa (PM 342, di&aacute;metro 0,9 nm), que penetr&oacute; m&aacute;s r&aacute;pido. Estos resultados, sin embargo, no establecieron si el poro causado por Hly A mantiene el mismo di&aacute;metro funcional conforme el eritrocito aumenta su volumen y se aproxima a la ruptura.</FONT></FONT>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Los hallazgos ilustrados en este estudio y algunos de los experimentos publicados previamente (<A HREF="#19">19</A>, <A HREF="#29">29</A>) son congruentes con la hip&oacute;tesis que se formula. A dosis hemol&iacute;ticas bajas ( 0,5 HU50/ml y menores en este estudio) los poros formados, no son tan numerosos, y la redistribuci&oacute;n i&oacute;nica resultante conduce a aumentos leves en volumen celular medio y en tama&ntilde;o celular (FSC), aumentos de los que los PMN parecieran recuperarse en t&eacute;rmino de 15-60 minutos, y que no causan entrada de propidio a la c&eacute;lula. Sin embargo, es posible que las c&eacute;lulas se vean afectadas posteriormente como consecuencia de la entrada de calcio, que alterar&iacute;a su metabolismo, pudiendo sufrir citotoxicidad o cambios apopt&oacute;sicos horas despu&eacute;s del episodio que lesion&oacute; la membrana (<A HREF="#35">35</A>,<A HREF="#36">36</A>).</FONT></FONT>      <P><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>A dosis hemol&iacute;ticas m&aacute;s elevadas, la cantidad de poros formados por Hly A en la membrana es mayor, y las redistribuciones i&oacute;nicas se&ntilde;aladas anteriormente se suceden m&aacute;s r&aacute;pidamente, causando aumentos pronunciados en volumen celular; la entrada de calcio es mucho mayor, y podr&iacute;a conducir r&aacute;pidamente a la activaci&oacute;n de fosfolipasas (<A HREF="#37">37</A>) y proteasas (<A HREF="#38">38</A>), acentuando el da&ntilde;o a la membrana, que se agrava a&uacute;n m&aacute;s por el aumento en volumen celular. Estos factores, y el stress que causan a la membrana, podr&iacute;an aumentar el di&aacute;metro funcional de los poros, permitiendo que compuestos de peso molecular m&aacute;s elevado, como el propidio (PM 668) ingresen a la c&eacute;lula, y que otros escapen de ella, tal y como se ha demostrado sucede con el ATP (PM 551), (<A HREF="#23">23</A>). Siendo el ATP una mol&eacute;cula ani&oacute;nica, su escape de la c&eacute;lula sugiere tambi&eacute;n modificaci&oacute;n de la lesi&oacute;n original de membrana, que en ese momento habr&iacute;a perdido su selectividad para cationes. Esta secuencia hipot&eacute;tica de acontecimientos concilia, entonces, observaciones aparentemente dispares, y propone un mecanismo que explica las observaciones citom&eacute;tricas en PMN expuestos a Hly A.</FONT></FONT>     <CENTER><A NAME="fig1"></A><IMG SRC="/img/fbpe/rccm/v21n3-4/1085i1.GIF" HEIGHT=414 WIDTH=483></CENTER> <FONT SIZE=-1></FONT>      
]]></body>
<body><![CDATA[<P><FONT SIZE=-1><FONT FACE="Arial,Helvetica"><B>Figura 1</B>. Exclusi&oacute;n de propidio en PMN expuestos a Hly A. PMN (1x10<SUP>6</SUP>/ml) se expusieron al sobrenadante de <I>E. coli</I> WAM 589. El gr&aacute;fico muestra porcentaje de c&eacute;lulas fluorescentes versus dosis hemol&iacute;tica (HU50/ml) luego de 15 minutos de incubaci&oacute;n. Las barras denotan error standard (n = 4). Sobranadantes no hemol&iacute;ticos no causaron fluorescencia.</FONT></FONT>     <BR><FONT SIZE=-1><FONT FACE="Arial,Helvetica">p&lt; 0,05 prueba t pareada, comparado con valores</FONT></FONT>     <CENTER><A NAME="fig2"></A><IMG SRC="/img/fbpe/rccm/v21n3-4/1085i2.GIF" HEIGHT=545 WIDTH=458></CENTER>       
<P><FONT SIZE=-1><FONT FACE="Arial,Helvetica"><B>Figura 2. </B>Exclusi&oacute;n de propidio vs. tiempo en PMN expuestos a Hly A. PMN (1x10<SUP>6</SUP>/ml) se expusieron al sobrenadante de <I>E. coli</I> WAM 589. El gr&aacute;fico muestra porcentajes de c&eacute;lulas fluorescentes expuestas a diferentes dosis hemol&iacute;ticas en funci&oacute;n del tiempo de incubaci&oacute;n. Se muestra un experimento representativo.</FONT></FONT>     <BR>&nbsp;     <CENTER><A NAME="fig3"></A><IMG SRC="/img/fbpe/rccm/v21n3-4/1085i3.GIF" HEIGHT=450 WIDTH=489></CENTER>       
<P><FONT SIZE=-1><FONT FACE="Arial,Helvetica"><B>Figura 3. </B>Efecto de la quelaci&oacute;n de calcio con EGTA en la exclusi&oacute;n de propidio en PMN expuestos a Hly A. PMN (1x10<SUP>6</SUP>/ml) se preincubaron con 5mM EGTA y se expusieron a sobrenadante hemol&iacute;tico de <I>E. coli</I> WAM 589 resuspendidos en amortiguador con 5 mM EGTA. El gr&aacute;fico presenta porcentajes de c&eacute;lulas fluorescentes vs dosis hemol&iacute;tica a diferentes per&iacute;odos de incubaci&oacute;n. El experimento se repiti&oacute; dos veces con resultados similares.</FONT></FONT>     <BR>&nbsp;      <P><B><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>referencias</FONT></FONT></B>      <!-- ref --><P><A NAME="1"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>1) Cooke, E.M., Ewins, S.P. Properties of strains of <I>Escherichia coli </I>isolated from a variety of sources. <I>J Med Microbiol</I> 1975; 8:107-111.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798611&pid=S0253-2948200000020000300001&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="2"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>2) Minshew, B.H., Jorgensen, J., Counts, G.W., Falkow, S. Association of hemolysin production, hemagglutination of human erythrocytes, and virulence for chicken embryos of extraintestinal <I>Escherichia coli</I> isolates. <I>Infect Immun</I> 1978; 20:50-54.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798612&pid=S0253-2948200000020000300002&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="3"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>3) O&acute;Hanley, P., Low, D., Romero, I., Lark, D., Vosti, K., Falkow, S., Schoolnik.,G. Gal-gal binding and hemolysin phenotypes associated with uropathogenic <I>Escherichia coli</I>. <I>N Eng J Med</I> 1985; 313:414-417.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798613&pid=S0253-2948200000020000300003&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><P><A NAME="4"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>4) Hughes, C., Hacker, J., Roberts, A., Goebel, W. Hemolysin production as a virulence marker in symptomatic and asymptomatic urinary tract infections caused by <I>Escherichia coli. Infect</I>. <I>Immun</I> 1983; 39:546-551.</FONT></FONT>      <!-- ref --><P><A NAME="5"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>5) Fried, F.A., Vermeulen, C.W., Ginsburg, M.J., Cone, C.M. Etiology of pyelonephritis: further evidence associating the production of experimental pyelonephritis with hemolysis in <I>Escherichia coli</I>. <I>J Urol</I> 1971; 106:351- 354.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798615&pid=S0253-2948200000020000300005&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="6"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>6) Welch, R.A., Dellinger, E.P., Minshew, B., Falkow, S. Haemolysin contributes to virulence of extra-intestinal <I>E. coli</I> infections. <I>Nature</I> 1981; 294:665-667.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798616&pid=S0253-2948200000020000300006&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="7"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>7) Waalwijk, C.F., Van den Bosch, J.F., Mac Laren, D.M., de Graaff, J. Hemolysin plasmid coding for the virulence of a nephropathogenic <I>Escherichia coli</I> strain. <I>Infect Immun</I> 1982; 35:32-37.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798617&pid=S0253-2948200000020000300007&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="8"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>8) Hacker, J., Hughes, C., Hof, H., Goebel, W. Cloned hemolysin genes from <I>Escherichia coli</I> that cause urinary tract infection determine different levels of toxicity in mice. <I>Infect Immun</I> 1983; 42:57-63.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798618&pid=S0253-2948200000020000300008&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="9"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>9) Felmlee, T., Pellett, S., Welch, R.A. Nucleotide sequence of an <I>Escherichia coli</I> chromosomal hemolysin<I>. J Bacteriol</I> 1985; 163: 94-105.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798619&pid=S0253-2948200000020000300009&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="10"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>10) Welch, R.A., Hull, R., Falkow, S. Molecular cloning and physical characterization of a chromosomal hemolysin from <I>Escherichia coli</I>. <I>Infec Immun</I> 1983; 42: 178-186.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798620&pid=S0253-2948200000020000300010&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="11"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>11) Mackman, N., Holland, I.B. Functional characterization of a cloned haemolysin determinant from <I><U>E</U>. <U>coli</U></I> of human origin, encoding information for the secretion of a 107 K polypeptide. <I>Mol Gen Genet</I> 1984; 196:123-134.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798621&pid=S0253-2948200000020000300011&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="12"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>12) Ludwig, A., Garc&iacute;a, F., Benz, R., Jarchau, T., Oropeza-Wekerle, R.L., Hoppe, J., Goebel, W. Structures essential formation by <I>Escherichia coli</I> haemolysin. En Bacterial Protein Toxins, Witholt et al (Eds), <I>Zbl Bakt</I>. 1992; Suppl 23: 450- 460.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798622&pid=S0253-2948200000020000300012&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="13"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>13) Menestrina, G., Dalla Serra, M., Pederzolli, C., Bregante, M., Gambale, F. Bacterial hemolysins and leukotoxins affect target cells by forming large exogenous pores into their plasma membrane. <I>Escherichia coli</I> hemolysin A as a case example<I>. Bioscience Rep</I> 1995; 15: 543-551.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798623&pid=S0253-2948200000020000300013&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="14"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>14) Bauer, M.E., Welch, R.A. Association of RTX toxins with erythrocytes. <I>Infect Immun </I>1996; 64:4665-4672.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798624&pid=S0253-2948200000020000300014&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="15"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>15) Zwadyk, P., Snyder, I.S. Purification and kinetic studies of the hemolysin from <I>Escherichia coli</I>. <I>Can J Microbiol</I> 1971; 17: 741-745.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798625&pid=S0253-2948200000020000300015&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="16"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>16) Rennie, R.P., Freer, J.H., Arbuthnot, J.P. The kinetics of erythrocyte lysis by <I>Escherichia coli</I> haemolysin. <I>J Med Microbiol</I> 1974; 7:189-195.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798626&pid=S0253-2948200000020000300016&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="17"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>17) Cavalieri, S.J., Bohach,G.A., Snyder, I.S. <I>Escherichia coli</I> alpha hemolysin: characteristics and probable role in pathogenicity<I>. Microbiol Rev</I> 1984; 48: 326-343.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798627&pid=S0253-2948200000020000300017&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="18"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>18) Snyder, I.S., Koch, N.A. Production and characteristics of hemolysins of <I>Escherichia coli. J Bacteriol</I> 1966; 91: 763-767.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798628&pid=S0253-2948200000020000300018&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="19"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>19) Bhakdi, S., Mackman, N., Nicaud, J.M., Holland, I.B. <I>Escherichia coli</I> hemolysin may damage target cell membranes by generating transmembrane pores<I>. Infect Immun</I> 1986; 52: 63-69.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798629&pid=S0253-2948200000020000300019&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="20"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>20) Ropele, M., Menestrina, G. Electrical properties and molecular architecture of the channel formed by <I>Escherichia coli</I> hemolysin in planar lipid membranes. <I>Biochim Biophys Acta</I> 1989; 985:9-18.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798630&pid=S0253-2948200000020000300020&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="21"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>21) Cavalieri, S.J., Snyder, I.S. Effect of <I>Escherichia coli</I> alpha hemolysin on human peripheral leukocyte function in vitro. <I>Infect Immun</I> 1982; 37: 966-974.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798631&pid=S0253-2948200000020000300021&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="22"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>22) Grimminger, F., Scholz, C., Bhakdi, S., Seeger, W. Sub-hemolytic doses of <I>Escherichia coli</I> hemolysin evoke large quantities of lipoxygenase products un human neutrophils. <I>J Biol Chem</I> 1991; 266: 14262-14269.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798632&pid=S0253-2948200000020000300022&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="23"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>23) Bhakdi, S., Greulich, S., Muhly, M., Ebersp&auml;cher, B., Becker, H., Thiele, A., Hugo, F. Potent leukocidal action of <I>Escherichia coli</I> hemolysin mediated by permeabilization of target cell membranes. <I>J Exp Med</I> 1989; 169: 737-754.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798633&pid=S0253-2948200000020000300023&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="24"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>24) Keane, W.F., Welch, R.A., Gekker, G., Peterson, P.K. Mechanism of <I>Escherichia coli</I> alpha hemolysin induced injury to isolated renal tubular cells. <I>Am J Pathol</I> 1987; 126:350-357.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798634&pid=S0253-2948200000020000300024&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="25"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>25) Gadeberg, O.V., Orskov, I., Rhodes, J.M. Cytotoxic effect of an alpha hemolytic <I>Escherichia coli</I> strain on human blood monocytes and granulocytes in vitro. <I>Infect Immun</I> 1983; 41: 358-364.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798635&pid=S0253-2948200000020000300025&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="26"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>26) Cavalieri, S.J., Snyder, I.S. Effect of <I>Escherichia coli</I> alpha hemolysin on human peripheral leukocyte viability in vitro. <I>Infect Immun</I> 1982; 36: 455-461.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798636&pid=S0253-2948200000020000300026&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="27"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>27) Gadeberg, O.V., Blom, J. Morphological study of the in vitro cytotoxic effect of alpha hemolytic <I>E. coli</I> bacteria and culture supernatants on human blood granulocytes and monocytes. <I>Acta Pathol Microbiol Immunol Scand</I>. (Sect.B) 1986; 94: 75-83.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798637&pid=S0253-2948200000020000300027&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="28"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>28) Gadeberg. O.V., In vitro activity of alpha hemolytic and non hemolytic <I>Escherichia coli</I> on human blood granulocytes and monocytes. <I>Acta Pathol. Microbiol Immunol Scand</I>. (Sect. B) 1987; 95:219-225.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798638&pid=S0253-2948200000020000300028&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="29"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>29) Bhakdi, S., Martin, E. Superoxide generation by human neutrophils induced by low doses of <I>Escherichia coli</I> hemolysin<I>. Infect Immun</I> 1991; 59: 2955-2962.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798639&pid=S0253-2948200000020000300029&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="30"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>30) Jacobs, D.A., Pipho, C. Use of propidium iodide staining and flow cytometry to measure antibody-mediated cytotoxicity: resolution of complement-sensitive and resistant target cells<I>. J Immunol Meth</I> 1983; 62:101-108.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798640&pid=S0253-2948200000020000300030&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="31"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>31) Issartel, J.P., Koronakis, V., Hughes, C. Activation of <I>Escherichia coli</I> prohaemolysin to the mature toxin by acyl carrier protein-dependent fatty acylation<I>. Nature</I> 1991; 351: 759-761.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798641&pid=S0253-2948200000020000300031&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="32"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>32) Garc&iacute;a, J.D. Medici&oacute;n del aumento en volumen celular inducido por alfa hemolisina de <I>E. coli</I> (Hly A) en leucocitos polimorfonucleares neutr&oacute;filos: efecto del calcio extracelular. <I>Rev Cost Cienc M&eacute;d</I> 1999; 20: 141-152.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798642&pid=S0253-2948200000020000300032&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="33"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>33) Menestrina, G., Bashford, C.L., Pasternak, C.A. Pore-forming toxins: experiments with <I>S. aureus</I> alpha- toxin<I>, C. perfringens</I>- theta toxin and <I>E. coli</I> hemolysin in lipid bilayers, liposomes and intact cells. <I>Toxicon</I> 1990; 28:477- 491.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798643&pid=S0253-2948200000020000300033&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="34"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>34) Jorgensen, S.E., Mulcahy, P.F., Wu, G.K. Calcium accumulation in human and sheep erythrocytes that is induced by <I>Escherichia coli</I> hemolysin. <I>Toxicon </I>1983; 21:717-727.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798644&pid=S0253-2948200000020000300034&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="35"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>35) Hameed, A., Olsen, K.J., Lee, M.K., Lichtenheld, M., Podack, E.R. Cytolysis by Ca-permeable transmembrane channels. Pore formation causes extensive DNA degradation and cell lysis. <I>J Exp Med</I> 1989; 169: 765-777.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798645&pid=S0253-2948200000020000300035&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="36"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>36) Jonas, D., Walev, I., Berger, T., Liebetrau, M., Palmer, M., Bhakdi, S. Novel path to apoptosis: small transmembrane pores created by staphylococcal alpha- toxin in T lymphocytes evoke internucleosomal DNA degradation. <I>Infect Immun </I>1994; 62: 1304-1312.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798646&pid=S0253-2948200000020000300036&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="37"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>37) Farber, J.L. Biology of disease: membrane injury and calcium homeostasis in the pathogenesis of coagulative necrosis. <I>Lab Invest</I> 1982; 47: 114-123.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798647&pid=S0253-2948200000020000300037&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><!-- ref --><P><A NAME="38"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>38) Nicotera, P., Hartzell, P., Orrenius, S. The formation of plasma membrane blebs in hepatocytes exposed to agents that increase cytosolic Ca</FONT><SUP><FONT SIZE=-2>+2</FONT></SUP><FONT SIZE=-1>is mediated by the activation of a no-lysosomal proteolytic system. <I>FEBS Lett.</I> 1986; 209: 139-144.</FONT></FONT>    &nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;&nbsp;[&#160;<a href="javascript:void(0);" onclick="javascript: window.open('/scielo.php?script=sci_nlinks&ref=798648&pid=S0253-2948200000020000300038&lng=','','width=640,height=500,resizable=yes,scrollbars=1,menubar=yes,');">Links</a>&#160;]<!-- end-ref --><P><A NAME="*a"></A><FONT FACE="Arial,Helvetica"><FONT SIZE=-1><A HREF="#*1">*</A>Departamento de Bioqu&iacute;mica. Escuela de Medicina</FONT></FONT>     <BR><FONT FACE="Arial,Helvetica"><FONT SIZE=-1>Universidad de Costa Rica</FONT></FONT>      ]]></body><back>
<ref-list>
<ref id="B1">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Cooke]]></surname>
<given-names><![CDATA[E.M.]]></given-names>
</name>
<name>
<surname><![CDATA[Ewins]]></surname>
<given-names><![CDATA[S.P.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Properties of strains of Escherichia coli isolated from a variety of sources]]></article-title>
<source><![CDATA[J Med Microbiol]]></source>
<year>1975</year>
<volume>8</volume>
<page-range>107-111</page-range></nlm-citation>
</ref>
<ref id="B2">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Minshew]]></surname>
<given-names><![CDATA[B.H.]]></given-names>
</name>
<name>
<surname><![CDATA[Jorgensen]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
<name>
<surname><![CDATA[Counts]]></surname>
<given-names><![CDATA[G.W.]]></given-names>
</name>
<name>
<surname><![CDATA[Falkow]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Association of hemolysin production, hemagglutination of human erythrocytes, and virulence for chicken embryos of extraintestinal Escherichia coli isolates]]></article-title>
<source><![CDATA[Infect Immun]]></source>
<year>1978</year>
<volume>20</volume>
<page-range>50-54</page-range></nlm-citation>
</ref>
<ref id="B3">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[O'Hanley]]></surname>
<given-names><![CDATA[P.]]></given-names>
</name>
<name>
<surname><![CDATA[Low]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
<name>
<surname><![CDATA[Romero]]></surname>
<given-names><![CDATA[I.]]></given-names>
</name>
<name>
<surname><![CDATA[Lark]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
<name>
<surname><![CDATA[Vosti]]></surname>
<given-names><![CDATA[K.]]></given-names>
</name>
<name>
<surname><![CDATA[Falkow]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
<name>
<surname><![CDATA[Schoolnik]]></surname>
<given-names><![CDATA[G.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Gal-gal binding and hemolysin phenotypes associated with uropathogenic Escherichia coli]]></article-title>
<source><![CDATA[N Eng J Med]]></source>
<year>1985</year>
<volume>313</volume>
<page-range>414-417</page-range></nlm-citation>
</ref>
<ref id="B4">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Hughes]]></surname>
<given-names><![CDATA[C.]]></given-names>
</name>
<name>
<surname><![CDATA[Hacker]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
<name>
<surname><![CDATA[Roberts]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
<name>
<surname><![CDATA[Goebel]]></surname>
<given-names><![CDATA[W.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Hemolysin production as a virulence marker in symptomatic and asymptomatic urinary tract infections caused by Escherichia coli]]></article-title>
<source><![CDATA[Infect. Immun]]></source>
<year>1983</year>
<volume>39</volume>
<page-range>546-551</page-range></nlm-citation>
</ref>
<ref id="B5">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Fried]]></surname>
<given-names><![CDATA[F.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Vermeulen]]></surname>
<given-names><![CDATA[C.W.]]></given-names>
</name>
<name>
<surname><![CDATA[Ginsburg]]></surname>
<given-names><![CDATA[M.J.]]></given-names>
</name>
<name>
<surname><![CDATA[Cone]]></surname>
<given-names><![CDATA[C.M.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Etiology of pyelonephritis: further evidence associating the production of experimental pyelonephritis with hemolysis in Escherichia coli]]></article-title>
<source><![CDATA[J Urol]]></source>
<year>1971</year>
<volume>106</volume>
<page-range>351- 354</page-range></nlm-citation>
</ref>
<ref id="B6">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Welch]]></surname>
<given-names><![CDATA[R.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Dellinger]]></surname>
<given-names><![CDATA[E.P.]]></given-names>
</name>
<name>
<surname><![CDATA[Minshew]]></surname>
<given-names><![CDATA[B.]]></given-names>
</name>
<name>
<surname><![CDATA[Falkow]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Haemolysin contributes to virulence of extra-intestinal E. coli infections]]></article-title>
<source><![CDATA[Nature]]></source>
<year>1981</year>
<volume>294</volume>
<page-range>665-667</page-range></nlm-citation>
</ref>
<ref id="B7">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Waalwijk]]></surname>
<given-names><![CDATA[C.F.]]></given-names>
</name>
<name>
<surname><![CDATA[Van den Bosch]]></surname>
<given-names><![CDATA[J.F.]]></given-names>
</name>
<name>
<surname><![CDATA[Mac Laren]]></surname>
<given-names><![CDATA[D.M.]]></given-names>
</name>
<name>
<surname><![CDATA[de Graaff]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Hemolysin plasmid coding for the virulence of a nephropathogenic Escherichia coli strain]]></article-title>
<source><![CDATA[Infect Immun]]></source>
<year>1982</year>
<volume>35</volume>
<page-range>32-37</page-range></nlm-citation>
</ref>
<ref id="B8">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Hacker]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
<name>
<surname><![CDATA[Hughes]]></surname>
<given-names><![CDATA[C.]]></given-names>
</name>
<name>
<surname><![CDATA[Hof]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
<name>
<surname><![CDATA[Goebel]]></surname>
<given-names><![CDATA[W.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Cloned hemolysin genes from Escherichia coli that cause urinary tract infection determine different levels of toxicity in mice]]></article-title>
<source><![CDATA[Infect Immun]]></source>
<year>1983</year>
<volume>42</volume>
<page-range>57-63</page-range></nlm-citation>
</ref>
<ref id="B9">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Felmlee]]></surname>
<given-names><![CDATA[T.]]></given-names>
</name>
<name>
<surname><![CDATA[Pellett]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
<name>
<surname><![CDATA[Welch]]></surname>
<given-names><![CDATA[R.A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Nucleotide sequence of an Escherichia coli chromosomal hemolysin]]></article-title>
<source><![CDATA[J Bacteriol]]></source>
<year>1985</year>
<volume>163</volume>
<page-range>94-105</page-range></nlm-citation>
</ref>
<ref id="B10">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Welch]]></surname>
<given-names><![CDATA[R.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Hull]]></surname>
<given-names><![CDATA[R.]]></given-names>
</name>
<name>
<surname><![CDATA[Falkow]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Molecular cloning and physical characterization of a chromosomal hemolysin from Escherichia coli]]></article-title>
<source><![CDATA[Infec Immun]]></source>
<year>1983</year>
<volume>42</volume>
<page-range>178-186</page-range></nlm-citation>
</ref>
<ref id="B11">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Mackman]]></surname>
<given-names><![CDATA[N.]]></given-names>
</name>
<name>
<surname><![CDATA[Holland]]></surname>
<given-names><![CDATA[I.B.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Functional characterization of a cloned haemolysin determinant from E. coli of human origin, encoding information for the secretion of a 107 K polypeptide]]></article-title>
<source><![CDATA[Mol Gen Genet]]></source>
<year>1984</year>
<volume>196</volume>
<page-range>123-134</page-range></nlm-citation>
</ref>
<ref id="B12">
<nlm-citation citation-type="book">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ludwig]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
<name>
<surname><![CDATA[García]]></surname>
<given-names><![CDATA[F.]]></given-names>
</name>
<name>
<surname><![CDATA[Benz]]></surname>
<given-names><![CDATA[R.]]></given-names>
</name>
<name>
<surname><![CDATA[Jarchau]]></surname>
<given-names><![CDATA[T.]]></given-names>
</name>
<name>
<surname><![CDATA[Oropeza-Wekerle]]></surname>
<given-names><![CDATA[R.L.]]></given-names>
</name>
<name>
<surname><![CDATA[Hoppe]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
<name>
<surname><![CDATA[Goebel]]></surname>
<given-names><![CDATA[W.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Structures essential formation by Escherichia coli haemolysin]]></article-title>
<person-group person-group-type="editor">
<name>
<surname><![CDATA[Witholt]]></surname>
</name>
</person-group>
<source><![CDATA[Bacterial Protein Toxins]]></source>
<year>1992</year>
<volume>23</volume>
<page-range>450- 460</page-range><publisher-name><![CDATA[Zbl Bakt]]></publisher-name>
</nlm-citation>
</ref>
<ref id="B13">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Menestrina]]></surname>
<given-names><![CDATA[G.]]></given-names>
</name>
<name>
<surname><![CDATA[Dalla Serra]]></surname>
<given-names><![CDATA[M.]]></given-names>
</name>
<name>
<surname><![CDATA[Pederzolli]]></surname>
<given-names><![CDATA[C.]]></given-names>
</name>
<name>
<surname><![CDATA[Bregante]]></surname>
<given-names><![CDATA[M.]]></given-names>
</name>
<name>
<surname><![CDATA[Gambale]]></surname>
<given-names><![CDATA[F.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Bacterial hemolysins and leukotoxins affect target cells by forming large exogenous pores into their plasma membrane. Escherichia coli hemolysin A as a case example]]></article-title>
<source><![CDATA[Bioscience Rep]]></source>
<year>1995</year>
<volume>15</volume>
<page-range>543-551</page-range></nlm-citation>
</ref>
<ref id="B14">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bauer]]></surname>
<given-names><![CDATA[M.E.]]></given-names>
</name>
<name>
<surname><![CDATA[Welch]]></surname>
<given-names><![CDATA[R.A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Association of RTX toxins with erythrocytes]]></article-title>
<source><![CDATA[Infect Immun]]></source>
<year>1996</year>
<volume>64</volume>
<page-range>4665-4672</page-range></nlm-citation>
</ref>
<ref id="B15">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Zwadyk]]></surname>
<given-names><![CDATA[P.]]></given-names>
</name>
<name>
<surname><![CDATA[Snyder]]></surname>
<given-names><![CDATA[I.S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Purification and kinetic studies of the hemolysin from Escherichia coli.]]></article-title>
<source><![CDATA[Can J Microbiol]]></source>
<year>1971</year>
<volume>17</volume>
<page-range>741-745</page-range></nlm-citation>
</ref>
<ref id="B16">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Rennie]]></surname>
<given-names><![CDATA[R.P.]]></given-names>
</name>
<name>
<surname><![CDATA[Freer]]></surname>
<given-names><![CDATA[J.H.]]></given-names>
</name>
<name>
<surname><![CDATA[Arbuthnot]]></surname>
<given-names><![CDATA[J.P.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The kinetics of erythrocyte lysis by Escherichia coli haemolysin]]></article-title>
<source><![CDATA[J Med Microbiol]]></source>
<year>1974</year>
<volume>7</volume>
<page-range>189-195</page-range></nlm-citation>
</ref>
<ref id="B17">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Cavalieri]]></surname>
<given-names><![CDATA[S.J.]]></given-names>
</name>
<name>
<surname><![CDATA[Bohach]]></surname>
<given-names><![CDATA[G.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Snyder]]></surname>
<given-names><![CDATA[I.S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Escherichia coli alpha hemolysin: characteristics and probable role in pathogenicity]]></article-title>
<source><![CDATA[Microbiol Rev]]></source>
<year>1984</year>
<volume>48</volume>
<page-range>326-343</page-range></nlm-citation>
</ref>
<ref id="B18">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Snyder]]></surname>
<given-names><![CDATA[I.S.]]></given-names>
</name>
<name>
<surname><![CDATA[Koch]]></surname>
<given-names><![CDATA[N.A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Production and characteristics of hemolysins of Escherichia coli]]></article-title>
<source><![CDATA[J Bacteriol]]></source>
<year>1966</year>
<volume>91</volume>
<page-range>763-767</page-range></nlm-citation>
</ref>
<ref id="B19">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bhakdi]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
<name>
<surname><![CDATA[Mackman]]></surname>
<given-names><![CDATA[N.]]></given-names>
</name>
<name>
<surname><![CDATA[Nicaud]]></surname>
<given-names><![CDATA[J.M.]]></given-names>
</name>
<name>
<surname><![CDATA[Holland]]></surname>
<given-names><![CDATA[I.B.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Escherichia coli hemolysin may damage target cell membranes by generating transmembrane pores]]></article-title>
<source><![CDATA[Infect Immun]]></source>
<year>1986</year>
<volume>52</volume>
<page-range>63-69</page-range></nlm-citation>
</ref>
<ref id="B20">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Ropele]]></surname>
<given-names><![CDATA[M.]]></given-names>
</name>
<name>
<surname><![CDATA[Menestrina]]></surname>
<given-names><![CDATA[G.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Electrical properties and molecular architecture of the channel formed by Escherichia coli hemolysin in planar lipid membranes]]></article-title>
<source><![CDATA[Biochim Biophys Acta]]></source>
<year>1989</year>
<volume>985</volume>
<page-range>9-18</page-range></nlm-citation>
</ref>
<ref id="B21">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Cavalieri]]></surname>
<given-names><![CDATA[S.J.]]></given-names>
</name>
<name>
<surname><![CDATA[Snyder]]></surname>
<given-names><![CDATA[I.S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Effect of Escherichia coli alpha hemolysin on human peripheral leukocyte function in vitro]]></article-title>
<source><![CDATA[Infect Immun]]></source>
<year>1982</year>
<volume>37</volume>
<page-range>966-974</page-range></nlm-citation>
</ref>
<ref id="B22">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Grimminger]]></surname>
<given-names><![CDATA[F.]]></given-names>
</name>
<name>
<surname><![CDATA[Scholz]]></surname>
<given-names><![CDATA[C.]]></given-names>
</name>
<name>
<surname><![CDATA[Bhakdi]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
<name>
<surname><![CDATA[Seeger]]></surname>
<given-names><![CDATA[W.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Sub-hemolytic doses of Escherichia coli hemolysin evoke large quantities of lipoxygenase products un human neutrophils]]></article-title>
<source><![CDATA[J Biol Chem]]></source>
<year>1991</year>
<volume>266</volume>
<page-range>14262-14269</page-range></nlm-citation>
</ref>
<ref id="B23">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bhakdi]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
<name>
<surname><![CDATA[Greulich]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
<name>
<surname><![CDATA[Muhly]]></surname>
<given-names><![CDATA[M.]]></given-names>
</name>
<name>
<surname><![CDATA[Eberspächer]]></surname>
<given-names><![CDATA[B.]]></given-names>
</name>
<name>
<surname><![CDATA[Becker]]></surname>
<given-names><![CDATA[H.]]></given-names>
</name>
<name>
<surname><![CDATA[Thiele]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
<name>
<surname><![CDATA[Hugo]]></surname>
<given-names><![CDATA[F.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Potent leukocidal action of Escherichia coli hemolysin mediated by permeabilization of target cell membranes]]></article-title>
<source><![CDATA[J Exp Med]]></source>
<year>1989</year>
<volume>169</volume>
<page-range>737-754</page-range></nlm-citation>
</ref>
<ref id="B24">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Keane]]></surname>
<given-names><![CDATA[W.F.]]></given-names>
</name>
<name>
<surname><![CDATA[Welch]]></surname>
<given-names><![CDATA[R.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Gekker]]></surname>
<given-names><![CDATA[G.]]></given-names>
</name>
<name>
<surname><![CDATA[Peterson]]></surname>
<given-names><![CDATA[P.K.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Mechanism of Escherichia coli alpha hemolysin induced injury to isolated renal tubular cells]]></article-title>
<source><![CDATA[Am J Pathol]]></source>
<year>1987</year>
<volume>126</volume>
<page-range>350-357</page-range></nlm-citation>
</ref>
<ref id="B25">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Gadeberg]]></surname>
<given-names><![CDATA[O.V.]]></given-names>
</name>
<name>
<surname><![CDATA[Orskov]]></surname>
<given-names><![CDATA[I.]]></given-names>
</name>
<name>
<surname><![CDATA[Rhodes]]></surname>
<given-names><![CDATA[J.M.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Cytotoxic effect of an alpha hemolytic Escherichia coli strain on human blood monocytes and granulocytes in vitro]]></article-title>
<source><![CDATA[Infect Immun]]></source>
<year>1983</year>
<volume>41</volume>
<page-range>358-364</page-range></nlm-citation>
</ref>
<ref id="B26">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Cavalieri]]></surname>
<given-names><![CDATA[S.J.]]></given-names>
</name>
<name>
<surname><![CDATA[Snyder]]></surname>
<given-names><![CDATA[I.S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Effect of Escherichia coli alpha hemolysin on human peripheral leukocyte viability in vitro]]></article-title>
<source><![CDATA[Infect Immun]]></source>
<year>1982</year>
<volume>36</volume>
<page-range>455-461</page-range></nlm-citation>
</ref>
<ref id="B27">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Gadeberg]]></surname>
<given-names><![CDATA[O.V.]]></given-names>
</name>
<name>
<surname><![CDATA[Blom]]></surname>
<given-names><![CDATA[J.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Morphological study of the in vitro cytotoxic effect of alpha hemolytic E. coli bacteria and culture supernatants on human blood granulocytes and monocytes]]></article-title>
<source><![CDATA[Acta Pathol Microbiol Immunol Scand]]></source>
<year>1986</year>
<volume>94</volume>
<page-range>75-83</page-range></nlm-citation>
</ref>
<ref id="B28">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Gadeberg]]></surname>
<given-names><![CDATA[O.V.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[In vitro activity of alpha hemolytic and non hemolytic Escherichia coli on human blood granulocytes and monocytes]]></article-title>
<source><![CDATA[Acta Pathol. Microbiol Immunol Scand.]]></source>
<year>1987</year>
<volume>95</volume>
<page-range>219-225</page-range></nlm-citation>
</ref>
<ref id="B29">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Bhakdi]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
<name>
<surname><![CDATA[Martin]]></surname>
<given-names><![CDATA[E.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Superoxide generation by human neutrophils induced by low doses of Escherichia coli hemolysin]]></article-title>
<source><![CDATA[Infect Immun]]></source>
<year>1991</year>
<volume>59</volume>
<page-range>2955-2962</page-range></nlm-citation>
</ref>
<ref id="B30">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Jacobs]]></surname>
<given-names><![CDATA[D.A.]]></given-names>
</name>
<name>
<surname><![CDATA[Pipho]]></surname>
<given-names><![CDATA[C.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Use of propidium iodide staining and flow cytometry to measure antibody-mediated cytotoxicity: resolution of complement-sensitive and resistant target cells]]></article-title>
<source><![CDATA[J Immunol Meth]]></source>
<year>1983</year>
<volume>62</volume>
<page-range>101-108</page-range></nlm-citation>
</ref>
<ref id="B31">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Issartel]]></surname>
<given-names><![CDATA[J.P.]]></given-names>
</name>
<name>
<surname><![CDATA[Koronakis]]></surname>
<given-names><![CDATA[V.]]></given-names>
</name>
<name>
<surname><![CDATA[Hughes]]></surname>
<given-names><![CDATA[C.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Activation of Escherichia coli prohaemolysin to the mature toxin by acyl carrier protein-dependent fatty acylation]]></article-title>
<source><![CDATA[Nature]]></source>
<year>1991</year>
<volume>351</volume>
<page-range>759-761</page-range></nlm-citation>
</ref>
<ref id="B32">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[García]]></surname>
<given-names><![CDATA[J.D.]]></given-names>
</name>
</person-group>
<article-title xml:lang="es"><![CDATA[Medición del aumento en volumen celular inducido por alfa hemolisina de E. coli (Hly A) en leucocitos polimorfonucleares neutrófilos: efecto del calcio extracelular]]></article-title>
<source><![CDATA[Rev Cost Cienc Méd]]></source>
<year>1999</year>
<volume>20</volume>
<page-range>141-152</page-range></nlm-citation>
</ref>
<ref id="B33">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Menestrina]]></surname>
<given-names><![CDATA[G.]]></given-names>
</name>
<name>
<surname><![CDATA[Bashford]]></surname>
<given-names><![CDATA[C.L.]]></given-names>
</name>
<name>
<surname><![CDATA[Pasternak]]></surname>
<given-names><![CDATA[C.A.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Pore-forming toxins: experiments with S. aureus alpha- toxin, C. perfringens- theta toxin and E. coli hemolysin in lipid bilayers, liposomes and intact cells]]></article-title>
<source><![CDATA[Toxicon]]></source>
<year>1990</year>
<volume>28</volume>
<page-range>477- 491</page-range></nlm-citation>
</ref>
<ref id="B34">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Jorgensen]]></surname>
<given-names><![CDATA[S.E.]]></given-names>
</name>
<name>
<surname><![CDATA[Mulcahy]]></surname>
<given-names><![CDATA[P.F.]]></given-names>
</name>
<name>
<surname><![CDATA[Wu]]></surname>
<given-names><![CDATA[G.K.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Calcium accumulation in human and sheep erythrocytes that is induced by Escherichia coli hemolysin]]></article-title>
<source><![CDATA[Toxicon]]></source>
<year>1983</year>
<volume>21</volume>
<page-range>717-727</page-range></nlm-citation>
</ref>
<ref id="B35">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Hameed]]></surname>
<given-names><![CDATA[A.]]></given-names>
</name>
<name>
<surname><![CDATA[Olsen]]></surname>
<given-names><![CDATA[K.J.]]></given-names>
</name>
<name>
<surname><![CDATA[Lee]]></surname>
<given-names><![CDATA[M.K.]]></given-names>
</name>
<name>
<surname><![CDATA[Lichtenheld]]></surname>
<given-names><![CDATA[M.]]></given-names>
</name>
<name>
<surname><![CDATA[Podack]]></surname>
<given-names><![CDATA[E.R.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Cytolysis by Ca-permeable transmembrane channels. Pore formation causes extensive DNA degradation and cell lysis]]></article-title>
<source><![CDATA[J Exp Med]]></source>
<year>1989</year>
<volume>169</volume>
<page-range>765-777</page-range></nlm-citation>
</ref>
<ref id="B36">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Jonas]]></surname>
<given-names><![CDATA[D.]]></given-names>
</name>
<name>
<surname><![CDATA[Walev]]></surname>
<given-names><![CDATA[I.]]></given-names>
</name>
<name>
<surname><![CDATA[Berger]]></surname>
<given-names><![CDATA[T.]]></given-names>
</name>
<name>
<surname><![CDATA[Liebetrau]]></surname>
<given-names><![CDATA[M.]]></given-names>
</name>
<name>
<surname><![CDATA[Palmer]]></surname>
<given-names><![CDATA[M.]]></given-names>
</name>
<name>
<surname><![CDATA[Bhakdi]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Novel path to apoptosis: small transmembrane pores created by staphylococcal alpha- toxin in T lymphocytes evoke internucleosomal DNA degradation]]></article-title>
<source><![CDATA[Infect Immun]]></source>
<year>1994</year>
<volume>62</volume>
<page-range>1304-1312</page-range></nlm-citation>
</ref>
<ref id="B37">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Farber]]></surname>
<given-names><![CDATA[J.L.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[Biology of disease: membrane injury and calcium homeostasis in the pathogenesis of coagulative necrosis]]></article-title>
<source><![CDATA[Lab Invest]]></source>
<year>1982</year>
<volume>47</volume>
<page-range>114-123</page-range></nlm-citation>
</ref>
<ref id="B38">
<nlm-citation citation-type="journal">
<person-group person-group-type="author">
<name>
<surname><![CDATA[Nicotera]]></surname>
<given-names><![CDATA[P.]]></given-names>
</name>
<name>
<surname><![CDATA[Hartzell]]></surname>
<given-names><![CDATA[P.]]></given-names>
</name>
<name>
<surname><![CDATA[Orrenius]]></surname>
<given-names><![CDATA[S.]]></given-names>
</name>
</person-group>
<article-title xml:lang="en"><![CDATA[The formation of plasma membrane blebs in hepatocytes exposed to agents that increase cytosolic Ca+2is mediated by the activation of a no-lysosomal proteolytic system]]></article-title>
<source><![CDATA[FEBS Lett]]></source>
<year>1986</year>
<volume>209</volume>
<page-range>139-144</page-range></nlm-citation>
</ref>
</ref-list>
</back>
</article>